Фітостероли: всмоктування холестерину та докази — NutriFit
Фітостероли та фітостаноли: міцели, NPC1L1 і ABCG5/G8
Будова рослинних стеролів, конкуренція в змішаних міцелах, NPC1L1, ефлюкс ABCG5/G8 і печінковий зворотний зв’язок. Дані про LDL-C, ситостеролемію, комбінації, форми продукту та межі клінічних доказів.
Фітостероли — рослинні ліпіди, близькі за будовою до холестерину. Їхні аналоги з насиченим зв’язком C5=C6 називають фітостанолами. Додавання цих речовин до раціону може зменшувати кишкове всмоктування холестерину та холестерин ліпопротеїнів низької щільності (LDL-C). Проте зниження лабораторного показника не означає доведеного запобігання інфаркту. Стаття поєднує хімічну будову, фізику міцел, клітинний транспорт і клінічні результати, відокремлюючи експериментальні моделі від висновків щодо людини.
1. Біосинтез і харчовий пул стеролів
Тварини й рослини використовують сквален-2,3-епоксид як попередник стеролів. Тваринна ланостеролсинтаза та циклоартенолсинтаза вищих рослин спрямовують циклізацію різними шляхами. У рослин S-аденозилметіонін постачає метильні групи стерол-C-метилтрансферазам SMT1/SMT2; модифікації бічного ланцюга створюють різноманіття фітостеролів. Це не означає, що всі рослини цілком позбавлені холестерину або всі еукаріоти мають один шлях.
Стероли вбудовуються у фосфоліпідний бішар: гідроксил взаємодіє з полярною ділянкою, кільця й бічний ланцюг розміщуються серед ацильних ланцюгів. Вони змінюють упаковку, проникність і фазовий стан мембрани. У модельних мембранах можуть співіснувати рідинно-впорядкована та рідинно-невпорядкована фази. Мікродомени живої клітини динамічні; пояснювати їх лише ідеально пласким стерольним каркасом було б надмірним спрощенням. Зв’язок складу мембрани з ушкодженням ліпідів розглянуто у статті про астаксантин і окиснення мембран.
Рослинні олії, горіхи, насіння, зернові та бобові містять вільні стероли, ефіри й глікозиди. Звичайне надходження вимірюють сотнями міліграмів, тоді як багато випробувань збагачених продуктів застосовують грамові кількості. У кишці рослинні стероли зустрічаються з харчовим холестерином і холестерином жовчі. Тому механізм важливий навіть за невеликого споживання харчового холестерину: біліарний пул залишається суттєвим.
Гіпохолестеринемічні властивості ситостеролу досліджують із середини XX століття. Практичним кроком стало введення ефірів станолів у харчову жирову матрицю. У річному рандомізованому дослідженні Miettinen et al. (1995) маргарин зі станоловим ефіром знижував LDL-C; це випробування ліпідів, а не серцево-судинних подій. Подальші відкриття ABCG5/ABCG8 і NPC1L1 пояснили неоднакове всмоктування хімічно близьких молекул.
2. Будова і межі фізико-хімічних порівнянь
Спільний стероїдний каркас має три шестичленні та одне п’ятичленне кільце. Поширені стероли містять 3β-гідроксильну групу й бічний ланцюг при C17. У холестерину 27 атомів вуглецю. C24-метил кампестеролу та C24-етил β-ситостеролу збільшують їх кількість до 28 і 29. Стигмастерол має додатковий транс-зв’язок C22=C23; брасикастерол поєднує цю ненасиченість із C24-метилюванням.
Сполука
Формула
Молярна маса, г/моль
Основна відмінність
Холестерин
C27H46O
386,7
C5=C6; без додаткового C24-алкілу
Кампестерол
C28H48O
400,7
C24-метил
β-Ситостерол
C29H50O
414,7
C24-етил
Стигмастерол
C29H48O
412,7
C24-етил і C22=C23
Брасикастерол
C28H46O
398,7
C24-метил і C22=C23
Кампестанол
C28H50O
402,7
Насичений 5α-аналог кампестеролу
Ситостанол
C29H52O
416,7
Насичений 5α-аналог ситостеролу
Відновлення C5=C6 змінює A/B-зчленування й локальні конформації, але не робить усі кільця пласкими: насичені шестичленні кільця зберігають просторові конформації. C22=C23 обмежує обертання саме навколо цього зв’язку; інші зв’язки хвоста залишаються рухливими. R/S-позначення залежать від пріоритетів замісників, тому правило «всі фітостероли 24R» неправильне.
Усі сполуки погано розчиняються у воді. Додатковий алкіл змінює ліпофільність, кристалічну упаковку та взаємодію з мембранами. Проте октанол/вода logP, водна розчинність, молекулярна площа моношару й розчинність у жовчній міцелі — різні властивості. Вони залежать від методу, температури, кристалічної форми та середовища. Розрахунковий logP не визначає універсальну «спорідненість до міцел у 3,5 раза» або клінічний відсоток LDL-зниження. Таблиця зберігає перевірювані структурні відмінності, не перетворюючи непідтверджені константи на єдину експериментальну матрицю.
3. Змішані міцели: розподіл, конкуренція й осадження
Під час травлення жовчні солі, фосфатидилхолін і лізофосфоліпіди, жирні кислоти й моноацилгліцероли утворюють змішані агрегати. Панкреатична ліпаза з коліпазою гідролізує триацилгліцероли; фосфоліпаза A2 бере участь у травленні фосфоліпідів. У хімусі співіснують міцели, везикули, емульсійні краплі й інші фази. Єдиного діаметра, критичної концентрації міцелоутворення чи співвідношення стерол/жовчна сіль для всіх прийомів їжі немає.
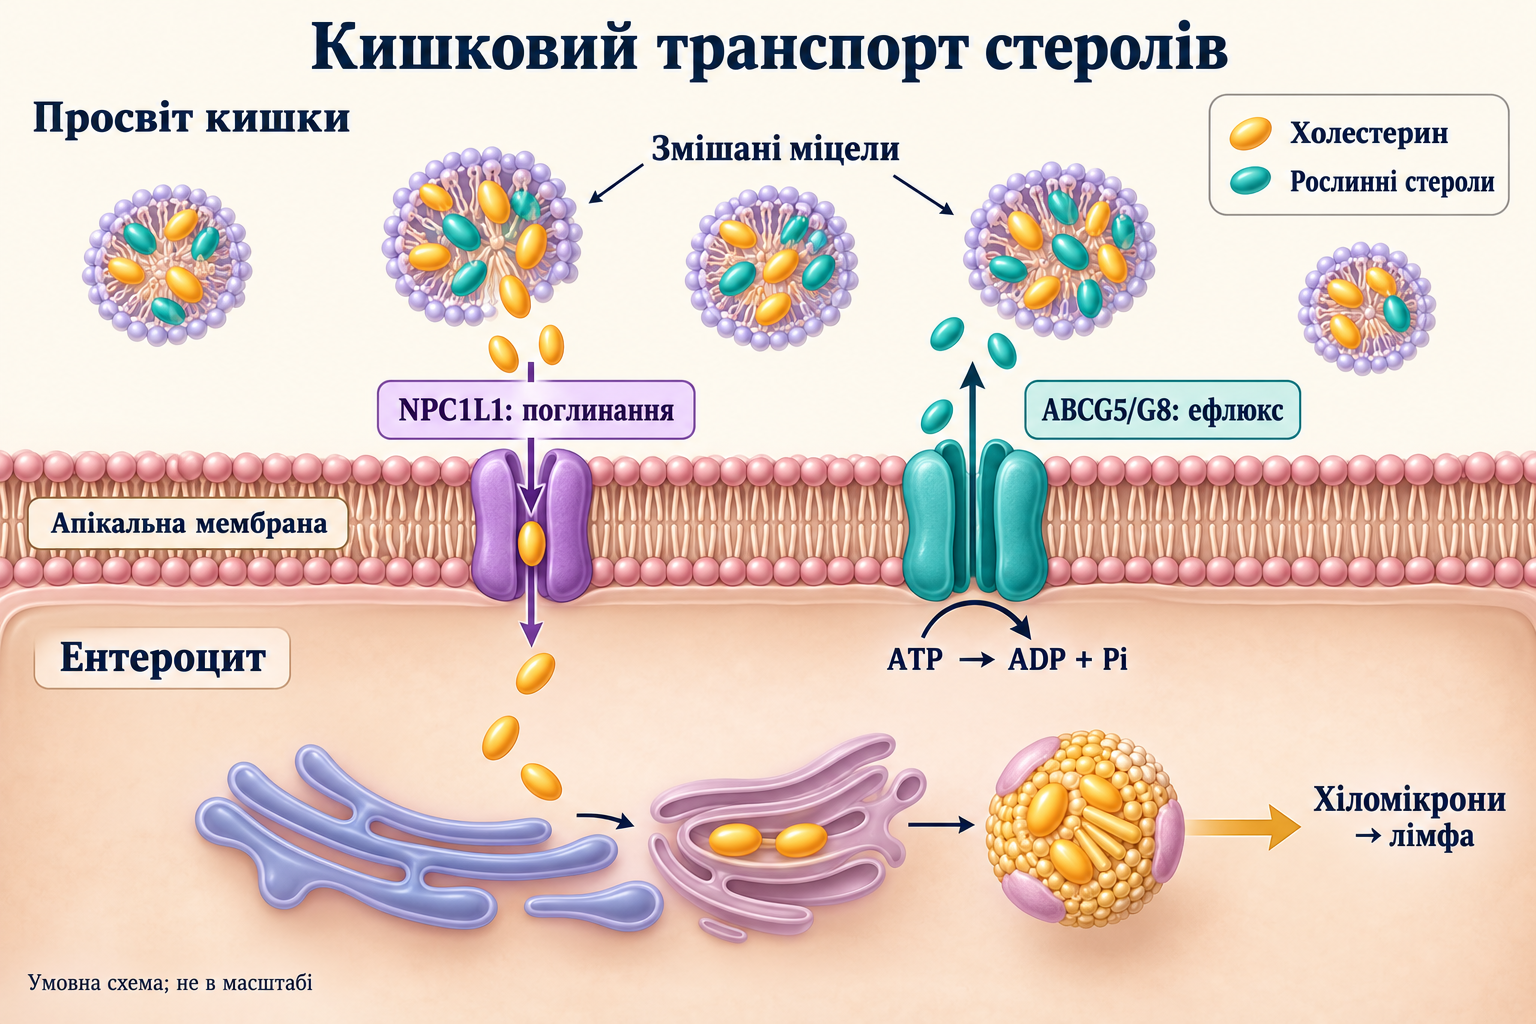
Міцелярна солюбілізація підвищує доступність гідрофобних стеролів біля щіткової облямівки. Неперемішуваний водний шар створює опір дифузії. Міцела не повинна входити до ентероцита цілою: стерол обмінюється між агрегатом, водою та мембраною. Швидкість обміну й місткість агрегату визначаються молекулярною упаковкою, а не лише гідрофобністю.
Armstrong and Carey (1987) вимірювали рівноважну розчинність у визначених розчинах жовчних солей. Mel'nikov et al. (2004) досліджували харчові змішані міцели in vitro. Дані підтримують роль структури й конкуренції за солюбілізацію, але не доводять, що ситостанол завжди має найбільшу спорідненість, а весь витіснений холестерин миттєво кристалізується у людини.
Термодинаміку перенесення можна записати:
ΔGtransfer∘=μmicelle∘−μwater∘=−RTlnKp
μ∘ — стандартний хімічний потенціал, R — газова стала, T — абсолютна температура в кельвінах, Kp — безрозмірна константа розподілу за узгоджених стандартних станів. Від’ємна ΔG∘ означає перевагу міцелярного середовища за цих умов. Це не вимір індивідуальної відповіді на добавку; Kp не дорівнює автоматично октанол/вода P.
Коли розчинений холестерин перевищує рівноважну розчинність певної фази, можливе пересичення:
S=CsatC
C і Csat мають однакові одиниці; S>1 означає пересичення. Осадження, співкристалізація та утворення моногідрату холестерину можливі, але кінетика залежить від складу й часу. Кристалізація у модельній жовчі не є обов’язковим клінічно встановленим етапом кожної кишкової відповіді. Обґрунтований висновок обережніший: фітостероли зменшують доступність холестерину для поглинання й збільшують виведення невсмоктаних стеролів. Мікробіота може перетворювати частину холестерину на копростанол.
У Racette et al. (2010) 18 дорослих проходили контрольовані перехресні харчові періоди по чотири тижні. Порівняно з 59 мг/добу, 459 і 2059 мг/добу збільшували фекальне виведення холестерину й зменшували абсорбцію; LDL-C достовірно знижувався за найбільшої дози. Це пряме дослідження стерольного балансу, але воно не визначає незмінне 40–60% пригнічення всмоктування для всіх продуктів і людей.
4. NPC1L1: захоплення, домени й ендоцитоз
Ген NPC1L1 розташований у 7p13 і містить 20 екзонів. Альтернативний сплайсинг утворює різні ізоформи, тому довжину однієї послідовності не можна переносити на всі експериментальні конструкції. Загальна архітектура містить понад 1300 амінокислот і 13 трансмембранних сегментів.
NPC1L1 розташований на апікальній поверхні ентероцитів. Людський білок має понад 1300 амінокислот і 13 трансмембранних сегментів, стерол-сенсорну ділянку та великі позаклітинні N-кінцевий, середній і C-кінцевий домени. Altmann et al. (2004) встановили критичну роль у всмоктуванні холестерину на нокаутних мишах. Davis et al. (2004) показали участь також у поглинанні фітостеролів. Транспорт не слід називати цілком невибірковим: системну експозицію визначають кілька послідовних бар’єрів.
NTD містить стерол-зв’язувальну порожнину; 3QNT характеризує людський N-кінцевий домен. Константи дисоціації й переліки залишків потребують зазначення білка, ліганду та методу; універсальні значення для холестерину й β-ситостеролу тут не приписуються всім структурам.
Huang et al. (2020) отримали кріо-ЕМ структури NPC1L1 щура: апо-форму 6V3F і 6V3H із потужним аналогом ezetimibe-PS. У відкритій формі порожнина NTD доступна; поворот приблизно на 60° сполучає її з внутрішнім тунелем. Аналог інгібітора перекриває цей шлях. «Закрита» конформація доменів не означає відсутності тунелю: він утворюється, але зайнятий інгібітором. Це підтримує модель доставки до мембрани, а не показує кожен етап абсорбції у людини.
Ge et al. (2008) пов’язали поглинання з клатриновим ендоцитозом у клітинній системі. Li et al. (2014) встановили, що C-кінцевий мотив YVNXXF розпізнає адаптер Numb, який бере участь у залученні клатрину/AP-2. Пряме універсальне розпізнавання лише μ2 AP-2 було б неточним. Мембранна доставка, ендоцитоз і повернення NPC1L1 на поверхню пов’язані, але різні; їхній внесок залежить від моделі. Езетиміб взаємодіє з NPC1L1 і зменшує абсорбцію; структурні дані не доводять зупинки всіх клітинних везикул.
У людини NPC1L1 є також на каналікулярній мембрані гепатоцитів. Temel et al. (2007) досліджували його вплив на біліарний холестерин, зокрема у трансгенній моделі. Відмінності людської печінки й звичайної мишачої моделі важливі для перенесення висновків.
5. ABCG5/ABCG8: зворотний потік і компартменти
Сусідні гени ABCG5 і ABCG8 на хромосомі 2p21 кодують напівтранспортери з N-кінцевим нуклеотид-зв’язувальним і C-кінцевим трансмембранним доменами. Гетеродимеризація потрібна для транспорту білків і функції. Комплекс працює на апікальній мембрані ентероцита й каналікулярній мембрані гепатоцита. У першому випадку експорт спрямований у просвіт кишки, у другому — у жовч; ці напрямки не можна міняти місцями.
Lee et al. (2016) визначили людську структуру без нуклеотиду 5DO7 із роздільністю 3,9 Å. Кожна субодиниця має шість трансмембранних спіралей. Два складені нуклеотидні сайти каталізують нерівнозначно: дані показують асиметрію, а не дві однакові активні АТФази. Зв’язування та гідроліз АТФ поєднані зі змінами мембранних доменів. ATP+H2O→ADP+Pi описує енергетичну реакцію, але не встановлює фіксовані «дві АТФ на один стерол».
Комплекс експортує холестерин і рослинні стероли. Виключне розпізнавання «чужого» C24-алкілу одним статичним карманом — спрощення. Захисну роль підтверджують генетичні та функціональні експерименти: втрата функції різко підсилює накопичення фітостеролів. Repa et al. (2002) показали регуляцію через LXR, Yu et al. (2002) — збільшення біліарної секреції й зменшення абсорбції за надекспресії у мишей. Це не встановлює універсальної потрійної швидкості експорту фітостеролів у людини.
Частина холестерину в ентероциті етерифікується SOAT2/ACAT2 і входить до ApoB-48-хіломікронів за участі MTP. Вони надходять у лімфу, потім у кров; ремнанти доставляють ліпіди печінці. Невелика всмоктана частина фітостеролів теж досягає печінки, де ABCG5/G8 створює другий експортний бар’єр. Низькі рівні плазми відображають мале всмоктування та ефективне виведення, а не абсолютну відсутність транспорту.
Холестерин переважно всмоктується краще рослинних стеролів; кампестерол часто краще ситостеролу, станоли — ще гірше. Відсотки залежать від молекули й методу. Salen et al. (1970) виявили всмоктування ситостеролу до 5% надходження, холестерину — 45–54%. Отже, «всі фітостероли строго менше 1%» неправильно. Рівні понад один мікромоль на літр також не можна називати субмікромолярними.
6. Ситостеролемія: порушення захисту
Біалельні патогенні варіанти ABCG5 або ABCG8 спричиняють аутосомно-рецесивну ситостеролемію. Berge et al. (2000) і Lu et al. (2001) пов’язали хворобу з цими генами. Порушуються кишковий експорт і біліарне виведення. Прояви неоднорідні: ксантоми, ранній атеросклероз, гемоліз, стоматоцитоз, великі тромбоцити й тромбоцитопенія мають різні поєднання. Холестерин буває підвищеним, іноді значно; нормальний звичайний аналіз не виключає хвороби.
Ліпідний профіль не замінює вимірювання рослинних стеролів газовою чи рідинною хроматографією з мас-спектрометрією; генетика уточнює підозру. Включення стеролів у мембрани клітин крові допомагає пояснювати гематологічні прояви, але експериментальні eNOS, NLRP3 і стрес ЕР не є єдиною доведеною причиною всіх судинних подій.
Лікування проводить спеціаліст: обмежують надлишкові харчові стероли й зменшують абсорбцію, зокрема езетимібом. Раціон без жодної молекули стеролу практично неможливий. У Salen et al. (2004) 37 пацієнтів отримували езетиміб 10 мг/добу або плацебо; за вісім тижнів активне лікування знижувало ситостерол на 21%, кампестерол на 24%. Це не гарантовані 70–85%, не підтвердження усунення всіх змін крові й не випробування профілактики інфаркту. Збагачені стеролами/станолами продукти не підходять за підтвердженої ситостеролемії. Один гетерозиготний варіант потребує індивідуальної інтерпретації й не рівнозначний автоматично біалельній хворобі.
7. Печінковий зворотний зв’язок: SCAP, SREBP-2 і LDLR
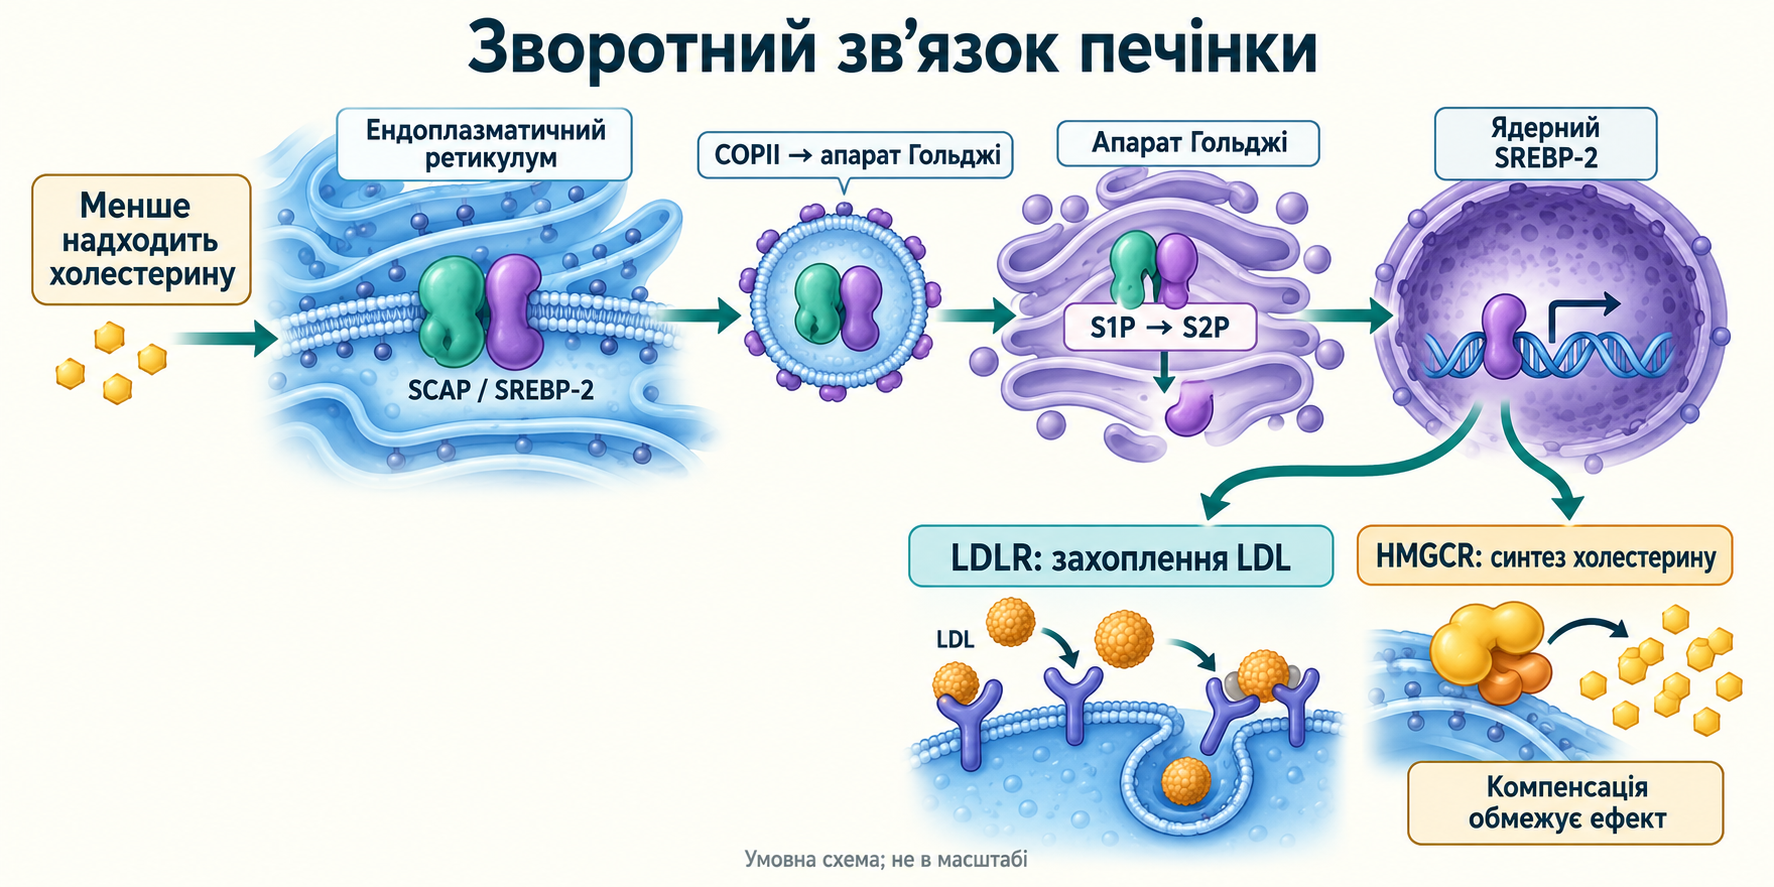
Менша доставка всмоктаного холестерину може змінювати регульований печінковий пул. SCAP супроводжує мембранний фактор SREBP-2; за достатньої стерольної доступності INSIG утримує комплекс в ендоплазматичному ретикулумі. Зниження доступного холестерину змінює взаємодії SCAP і доступність сигналу MELADL для COPII. Комплекс переміщується до Гольджі, де S1P розщеплює люмінальну петлю SREBP, а S2P здійснює внутрішньомембранний протеоліз. Вивільнений N-кінцевий транскрипційний фрагмент надходить до ядра.
Він активує програми поглинання й синтезу, включно з LDLR і HMGCR. Посилення LDL-рецепторного кліренсу може знижувати LDL-C, компенсаторний синтез частково обмежує ефект. Radhakrishnan et al. (2008) показали перемикання транспорту SREBP-2 біля 5 мол.% холестерину ЕР у клітинній моделі. Це експериментальний поріг сенсора, не клінічний аналіз і не доказ, що 2 г фітостеролів опускають холестерин кожної печінки нижче нього. Фіксовані відсотки зростання LDLR або синтезу також не можна приписувати всім споживачам.
Статини інгібують HMG-CoA-редуктазу, езетиміб діє на NPC1L1, рослинні стероли змінюють кишкову доступність холестерину. Різні точки впливу пояснюють можливий додатковий LDL-ефект; справжня «синергія» потребує аналізу взаємодій. Інші механізми LDL-рецептора й PCSK9 розглянуто у статті про берберин і дигідроберберин.
8. Клінічні ефекти, дози й поєднання
Ras et al. (2014) об’єднали 124 дослідження та 201 страту. При 0,6–3,3 г/добу середнє зниження LDL-C поступово зростало приблизно від 6 до 12%; користь збільшувалася до близько 3 г/добу. Даних понад 4 г/добу було мало, і їх не об’єднали в надійну окрему оцінку. Demonty et al. (2009) також моделювали неперервний дозовий відгук. Це підтримує помірне зниження за грамових доз, але не різке плато рівно на 2–2,5 г.
Насичувальна функція може бути емпіричною моделлю:
E(D)=ED50+DEmaxD
D — вільні стерольні/станольні еквіваленти в г/добу, E(D) — зниження LDL-C у відсотках, Emax — модельний максимальний ефект, ED50 — доза половини ефекту. Форма Emax не доводить ферментативної кінетики Міхаеліса–Ментен усередині міцели. Без оцінених параметрів формула не розраховує індивідуальної дози. Абсолютна зміна залежить від початкового LDL-C: 10% від 3,0 ммоль/л — 0,30 ммоль/л, від 5,0 — 0,50 ммоль/л.
Стероли й станоли мають зіставні середні LDL-ефекти при поширених досліджених дозах. Менше всмоктування станолів не доводить нульового ризику. Non-HDL-C і ApoB можуть змінюватися разом із LDL, відповідь тригліцеридів залежить від початкового стану; універсальні відсотки для кожної ліпопротеїнової фракції не обґрунтовані.
Додавання до статину може додатково знижувати LDL-C, але порівняння з «трьома подвоєннями статинової дози без токсичності» неправильне. Ліки різняться потужністю, дозовим відгуком і доказами щодо наслідків. За високого ризику харчовий продукт не замінює лікування з доведеною клінічною користю.
У Lin et al. (2011) 21 учасник проходив три тритижневі періоди: контроль, езетиміб 10 мг/добу та езетиміб із 2,5 г/добу фітостеролів. Середній LDL-C становив 129, 108 і 101 мг/дл; поєднання підсилювало вплив на баланс холестерину. Це коротке невелике дослідження без статину у порівнюваній схемі й без серцево-судинних подій. Воно не встановлює універсальних додаткових 4–7% для будь-якої потрійної терапії. IMPROVE-IT (Cannon et al., 2015) вивчало езетиміб зі статином після гострого коронарного синдрому; ці результати не можна переносити на фітостерольну добавку.
9. Форма продукту, гідроліз і нутрієнти
Етерифікація гідроксилу полегшує включення стеролу у жирову матрицю. Маса ефіру містить жирну кислоту: 2 г ефірів не дорівнюють 2 г вільних еквівалентів. Карбоксилестерліпаза бере участь у травному гідролізі. Умовна реакція:
Sterol−O−CO−R+H2O→Sterol−OH+R−COOH
R — вуглеводнева частина жирної кислоти. Дисперсія, склад і гідроліз визначають люмінальну доступність. Правильно сформульовані вільні стероли теж дієві: Richelle et al. (2004) порівняли обидві форми в напої у 26 чоловіків і виявили схоже зниження абсорбції холестерину. Низька водна розчинність сама по собі не робить усі вільні форми неефективними.
У тому ж короткому перехресному дослідженні знижувалася біодоступність β-каротину й α-токоферолу. Це показник засвоєння в конкретному експерименті, не автоматичний діагноз дефіциту. Токоферол плазми оцінюють з урахуванням ліпопротеїнових переносників. Каротиноїди реагують неоднаково; твердження «A, D, K ніколи не змінюються» надмірно категоричне. Різні овочі й фрукти підтримують надходження каротиноїдів, проте одна порція не гарантує відсутності змін у кожної людини.
Приймання з їжею допомагає включенню у травні агрегати. Жир стимулює холецистокінін, виділення жовчі й панкреатичну секрецію, але не встановлює універсального мінімуму 10–15 г жиру чи відсутності жовчі натще. Важливі досліджена формула та інструкція; збільшувати жирність тільки заради добавки не потрібно.
10. Застосування та невизначеність
Ситуація
Значення доказів
Дорослий із підвищеним LDL-C
Збагачений продукт може дати помірне додаткове зниження у складі раціону; рішення враховує загальний ризик
Призначені статин чи езетиміб
Додатковий ліпідний ефект можливий; мету й поєднання погоджують із лікарем
Підозра на сімейну гіперхолестеринемію у дитини
Потрібна спеціальна діагностика; продукт не замінює терапії й не визначає єдиного дитячого режиму
Ситостеролемія
Уникати збагачених стеролами/станолами продуктів і лікувати порушення транспорту
Вагітність, лактація, маленька дитина
Недостатньо даних для самостійного призначення; звичайна рослинна їжа відрізняється від добавок
Відповідь оцінюють повторним ліпідним профілем через кілька тижнів сталого режиму, враховуючи харчування, ліки й дотримання схеми. Відсутність відповіді не доводить дефекту NPC1L1; підвищені стероли плазми теж не є простим самостійним тестом гіперабсорбції без клінічного контексту.
Переважають короткі випробування ліпідів. Розглянуті докази не включають надійного дослідження, яке встановлює зниження інфарктів чи смертності саме від збагачення фітостеролами. Генетичні хвороби, спостережні асоціації та тваринні експерименти інформують про механізми й ризики, але не замінюють такого випробування. Обґрунтована позиція поєднує підтверджене зниження LDL, багатокомпонентний кишковий бар’єр і невизначеність довгострокових наслідків.
Часті питання
Чи доведено, що фітостероли запобігають інфаркту?
Доведено зниження LDL-C. Результати випробувань езетимібу зі статином не встановлюють такого самого ефекту збагачених продуктів; пряме зменшення серцево-судинних подій не підтверджене.
Чи станоли зовсім не всмоктуються?
Вони всмоктуються значно менше, ніж холестерин і багато стеролів. Низька абсорбція не означає абсолютного нуля або доведеної відсутності ризику.
Чи всі вільні стероли неефективні?
Ні. Важливі дисперсія та харчова матриця; рандомізоване дослідження напою показало подібне зменшення абсорбції з вільними й етерифікованими стеролами.
Чи потрібно перевищувати 3 г/добу?
Універсальної індивідуальної дози немає. Середній ефект зростає приблизно до 3 г/добу; вищі дози досліджені гірше й не обґрунтовують самостійного збільшення.
Кому не підходять збагачені продукти?
Їх уникають за підтвердженої ситостеролемії. Даних недостатньо для самостійного призначення під час вагітності, грудного вигодовування або в ранньому дитинстві.