
Fitosteroles y fitoestanoles: micelas, NPC1L1 y ABCG5/G8
Estructura de los esteroles vegetales, competencia micelar, captación por NPC1L1, eflujo ABCG5/G8 y retroalimentación hepática. LDL-C, sitosterolemia, combinaciones, formulación y límites de seguridad clínica.
Los fitosteroles son lípidos vegetales cuya estructura se parece a la del colesterol. Sus análogos con el enlace C5=C6 saturado se denominan fitoestanoles. Su incorporación a la dieta puede reducir la absorción intestinal del colesterol y el colesterol de las lipoproteínas de baja densidad (LDL-C). Sin embargo, mejorar un valor de laboratorio no demuestra que se prevenga un infarto. Este artículo relaciona estructura química, física micelar, transporte celular y resultados clínicos, diferenciando los modelos experimentales de las conclusiones en seres humanos.
1. Biosíntesis vegetal y conjunto de esteroles alimentarios
Animales y plantas utilizan el escualeno-2,3-epóxido como precursor. La lanosterol sintasa animal y la cicloartenol sintasa de las plantas superiores dirigen su ciclación por rutas distintas. En las plantas, la S-adenosilmetionina aporta grupos metilo a las esterol-C-metiltransferasas SMT1/SMT2; las modificaciones de la cadena lateral generan diversidad de fitosteroles. Esto no significa que todas las plantas carezcan por completo de colesterol ni que todos los eucariotas compartan una única ruta.
Los esteroles se insertan en la bicapa fosfolipídica: el hidroxilo interactúa con la región polar y los anillos y la cadena lateral se sitúan entre las cadenas acilo. Modifican el empaquetamiento, la permeabilidad y el comportamiento de fase. En membranas modelo pueden coexistir fases líquidas ordenadas y desordenadas. Los microdominios de las células vivas son dinámicos; explicarlos únicamente por un esqueleto esterólico perfectamente plano simplificaría demasiado su biología. La relación entre composición y daño lipídico se aborda en astaxantina y oxidación de membranas.
Aceites vegetales, frutos secos, semillas, cereales y legumbres contienen esteroles libres, ésteres y glucósidos. La ingesta habitual se mide en cientos de miligramos, mientras que muchos ensayos de alimentos enriquecidos usan cantidades de gramos. En el intestino coinciden con el colesterol alimentario y el secretado en la bilis. Por ello, el mecanismo también resulta relevante cuando se ingiere poco colesterol: la aportación biliar sigue siendo importante.
Los efectos del sitosterol sobre el colesterol se investigan desde mediados del siglo XX. Introducir ésteres de estanol en una matriz grasa alimentaria fue un avance práctico. En el ensayo aleatorizado de un año de Miettinen et al. (1995), la margarina con éster de estanol redujo LDL-C; se estudiaron lípidos sanguíneos, no episodios cardiovasculares. Los posteriores descubrimientos de ABCG5/ABCG8 y NPC1L1 ayudaron a explicar la distinta absorción de moléculas tan parecidas.
2. Estructura y límites de las comparaciones fisicoquímicas
El esqueleto esteroideo común tiene tres anillos de seis miembros y uno de cinco. Los esteroles habituales presentan un grupo 3β-hidroxilo y una cadena lateral en C17. El colesterol contiene 27 carbonos. El metilo en C24 del campesterol y el etilo del β-sitosterol aumentan esa cifra a 28 y 29. El estigmasterol posee además un doble enlace trans C22=C23; el brassicasterol combina ese enlace con la metilación en C24.
| Compuesto | Fórmula | Masa molar, g/mol | Diferencia principal |
|---|---|---|---|
| Colesterol | 386,7 | C5=C6; sin alquilo adicional en C24 | |
| Campesterol | 400,7 | Metilo en C24 | |
| β-Sitosterol | 414,7 | Etilo en C24 | |
| Estigmasterol | 412,7 | Etilo en C24 y C22=C23 | |
| Brassicasterol | 398,7 | Metilo en C24 y C22=C23 | |
| Campestanol | 402,7 | Análogo 5α saturado del campesterol | |
| Sitostanol | 416,7 | Análogo 5α saturado del sitosterol |
La reducción de C5=C6 cambia la unión de los anillos A/B y sus conformaciones locales, pero no vuelve planos todos los anillos: los anillos saturados de seis miembros mantienen conformaciones tridimensionales. C22=C23 impide la rotación alrededor de ese enlace; otros enlaces de la cadena siguen siendo móviles. Las asignaciones R/S dependen de las prioridades de los sustituyentes y no pueden sustituirse por «todos los fitosteroles son 24R».
Todos se disuelven poco en agua. Un alquilo adicional modifica lipofilia, empaquetamiento cristalino e interacción con membranas. No obstante, el octanol/agua, la solubilidad acuosa, el área molecular en una monocapa y la solubilidad en una micela biliar son propiedades distintas. Sus valores dependen del método, temperatura, forma cristalina y medio. Un calculado no determina una «afinidad micelar 3,5 veces mayor» universal ni el descenso clínico del LDL-C. La tabla conserva diferencias estructurales verificables sin presentar constantes no corroboradas como una matriz experimental única.
3. Micelas mixtas: distribución, competencia y precipitación
Durante la digestión, sales biliares, fosfatidilcolina y lisofosfolípidos, ácidos grasos y monoacilgliceroles forman agregados mixtos. La lipasa pancreática con colipasa hidroliza triacilgliceroles; la fosfolipasa A2 participa en la digestión fosfolipídica. En el contenido intestinal coexisten micelas, vesículas, gotas de emulsión y otras fases. No existe un diámetro, concentración micelar crítica o relación esterol/sal biliar aplicable a todas las comidas.
La solubilización micelar aumenta la disponibilidad de esteroles hidrófobos cerca del borde en cepillo. La capa acuosa no agitada opone resistencia a la difusión. La micela no tiene que entrar intacta en el enterocito: el esterol puede intercambiarse entre agregado, agua y membrana. La velocidad de intercambio y la capacidad del agregado dependen del empaquetamiento molecular, además de la hidrofobicidad.
Armstrong y Carey (1987) midieron solubilidad de equilibrio en soluciones definidas de sales biliares. Mel'nikov et al. (2004) estudiaron micelas alimentarias mixtas in vitro. Apoyan la importancia de la estructura y de la competencia por solubilización, pero no demuestran que el sitostanol tenga siempre la máxima afinidad y que todo colesterol desplazado cristalice inmediatamente en seres humanos.
La termodinámica de transferencia puede expresarse así:
es el potencial químico estándar, la constante de los gases, la temperatura absoluta en kelvin y una constante de distribución adimensional con estados estándar definidos coherentemente. Una negativa indica preferencia por el entorno micelar en esas condiciones. No mide la respuesta individual al suplemento; no equivale automáticamente a octanol/agua.
Si el colesterol disuelto supera la solubilidad de equilibrio de una fase especificada, puede existir sobresaturación:
y tienen las mismas unidades; indica sobresaturación. Precipitación, cocristalización y formación de monohidrato de colesterol son posibles, pero su cinética depende del medio y del tiempo. La cristalización observada en bilis modelo no constituye una etapa clínica obligatoria de toda respuesta intestinal a fitosteroles. La conclusión respaldada es más limitada: reducen la disponibilidad de colesterol para su captación y aumentan la eliminación de esteroles no absorbidos. La microbiota puede convertir parte del colesterol en coprostanol.
En Racette et al. (2010), 18 adultos completaron periodos cruzados de alimentación controlada de cuatro semanas. Frente a 59 mg/día, 459 y 2059 mg/día de fitosteroles aumentaron la eliminación fecal de colesterol y redujeron su absorción; LDL-C descendió significativamente con la dosis más alta. Fue una medición directa del balance esterólico, pero no establece una inhibición invariable del 40–60% para todos los productos y personas.
4. NPC1L1: captura, dominios y endocitosis
El gen NPC1L1 se sitúa en 7p13 y contiene 20 exones. El empalme alternativo produce distintas isoformas; la longitud de una secuencia no debe asignarse a todas las construcciones experimentales. Su arquitectura general incluye más de 1300 aminoácidos y 13 segmentos transmembrana.
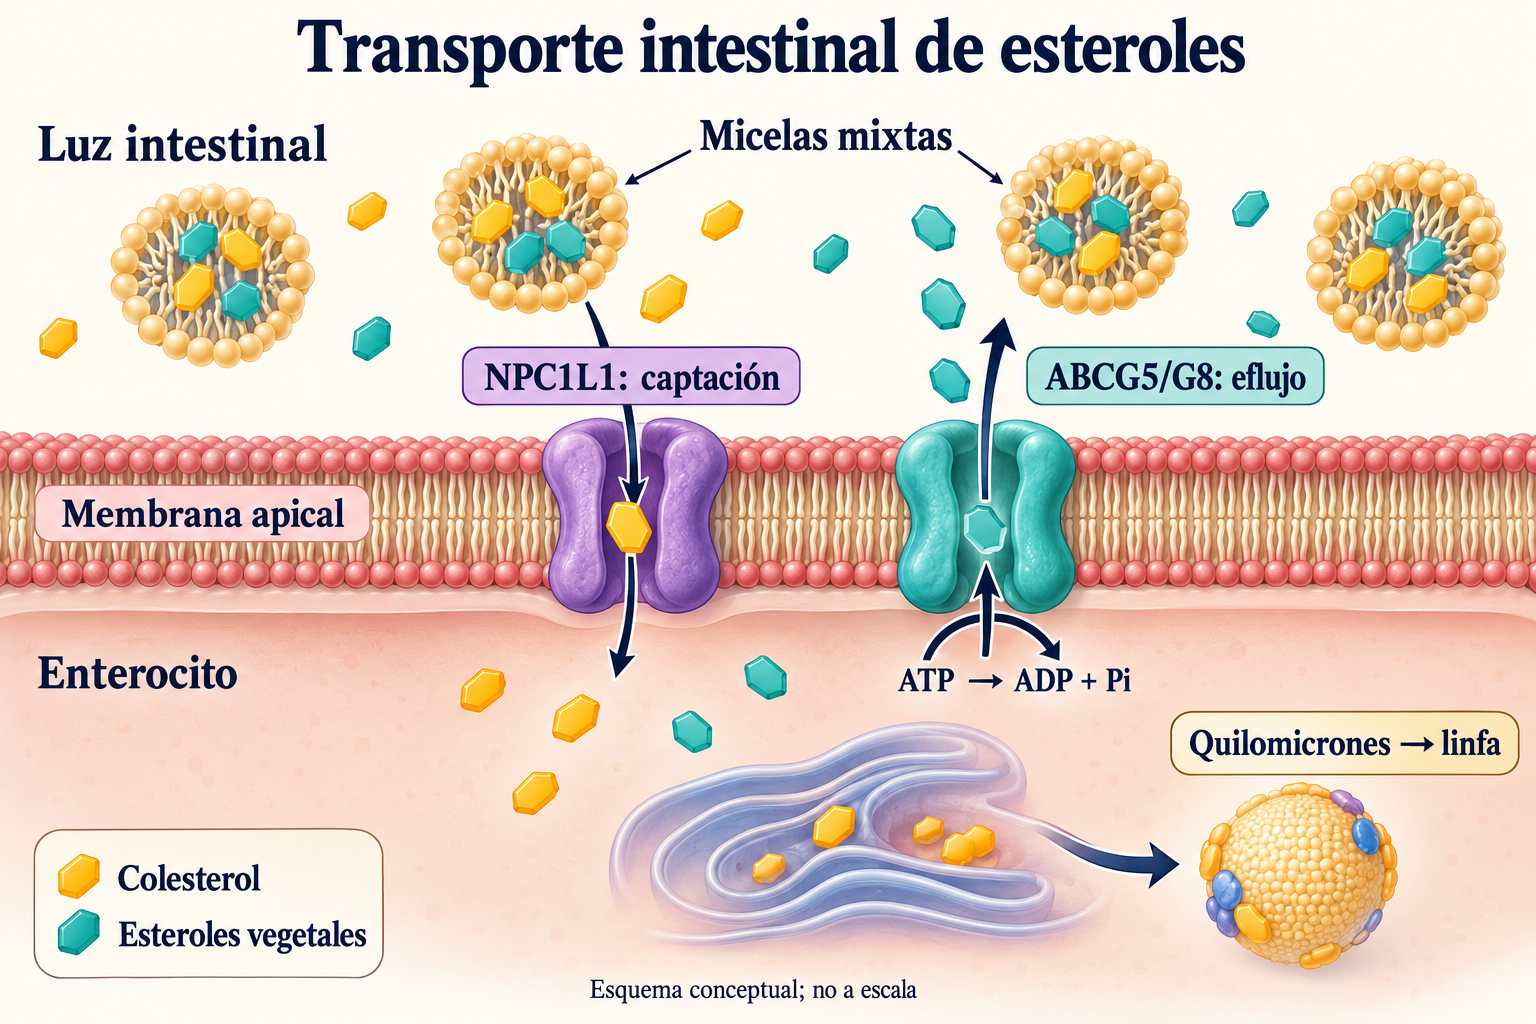
NPC1L1 se localiza en la superficie apical del enterocito. La proteína humana tiene más de 1300 aminoácidos y 13 segmentos transmembrana, una región sensible a esteroles y grandes dominios extracelulares N-terminal, medio y C-terminal. Altmann et al. (2004) demostraron su función esencial usando ratones con el gen inactivado. Davis et al. (2004) confirmaron su participación en la captación de fitosteroles. No debe calificarse el proceso de absolutamente indiscriminado: varias barreras sucesivas determinan la exposición sistémica.
El dominio N-terminal (NTD) contiene una cavidad de unión de esteroles. La estructura 3QNT caracteriza el NTD humano. Constantes de disociación y listas de residuos exigen especificar proteína, ligando y método; aquí no se asignan valores universales de colesterol y β-sitosterol a todas las estructuras.
Huang et al. (2020) obtuvieron estructuras por crio-EM de NPC1L1 de rata: la forma apo 6V3F y 6V3H con el potente análogo ezetimibe-PS. En la forma abierta la cavidad NTD es accesible; una rotación de unos 60° la conecta con un túnel interno. El análogo del inhibidor obstruye esa vía. «Cerrada» describe la disposición de dominios y no la ausencia de túnel: este se forma, pero contiene el inhibidor. El estudio respalda un modelo de entrega a la membrana; no observa cada etapa de absorción humana.
Ge et al. (2008) relacionaron la captación con endocitosis mediada por clatrina en un sistema celular. Li et al. (2014) identificaron Numb como el adaptador que reconoce el motivo C-terminal YVNXXF y participa en reclutar clatrina/AP-2. Atribuir ese reconocimiento exclusivamente y de forma directa a μ2 de AP-2 sería incorrecto. Entrega a la membrana, endocitosis y reciclaje de NPC1L1 son procesos relacionados pero diferentes, cuya aportación depende del modelo. Ezetimiba se une a NPC1L1 y reduce la absorción; estas estructuras no implican que se detenga la formación de todas las vesículas celulares.
La NPC1L1 humana también aparece en la membrana canalicular hepatocitaria. Temel et al. (2007) estudiaron su influencia sobre colesterol biliar, incluyendo un modelo transgénico. La diferencia entre hígado humano y ratón convencional condiciona la extrapolación.
5. ABCG5/ABCG8: flujo inverso y compartimentos
Los genes vecinos ABCG5 y ABCG8 del cromosoma 2p21 codifican semitransportadores con dominio N-terminal de unión de nucleótidos y dominio C-terminal transmembrana. Su heterodimerización es necesaria para tráfico y función. El complejo ocupa las membranas apical del enterocito y canalicular del hepatocito. En la primera exporta hacia la luz intestinal; en la segunda, hacia la bilis. Es esencial mantener esas direcciones.
Lee et al. (2016) determinaron la estructura humana sin nucleótidos 5DO7 a 3,9 Å. Cada subunidad aporta seis hélices transmembrana. Los dos sitios compuestos de nucleótidos no son catalíticamente equivalentes: los datos indican asimetría, no dos ATPasas activas idénticas. Unión e hidrólisis de ATP se acoplan a cambios en los dominios de membrana. representa el suministro energético, pero no establece una estequiometría fija de dos ATP por esterol.
El complejo exporta colesterol y esteroles vegetales. Su función no se reduce a reconocer un alquilo C24 «extraño» mediante un único bolsillo estático. Experimentos genéticos y funcionales confirman su protección: perder su actividad aumenta intensamente la acumulación de fitosteroles. Repa et al. (2002) demostraron regulación por LXR y Yu et al. (2002), mayor secreción biliar y menor absorción con sobreexpresión en ratones. No establecen una velocidad universal de exportación de fitosteroles tres veces superior en humanos.
Dentro del enterocito, parte del colesterol se esterifica por SOAT2/ACAT2 y se incorpora a quilomicrones con ApoB-48 y participación de MTP. Estos pasan a linfa y después a sangre; sus remanentes entregan lípidos al hígado. La pequeña fracción de fitosteroles absorbidos también llega al hígado, donde ABCG5/G8 proporciona otra barrera de exportación. Concentraciones plasmáticas bajas reflejan poca absorción y eliminación eficaz, no ausencia absoluta de transporte.
El colesterol suele absorberse mucho mejor que los fitosteroles; campesterol suele superar a sitosterol y los estanoles se absorben todavía menos. Las cifras dependen de molécula y método. Salen et al. (1970) observaron absorción de sitosterol de hasta el 5% de la ingesta frente al 45–54% del colesterol. No es correcto afirmar que todos los fitosteroles permanecen estrictamente por debajo del 1%. Una concentración superior a un micromol por litro tampoco es «submicromolar».
6. Sitosterolemia: fallo de la barrera protectora
Variantes patógenas bialélicas de ABCG5 o ABCG8 causan sitosterolemia autosómica recesiva. Berge et al. (2000) y Lu et al. (2001) vincularon la enfermedad con estos genes. Se deterioran tanto exportación intestinal como eliminación biliar. Las manifestaciones son variables: xantomas, aterosclerosis precoz, hemólisis, estomatocitosis, plaquetas grandes y trombocitopenia aparecen en combinaciones diferentes. El colesterol puede elevarse, a veces mucho; un perfil lipídico habitual normal no excluye la enfermedad.
Se necesitan mediciones de esteroles vegetales mediante cromatografía gaseosa o líquida con espectrometría de masas; el estudio genético aclara la sospecha. Su incorporación a membranas de células sanguíneas ayuda a explicar los signos hematológicos, pero las vías experimentales eNOS, NLRP3 y estrés del retículo no equivalen a una única causa establecida de todos los episodios vasculares.
El tratamiento especializado limita el exceso de esteroles dietéticos y reduce su absorción, incluso con ezetimiba. Una dieta sin una sola molécula de esterol es impracticable. En el ensayo Salen et al. (2004), 37 pacientes recibieron ezetimiba 10 mg/día o placebo; a ocho semanas el sitosterol se redujo un 21% y el campesterol un 24% con tratamiento activo. No demuestra una respuesta garantizada del 70–85%, resolución de todas las anomalías sanguíneas ni prevención de infartos. Los productos enriquecidos con esteroles/estanoles son inadecuados en sitosterolemia confirmada. Una variante heterocigota aislada necesita interpretación individual y no equivale automáticamente a enfermedad bialélica.
7. Retroalimentación hepática: SCAP, SREBP-2 y LDLR
Una menor entrega de colesterol absorbido puede modificar el conjunto hepático regulado. SCAP acompaña al factor de transcripción membranario SREBP-2; cuando hay suficientes esteroles, INSIG retiene el complejo en el retículo endoplásmico. El descenso del colesterol accesible modifica interacciones de SCAP y disponibilidad de la señal MELADL para COPII. El complejo se desplaza al Golgi, donde S1P corta el bucle luminal de SREBP y S2P realiza proteólisis intramembrana. El fragmento transcripcional N-terminal liberado entra al núcleo.
Activa programas de captación y síntesis, incluidos LDLR y HMGCR. El mayor aclaramiento por receptores LDL puede reducir LDL-C; la síntesis compensatoria contrarresta parte del efecto. Radhakrishnan et al. (2008) demostraron un cambio de transporte alrededor del 5 mol.% de colesterol del retículo en un modelo celular. Es un umbral experimental del sensor, no un análisis clínico ni una prueba de que 2 g de fitosteroles sitúen a todos los hígados por debajo de él. Tampoco pueden atribuirse porcentajes fijos de aumento de LDLR o síntesis a todos los consumidores.
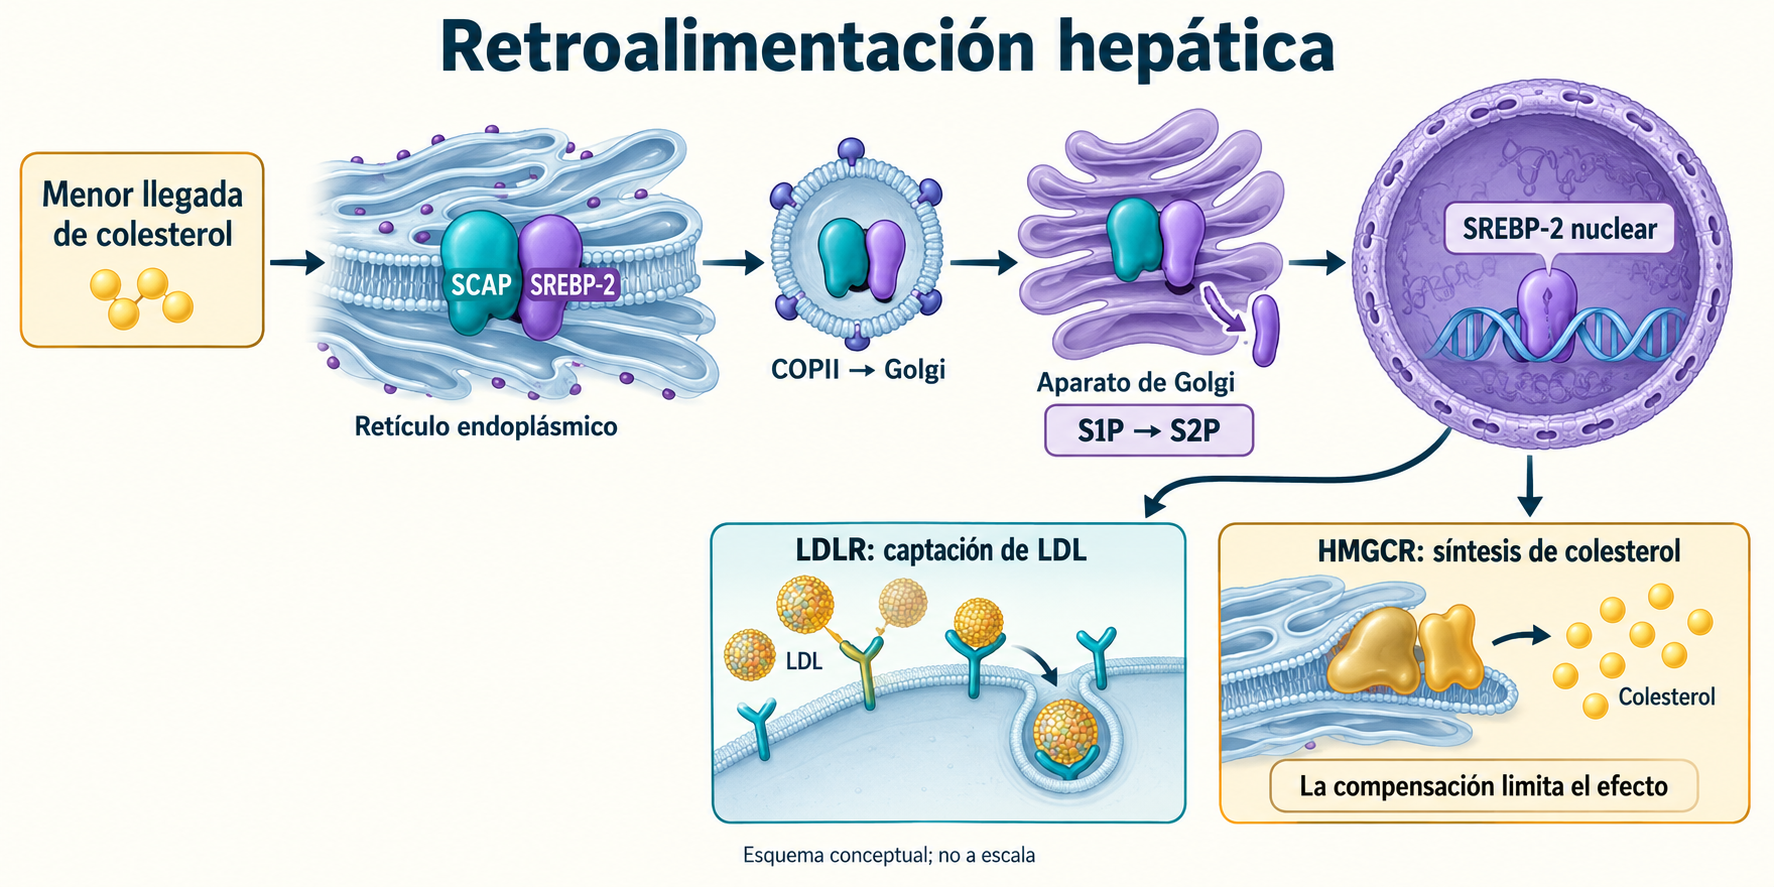
Las estatinas inhiben HMG-CoA reductasa, ezetimiba actúa sobre NPC1L1 y los fitosteroles modifican la disponibilidad intestinal. Diferentes puntos de actuación explican posibles efectos adicionales sobre LDL, pero «sinergia» requiere analizar interacciones. Otras vías del receptor LDL y PCSK9 se explican en berberina y dihidroberberina.
8. Efectos clínicos, dosis y combinaciones
Ras et al. (2014) reunieron 124 estudios y 201 estratos. Entre 0,6 y 3,3 g/día, el descenso medio de LDL-C aumentó gradualmente de aproximadamente 6 a 12%; el beneficio seguía creciendo hasta cerca de 3 g/día. Los estudios por encima de 4 g/día fueron escasos y dispersos, por lo que no se combinaron en una estimación separada fiable. Demonty et al. (2009) también modelaron una respuesta continua. Esto apoya un descenso moderado con dosis de gramos, sin una meseta brusca exactamente en 2–2,5 g.
Una función de saturación sirve como modelo empírico:
es la ingesta equivalente de esteroles/estanoles libres en g/día, la reducción porcentual de LDL-C, el efecto máximo ajustado y la dosis de la mitad de ese efecto. La forma Emax no demuestra cinética enzimática de Michaelis–Menten dentro de las micelas. Sin parámetros ajustados no calcula una dosis individual. El cambio absoluto depende del LDL-C basal: un 10% desde 3,0 mmol/l equivale a 0,30 mmol/l; desde 5,0, a 0,50 mmol/l.
Esteroles y estanoles presentan efectos medios comparables con ingestas habituales estudiadas. La menor absorción de estanoles no demuestra riesgo nulo. Non-HDL-C y ApoB pueden cambiar junto con LDL; la respuesta de triglicéridos depende de su valor inicial. No se justifican porcentajes universales para cada lipoproteína.
Añadir esteroles a una estatina puede reducir adicionalmente LDL-C, pero equipararlo con «triplicar las duplicaciones de dosis de estatina sin toxicidad» es incorrecto. Los fármacos difieren en potencia, respuesta a dosis y pruebas sobre desenlaces. En alto riesgo, un alimento no sustituye tratamientos con beneficio clínico establecido.
Lin et al. (2011) estudiaron 21 participantes en tres periodos de tres semanas: control, ezetimiba 10 mg/día y ezetimiba con 2,5 g/día de fitosteroles. LDL-C medio fue 129, 108 y 101 mg/dl respectivamente; la combinación reforzó los cambios del balance de colesterol. No incluía una estatina en esos regímenes ni episodios cardiovasculares. No establece un beneficio adicional universal del 4–7% para toda triple combinación. IMPROVE-IT (Cannon et al., 2015) estudió ezetimiba con estatina tras síndrome coronario agudo; esos desenlaces no pueden atribuirse a los fitosteroles.
9. Formulación, hidrólisis y nutrientes
Esterificar el hidroxilo facilita incorporar esteroles a una matriz grasa. La masa del éster incluye el ácido graso: 2 g de ésteres no equivalen a 2 g de esterol libre. La carboxil éster lipasa participa en la hidrólisis digestiva. La reacción conceptual es:
representa el grupo hidrocarbonado del ácido graso. Dispersión, composición e hidrólisis condicionan la disponibilidad luminal. Los esteroles libres bien formulados también funcionan: Richelle et al. (2004) compararon ambas formas en una bebida en 26 hombres y hallaron reducciones similares de absorción de colesterol. La baja solubilidad acuosa no vuelve ineficaz toda formulación libre.
El mismo ensayo cruzado corto redujo la biodisponibilidad de β-caroteno y α-tocoferol. Es una medida de absorción experimental, no un diagnóstico automático de déficit vitamínico. La interpretación del tocoferol plasmático debe considerar las lipoproteínas transportadoras. Cada carotenoide responde de manera distinta; afirmar que A, D y K nunca cambian es demasiado categórico. Una dieta variada con frutas y verduras ayuda a aportar carotenoides, pero una ración no garantiza evitar todos los cambios en cada persona.
Consumir el producto con comida favorece su integración en agregados digestivos. La grasa estimula colecistoquinina, salida de bilis y secreción pancreática; esto no implica un mínimo universal de 10–15 g de grasa ni ausencia de bilis en ayunas. Importan la formulación estudiada y sus instrucciones, sin necesidad de aumentar la grasa solo para tomar el suplemento.
10. Uso e incertidumbres pendientes
| Situación | Interpretación de las pruebas |
|---|---|
| Adulto con LDL-C alto | Un alimento enriquecido puede añadir una reducción moderada dentro de la dieta; la decisión depende del riesgo global |
| Estatina o ezetimiba prescrita | Es posible un efecto lipídico adicional; se acuerdan objetivos y combinación con el profesional tratante |
| Posible hipercolesterolemia familiar infantil | Requiere diagnóstico especializado; el alimento no sustituye terapia ni define una pauta pediátrica única |
| Sitosterolemia | Evitar productos enriquecidos y tratar el trastorno del transporte |
| Embarazo, lactancia o niños pequeños | No hay pruebas suficientes para autoadministrar productos enriquecidos; alimentos vegetales corrientes y suplementos son distintos |
Puede repetirse el perfil lipídico tras varias semanas de una pauta estable, considerando dieta, medicación y adherencia. La falta de respuesta no demuestra un defecto de NPC1L1; los fitosteroles plasmáticos elevados tampoco constituyen por sí solos una prueba sencilla de hiperabsorción sin contexto clínico.
Predominan ensayos breves sobre lípidos. Las pruebas consideradas no incluyen un ensayo fiable que demuestre menos infartos o muertes específicamente por enriquecer alimentos con fitosteroles. Enfermedades genéticas, asociaciones observacionales y experimentos animales informan sobre mecanismos y riesgos, pero no sustituyen ese ensayo. La posición sustentada combina descenso confirmado de LDL, una barrera intestinal de múltiples componentes e incertidumbre sobre los desenlaces a largo plazo.
Preguntas frecuentes
¿Previenen los fitosteroles el infarto?
Está confirmado el descenso de LDL-C. Ensayos de ezetimiba con estatinas no demuestran el mismo beneficio de alimentos enriquecidos; faltan pruebas directas sobre episodios cardiovasculares.
¿Los estanoles no se absorben en absoluto?
Se absorben mucho menos que el colesterol y muchos esteroles, pero una absorción baja no significa cero absoluto ni riesgo nulo demostrado.
¿Son ineficaces todos los esteroles libres?
No. Importan dispersión y matriz; un ensayo aleatorizado de una bebida encontró reducciones similares de absorción con esteroles libres y esterificados.
¿Debe superarse 3 g/día?
No hay una dosis individual universal. El beneficio medio crece hasta cerca de 3 g/día; dosis mayores están peor estudiadas y no justifican aumentarlas por cuenta propia.
¿Quién debe evitar los productos enriquecidos?
Se evitan en sitosterolemia confirmada. No hay pruebas suficientes para autoadministrarlos durante embarazo, lactancia o primera infancia.
Fuentes
- Ras RT, Geleijnse JM, Trautwein EA. LDL-cholesterol-lowering effect of plant sterols and stanols across different dose ranges: a meta-analysis of randomised controlled studies. Br J Nutr. 2014;112:214–219.
- Demonty I et al. Continuous dose-response relationship of the LDL-cholesterol-lowering effect of phytosterol intake. J Nutr. 2009;139:271–284.
- Huang CS, Yu X, Min X, Wang Z. Cryo-EM structures of NPC1L1 reveal mechanisms of cholesterol transport and ezetimibe inhibition. Sci Adv. 2020;6:eabb1989.
- Lee JY et al. Crystal structure of the human sterol transporter ABCG5/ABCG8. Nature. 2016;533:561–564.
- Altmann SW et al. Niemann-Pick C1 Like 1 protein is critical for intestinal cholesterol absorption. Science. 2004;303:1201–1204.
- Davis HR Jr et al. Niemann-Pick C1 Like 1 (NPC1L1) is the intestinal phytosterol and cholesterol transporter and a key modulator of whole-body cholesterol homeostasis. J Biol Chem. 2004;279:33586–33592.
- Berge KE et al. Accumulation of dietary cholesterol in sitosterolemia caused by mutations in adjacent ABC transporters. Science. 2000;290:1771–1775.
- Armstrong MJ, Carey MC. Thermodynamic and molecular determinants of sterol solubilities in bile salt micelles. J Lipid Res. 1987;28:1144–1155.
- Ge L et al. The cholesterol absorption inhibitor ezetimibe acts by preventing the endocytosis of NPC1L1. Cell Metab. 2008;7:508–519.
- Li PS et al. The clathrin adaptor Numb regulates intestinal cholesterol absorption through dynamic interaction with NPC1L1. Nat Med. 2014;20:80–86.
- Temel RE et al. Hepatic Niemann-Pick C1-like 1 regulates biliary cholesterol concentration and is a target of ezetimibe. J Clin Invest. 2007;117:1968–1978.
- Miettinen TA et al. Reduction of serum cholesterol with sitostanol-ester margarine in a mildly hypercholesterolemic population. N Engl J Med. 1995;333:1308–1312.
- Lu K et al. Two genes that map to the STSL locus cause sitosterolemia: genomic structure and spectrum of mutations involving sterolin-1 and sterolin-2, encoded by ABCG5 and ABCG8, respectively. Am J Hum Genet. 2001;69:278–290.
- Repa JJ et al. Regulation of ATP-binding cassette sterol transporters ABCG5 and ABCG8 by the liver X receptors alpha and beta. J Biol Chem. 2002;277:18793–18800.
- Yu L et al. Overexpression of ABCG5 and ABCG8 promotes biliary cholesterol secretion and reduces fractional absorption of dietary cholesterol. J Clin Invest. 2002;110:671–680.
- Salen G, Ahrens EH Jr, Grundy SM. Metabolism of beta-sitosterol in man. J Clin Invest. 1970;49:952–967.
- Salen G et al. Ezetimibe effectively reduces plasma plant sterols in patients with sitosterolemia. Circulation. 2004;109:966–971.
- Radhakrishnan A et al. Switch-like control of SREBP-2 transport triggered by small changes in ER cholesterol: a delicate balance. Cell Metab. 2008;8:512–521.
- Cannon CP et al. Ezetimibe added to statin therapy after acute coronary syndromes. N Engl J Med. 2015;372:2387–2397.
- Mel’nikov SM, Seijen ten Hoorn JW, Eijkelenboom AP. Effect of phytosterols and phytostanols on the solubilization of cholesterol by dietary mixed micelles: an in vitro study. Chem Phys Lipids. 2004;127:121–141.
- Racette SB et al. Dose effects of dietary phytosterols on cholesterol metabolism: a controlled feeding study. Am J Clin Nutr. 2010;91:32–38.
- Richelle M et al. Both free and esterified plant sterols reduce cholesterol absorption and the bioavailability of beta-carotene and alpha-tocopherol in normocholesterolemic humans. Am J Clin Nutr. 2004;80:171–177.
- Lin X et al. Combined effects of ezetimibe and phytosterols on cholesterol metabolism: a randomized, controlled feeding study in humans. Circulation. 2011;124:596–601.
- Noakes M et al. An increase in dietary carotenoids when consuming plant sterols or stanols is effective in maintaining plasma carotenoid concentrations. Am J Clin Nutr. 2002;75:79–86.
- Vuorio AF et al. Stanol ester margarine alone and with simvastatin lowers serum cholesterol in families with familial hypercholesterolemia caused by the FH–North Karelia mutation. Arterioscler Thromb Vasc Biol. 2000;20:500–506.
- Diener AC et al. STEROL METHYLTRANSFERASE 1 controls the level of cholesterol in plants. Plant Cell. 2000;12:853–870.
- Bouvier-Navé P, Husselstein T, Benveniste P. Two families of sterol methyltransferases are involved in the first and the second methylation steps of plant sterol biosynthesis. Eur J Biochem. 1998;256:88–96.
- RCSB PDB 3QNT. Crystal structure of the N-terminal domain of human NPC1L1.
- RCSB PDB 6V3F. Cryo-EM structure of rat NPC1L1 in apo state.
- RCSB PDB 6V3H. Rat NPC1L1 with ezetimibe-PS analogue.
- RCSB PDB 5DO7. Human ABCG5/ABCG8 heterodimer.
- PubChem. Cholesterol: molecular formula, stereochemical structure and molecular weight.
- PubChem. Campesterol: molecular formula, stereochemical structure and molecular weight.
- PubChem. beta-Sitosterol: molecular formula, stereochemical structure and molecular weight.
- PubChem. Stigmasterol: molecular formula, stereochemical structure and molecular weight.
- PubChem. Brassicasterol: molecular formula, stereochemical structure and molecular weight.
- PubChem. Campestanol: molecular formula, stereochemical structure and molecular weight.
- PubChem. Sitostanol: molecular formula, stereochemical structure and molecular weight.
- Association of rs2072183 SNP and serum lipid levels in the Mulao and Han populations. Primary genetic association study; NPC1L1 locus and gene organization.