Glikooksidlanish va AGElar: metilglioksal, RAGE va mitoxondriyalar
Turli AGElarning kimyosi, mitoxondrial nishonlar, ROS–PARP–GAPDH modeli, glioksalaza sikli va aralashuvlarning klinik chegaralari.
Turli AGElarning kimyosi, mitoxondrial nishonlar, ROS–PARP–GAPDH modeli, glioksalaza sikli va aralashuvlarning klinik chegaralari.
Glikooksidlanish shakarlarning oqsillar bilan reaksiyasini oksidlanish kimyosi bilan bog‘laydi. Natijada bitta «zararli AGE» emas, tuzilishi, hosil bo‘lish yo‘li va biologik ta’siri turlicha birikmalar paydo bo‘ladi. Ayrimlari oqsilning bitta aminokislota qoldig‘ini o‘zgartiradi; boshqalari oqsillar orasida ko‘ndalang bog‘ hosil qiladi. Ba’zilari RAGE retseptori tanishi mumkin bo‘lgan oqsil sirtini yaratadi, biroq bu xususiyatni barcha erkin AGE molekulalariga ko‘chirish mumkin emas. Mitoxondriyada muhim savol modifikatsiya mavjudligining o‘zi emas, balki uning qaysi oqsilda, qanday miqdorda va qanday funksional oqibat bilan yuz berganidir.
Glikatsiya — qaytaruvchi shakar yoki reaktiv karbonilning oqsil, lipid yoxud nuklein kislotadagi nukleofil guruh bilan ferment ishtirokisiz reaksiyasi. Uni glikozillanish bilan aralashtirmaslik kerak: glikozillanish fermentlar boshqaradigan jarayon bo‘lib, masalan, oqsillarga oligosaxaridlarning yoki O-GlcNAc guruhining qo‘shilishini o‘z ichiga oladi. O-GlcNAcylanish metabolik stress bilan o‘zgarishi mumkin, ammo u AGE hosil bo‘lishining sinonimi emas. Glikooksidlanish esa glikatsiya mahsulotlari yoki shakarlarning oksidlanishi bilan bog‘liq yo‘llarni bildiradi; barcha glikatsiya adduktilari hosil bo‘lishi uchun oksidlanish shart emas. [1, 2, 11–14, 27]
Eritmada glyukozaning katta qismi siklik α va β shakllarda bo‘ladi. Ochiq zanjirli aldegid shakli kam bo‘lsa ham, mutarotatsiya orqali boshqa shakllar bilan muvozanatda turadi va aminoguruhlar bilan reaksiyaga kirishishi mumkin. β anomerda katta o‘rinbosarlar qulay ekvatorial holatlarda joylashadi, lekin bu uning yagona shakl ekanini anglatmaydi. Shu sababli «glyukozaning deyarli hammasi β shaklda» degan tasvir kimyoni noto‘g‘ri soddalashtiradi. Reaksiya tezligi konsentratsiyadan tashqari pH, oqsilning mahalliy muhiti, aminoguruhning mavjudligi va oqsil yashash muddatiga bog‘liq. Uzoq yashovchi kollagen va ko‘z gavhari kristallinlari tez yangilanadigan hujayra oqsillari bilan bir xil tarixni yig‘maydi. Karbonil detoksikatsiyasi, proteoliz, tuzatish va yangi oqsil sintezi ham natijaga ta’sir qiladi.
Ochiq zanjirli aldegid lizin ε-aminoguruhi yoki N-terminal aminoguruhga qo‘shilib, avval karbinolamin, undan keyin qaytaruvchan Shiff asosini hosil qiladi:
Aldozadan hosil bo‘lgan bu mahsulot Amadori qayta tuzilishiga uchrashi mumkin; ketozalar uchun unga mos yo‘l Heyns qayta tuzilishidir. HbA1c gemoglobin β-zanjirining N-terminal valinidagi barqarorroq erta glikatsiya mahsulotini aks ettiradi. Uni barcha kechki AGElarning umumiy o‘lchovi deb bo‘lmaydi. Fruktozamin esa zardob oqsillarining glikatsiyasini, oqsil almashinuvi sharoitiga bog‘liq holda, qisqaroq davrda aks ettiradi. Argininning guanidino guruhi dikarbonil reaksiyalarida muhim, lekin uning kimyosi birlamchi aminoguruhning yuqoridagi sxemasi bilan aynan bir xil emas. [1–3, 11, 12]
Keyingi kimyo bir nechta yo‘lga tarmoqlanadi. Amadori mahsulotlarining oksidlanishi, shakarlarning metall katalizlaydigan autooksidlanishi, dastlabki glikatsiya oraliq mahsulotlarining parchalanishi va lipid peroksidlanishi reaktiv karbonillar manbai bo‘lishi mumkin. «Wolff yo‘li», «Namiki yo‘li» va Amadori mahsulotining oksidlanishi bir xil bosqichning turli nomlari emas. Kislorod radikallari bilan bog‘liq klassik reaksiya quyidagicha yoziladi:
Bu Fenton reaksiyasi oksidlovchi shikastlanish ehtimolini tushuntiradi, ammo har bir AGE aynan shu yo‘l bilan hosil bo‘lishini bildirmaydi. Masalan, karboksimetillizin (CML) shakarlardan ham, lipid oksidlanishidan keladigan karbonillardan ham paydo bo‘lishi mumkin. CML aniqlanishi uning yagona manbaini avtomatik ravishda ko‘rsatmaydi. [3, 11]
| Birikma | Asosiy kimyoviy xususiyat | Talqindagi cheklov |
|---|---|---|
| CML, karboksimetillizin | Lizin qoldig‘ining bir nuqtali modifikatsiyasi | O‘zi ko‘ndalang bog‘ emas; glikooksidlanish va lipooksidlanish manbalari bo‘lishi mumkin |
| CEL, karboksietillizin | Metilglioksal bilan bog‘liq lizin adduktilaridan biri | Umumiy AGE yukini yoki barcha MGO reaksiyalarini to‘liq aks ettirmaydi |
| MG-H1 | Argininning MGOdan kelib chiqadigan gidroimidazolon adduktilari orasida muhim turi | MG-H2 va MG-H3 bilan bir xil tuzilma yoki oddiy tautomer deb qaralmaydi |
| Pentozidin | Fluoresansli lizin–arginin ko‘ndalang bog‘i | Fluoresans bermaydigan AGElarni o‘lchamaydi |
| Glukozepan | Uzoq yashovchi oqsillarda uchraydigan fluoresanssiz lizin–arginin ko‘ndalang bog‘i | Hosil bo‘lishini barcha glikooksidlanish yo‘llari bilan tenglashtirish mumkin emas |
| Pirralin, argpirimidin | Mos ravishda 3-deoksiglukozon va MGO bilan bog‘liq mahsulotlar | Turli substrat va reaksiyalarni bildiradi |
| GOLD, GODIC, MOLD, MODIC | Glioksal yoki MGOdan hosil bo‘lishi mumkin bo‘lgan ko‘ndalang bog‘lar | Lizin–lizin va lizin–arginin mahsulotlari farqlanadi; nomlari o‘zaro almashtirilmaydi |
Pentozidinning tuzilishi, inson dermasidagi glukozepan va ko‘z gavharidagi MGO adduktilari alohida kimyoviy ishlarda o‘rganilgan. Bu turli mahsulotlarning mavjudligini ko‘rsatadi, ularning hammasi bir xil toksik ta’sirga ega ekanini emas. [13–15]
Metilglioksal (MGO, ) reaktiv α-oksoaldegiddir; glioksalning formulasi . Suvda ularning gidratlangan shakllari ham muvozanatda mavjud bo‘ladi. MGO uchun muhim endogen manba — glikolizning triozafosfatlari, glitseraldegid-3-fosfat (GAP) va digidroksiatsetonfosfat (DHAP). Ular parchalanish reaksiyalari orqali MGO bera oladi. Bu yon oqimni aldolaza yoki triozafosfatizomerazaning asosiy katalitik reaksiyasi bilan aynanlashtirish kerak emas. Aldolaza triozafosfatlarni yaratadi, triozafosfatizomeraza esa ularni o‘zaro aylantiradi; MGO hosil bo‘lishi ushbu metabolitlar kimyosining qo‘shimcha yo‘lidir. [3, 4, 32]
Glyukoza oqimi oshsa, triozafosfat havzasi va undan keladigan MGO oqimi o‘zgarishi mumkin. Biroq MGOning barqaror konsentratsiyasi faqat ishlab chiqarishga bog‘liq emas. Erkin plazma MGOsi, ekstraktdagi umumiy MGO va mahalliy matritsa ekspozitsiyasi bir xil miqdor emas. Glioksalaza tizimi, boshqa karbonil-metabolizmlovchi fermentlar, hujayra bo‘limlari va chiqarilish uning miqdorini belgilaydi. Shu bois «glyukoza ikki baravar oshsa, MGO ham aynan ikki baravar oshadi» kabi universal munosabat yo‘q.
Aminoketonlar metabolizmi ham karbonil manbai bo‘lishi mumkin. Aminoatsetonning semikarbazidga sezgir aminooksidaza, ya’ni AOC3/SSAO orqali oksidlanishi MGO hosil qiladi va vodorod peroksid bilan bog‘liq oksidlovchi yukni kuchaytirishi mumkin. Bunda odamlarda treonin-3-degidrogenaza (TDH) geni ifodalanuvchi psevdogen ekanini hisobga olish lozim: kemiruvchidagi treonin–aminoatseton yo‘lini odamdagi asosiy MGO manbai sifatida tasvirlash to‘g‘ri emas. Keton tanachalari va atseton metabolizmi, jumladan CYP2E1 bilan bog‘liq yo‘llar ham ayrim sharoitlarda karbonil oqimiga hissa qo‘shishi mumkin; bu fiziologik ketozning har qanday ko‘rinishini avtomatik ravishda toksik jarayon deb atashga asos bermaydi. [3, 4, 33]
MGO arginin, lizin va sistein bilan bir xil mahsulot yoki bir xil tezlikda reaksiyaga kirishmaydi. Argininda gidroimidazolonlar, jumladan MG-H1 hosil bo‘lishi mumkin; lizinda CEL va boshqa mahsulotlar paydo bo‘ladi. Sisteinning tiol guruhi bilan dastlabki reaksiyalar qaytaruvchan bo‘lishi mumkin. Arginindan kelib chiqadigan argpirimidin alohida kimyoviy tuzilishga ega. MG-H1, MG-H2 va MG-H3ni bitta addukting oddiy uch xil nomi deb yozish noto‘g‘ri. [3, 4, 15]
Soddalashtirilgan elementar reaksiya uchun:
Bu yerda reaktiv nukleofilni, esa belgilangan sharoit va mahsulot uchun tezlik konstantasini bildiradi. Lekin oqsil ichidagi lizin yoki argininning mavjudligi, protonlanishi va mikroatrofi o‘zgaradi; eritmadagi erkin aminokislota uchun o‘lchangan tezlikni to‘liq oqsilga to‘g‘ridan-to‘g‘ri ko‘chirish mumkin emas. Har qanday oqsilga tatbiq qilinadigan qat’iy «arginin lizindan falon marta tezroq» koeffitsiyenti bu murakkablikni yashiradi. Funksional talqin uchun addukting joyi va shu joyning bandlik ulushi ham kerak.
Mitoxondrial matritsa ko‘pincha sitozoldan ishqoriyroq bo‘ladi. Nukleofil guruhning protonlanmagan ulushi pHga bog‘liq:
Bu tenglama muayyan aminoguruh uchun kimyoviy sezgirlikni tushuntirishga yordam beradi, ammo oqsil ichidagi pKₐ eritmadagi erkin aminokislota qiymatidan farq qilishi mumkin. Matritsa pHining o‘zgarishi barcha oqsillar glikatsiyasini bir xil nisbatda oshirmaydi. Mahalliy metabolit konsentratsiyasi, oqsilning zich joylashuvi, konformatsiyasi, yangilanishi va himoya tizimlari ham hisobga olinadi. Yangi oqsil importi, proteazalar, mitoxondrial tarmoq dinamikasi va mitofagiya shikastlangan komponentlar yig‘ilishiga qarshi turadi. Yuqori oqsil zichligi «eksponensial glikatsiya»ni isbotlamaydi.
Diabetik kalamush buyragi bo‘yicha ishlar mitoxondrial glikatsiya, nafas olishning o‘zgarishi va ortiqcha superoksid hosil bo‘lishi o‘rtasidagi aloqani ko‘rsatgan. Rosca va hamkorlarining 2002-yilgi tajribasi reaktiv MGOning buyrak mitoxondriyalariga ta’sirini o‘rgangan; 2005-yilgi ish esa diabetdagi mitoxondrial oqsil glikatsiyasini, jumladan III kompleks bilan bog‘liq o‘zgarishlarni muhokama qilgan. 2005-yilgi kuzatuvda gidroimidazolon miqdori III kompleks faolligining pasayishi bilan korrelyatsiyalangan. Bularni odamlarda barcha shikastlanishning sababi I kompleksdagi bitta aniqlangan arginin ekanining isboti deb talqin qilib bo‘lmaydi. [16, 17]
I kompleks NADHdan ubixinonga elektron uzatadi. NDUFV1dagi FMN va temir–oltingugurt markazlari ushbu yo‘lning qismlaridir; NDUFS1 ham elektron uzatish arxitekturasida qatnashadi. N2 markazi bir elektron tashuvchi temir–oltingugurt markazidir, ikki elektronni bir vaqtda uzatadigan markaz emas. N1a esa barcha markazlar bitta chiziqli zanjirga ketma-ket joylashtirilgan tasvirga sig‘maydigan tarmoq xususiyatiga ega. Oqsil modifikatsiyasi elektron uzatish, kompleks yig‘ilishi yoki substrat bilan o‘zaro ta’sirni o‘zgartirishi mumkin, lekin buning uchun aynan qaysi qoldiq modifikatsiyalanganini va oqibatini ko‘rsatish kerak. [16, 17] Turli tajribalar uchun o‘lchangan yoki redoks potensiallarini bitta «AGElangan I kompleks»ning universal ko‘rsatkichlari sifatida keltirish mumkin emas.
Kislorodning bir elektron bilan qaytarilishi superoksid beradi:
III kompleksdagi Q sikli Qₒ va Qᵢ joylari, bL va bH gemlari, Rieske temir–oltingugurt oqsili va sitoxrom c₁ bilan bog‘liq. Modifikatsiya kompleks ishiga xalaqit berishi mumkin, ammo Core 1 (UQCRC1) yoki Core 2 (UQCRC2) glikatsiyasi Rieske domenini albatta «qotirib qo‘yadi» degan fikr bevosita dalil talab qiladi. ROS chiqarilishi substrat, redoks holati, kislorod, membrana potensiali va ishlatilgan ingibitorlarga bog‘liq; uni faqat AGE bor-yo‘qligi bilan tushuntirish yetarli emas. [17]
Sitoxrom cning musbat zaryadli lizin qoldiqlari uning kardiolipin bilan o‘zaro ta’siriga hissa qo‘shadi. Gem temirining koordinatsiyasi, jumladan Met80 bilan bog‘liq tuzilma, oqsilning elektron tashuvchi va peroksidaza xususiyatlarini farqlashda muhim. Glikatsiya zaryadni yoki konformatsiyani o‘zgartirishi mumkin, ammo har bir addukting mavjudligi avtomatik sitoxrom c ajralishi va apoptoz degani emas. Membrana lipidlarining peroksidlanishini karbonilning oqsilga qo‘shilishidan ajratish kerak; bu jihat GPX4 va ferroptoz haqidagi maqolada batafsil ko‘rsatilgan.
ATP-sintazaning F₁ α/β katalitik boshchasi, Fₒ bilan proton gradienti orqali bog‘langan aylanish, arginin «barmog‘i», rotor–stator aloqasi va OSCP turli vazifalarni bajaradi. Biror modifikatsiya ferment tezligini pasaytirishi mumkin, biroq odam mitoxondriyalarida muayyan Arg373 AGE adduktilari ATP ishlab chiqarishni doim 70–80 foizga kamaytiradi degan umumiy da’vo tasdiqlangan klinik natija emas. Xuddi shuningdek, MICOS/MIC60, OPA1 va kristalar tuzilishi, TOM40 yoki TIM23 orqali oqsil importi oqsil shikastlanishi va proteostaz bilan bog‘lanishi mumkin, ammo har bir tugun uchun bevosita glikatsiya joyi va sababiy tajriba alohida ko‘rsatilishi kerak.
| Mitoxondrial tugun | Mumkin bo‘lgan oqibat | Sababiy xulosa uchun kerakli dalil |
|---|---|---|
| I kompleks | Elektron uzatish, yig‘ilish yoki ROS chiqarilishining o‘zgarishi | Modifikatsiya joyi, bandlik ulushi, fermentativ va nafas olish o‘lchovlari |
| III kompleks | Q sikli va superoksid hosil bo‘lishining o‘zgarishi | Kompleksga xos funksional tajriba; umumiy AGE signali yetarli emas |
| Sitoxrom c–kardiolipin | Membrana bilan bog‘lanish yoki peroksidaza faolligining o‘zgarishi | Lipid oksidlanishi, oqsil konformatsiyasi va ajralishining alohida o‘lchovi |
| ATP-sintaza | ATP sintezi, yig‘ilish yoki mexanik bog‘lanishning buzilishi | Oqsilga xos modifikatsiya va muvofiq funksional nazorat |
| Kristalar va oqsil importi | Proteostaz va membrana tashkil topishining o‘zgarishi | MICOS/OPA1/import komponentlari uchun bevosita dalil; morfologiya yolg‘iz o‘zi kifoya qilmaydi |
Brownlee modeli giperglikemiyada mitoxondrial superoksid bir nechta shikastlovchi metabolik yo‘lni birlashtirishi mumkinligini taklif qilgan. Dastlabki hujayra tajribalarida MnSOD yoki UCP1 yordamida ROSni kamaytirish tegishli yo‘llarning faollashishini susaytirgan. Model mexanizmlarni bog‘lash uchun foydali, biroq barcha hujayralarda bir xil membrana potensiali chegarasi mavjudligini yoki giperglikemiyaning har qanday zarari aynan shu ketma-ketlikda yuz berishini isbotlamaydi. ning ishorali qiymati, modulini bildiruvchi miqdor va laboratoriyadagi hisoblash konvensiyasi ham farqlanadi. [1, 2, 8]
Du va hamkorlari o‘rgangan mexanizmda DNK shikastlanishi PARP1ni faollashtirib, GAPDHning poli(ADP-ribozil)lanishi va faolligining pasayishi bilan bog‘langan. PARP1 ADP-ribozillanish uchun NAD⁺ ishlatadi; kuchli faollashishi NAD⁺ sarfi va DNK shikastlanishiga javobni o‘zgartiradi. Natijada GAPDHdan yuqoridagi glikolitik metabolitlar boshqa yo‘llarga ko‘proq kirishi mumkin. Bu tajriba GAPDHdagi bir aniq sistein qoldig‘i barcha sharoitlarda AGE bilan bloklanishini ko‘rsatmaydi. [7]
| Yo‘l | Giperglikemiya bilan bog‘liq oqim | Muhim farq |
|---|---|---|
| Poliol yo‘li | Aldozareduktaza glyukozani sorbitolga aylantirib NADPH ishlatadi; sorbitoldegidrogenaza esa NAD⁺dan foydalanadi | GSHning o‘zi bu reaksiyada substrat sifatida iste’mol qilinmaydi; redoks himoyasiga ta’sir bilvosita bo‘lishi mumkin |
| DAG–PKC | Diatsilglitserol oqimi va PKC signallanishi o‘zgaradi | Natija PKC izoformasi, hujayra va to‘qimaga bog‘liq |
| Geksozamin yo‘li | Fruktoza-6-fosfatdan UDP-GlcNAc hosil bo‘lishi va O-GlcNAc modifikatsiyalari o‘zgarishi mumkin | Bu fermentativ modifikatsiya; AGE hosil bo‘lishi bilan bir xil emas |
| Triozafosfat–MGO | GAP/DHAP havzasi va karbonil yon oqimi o‘zgaradi | MGO konsentratsiyasini ishlab chiqarish bilan birga detoksikatsiya ham belgilaydi |
Glyukoza tashilishi hujayralar orasida bir xil emas. Qon–miya to‘sig‘ida GLUT1, neyronlarda esa GLUT3 muhim; insulin bilan boshqariladigan mushakdagi glyukoza tashilishi bilan bu holatni aynanlashtirish mumkin emas. «Metabolik xotira» oldingi glyukemik ta’sirning keyingi oqibatlari saqlanishini tasvirlaydi. Uzoq yashovchi oqsillarning modifikatsiyasi, epigenetik o‘zgarishlar, yallig‘lanish va boshqa jarayonlar bunga hissa qo‘shishi mumkin. Bu tushuncha glyukemiyani keyinchalik yaxshilash foydasiz ekanini anglatmaydi.
AGER geni kodlaydigan RAGE immunoglobulinlar oilasiga mansub retseptor bo‘lib, hujayradan tashqari V, C1 va C2 domenlari, bitta transmembran qismi va hujayra ichidagi dumga ega. Uning o‘z kinaza domeni yo‘q. AGE bilan modifikatsiyalangan oqsillar ligand bo‘lishi mumkin, lekin bog‘lanish addukting turi, oqsil sirtidagi joylashuvi va agregatsiyasiga bog‘liq. Preparatdagi aralashmalar va nazorat sharoitlari ham tajribani talqin qilishda muhim. HMGB1, S100 oqsillari va ayrim amiloid tuzilmalari ham RAGE bilan o‘zaro ta’sirlashadi; ular AGE emas. Erkin CML molekulasi bilan ko‘p nuqtali modifikatsiyalangan oqsilni bir xil retseptor agonisti deb qarash xato. [9, 10, 25, 31]
RAGEning hujayra ichidagi qismi DIAPH1 bilan bog‘lanishi va Rac1/Cdc42 hamda hujayra migratsiyasi bilan aloqador signalni uzatishi ko‘rsatilgan. Boshqa ishda retseptor fosforlanishi va TIRAP/MyD88 adapterlarining jalb qilinishi o‘rganilgan. Bularni har qanday RAGE ligandining barcha hujayralarda majburiy ravishda bitta adapter zanjirini ishga tushirishi deb talqin qilish mumkin emas. [34, 35]
NADPH-oksidazalar ham farqlanadi. NOX2ning yig‘ilishi tartibga soluvchi subbirliklar va Rac bilan bog‘liq; NOX4 boshqaruvini aynan shu p47phox/Rac sxemasiga ko‘chirish to‘g‘ri emas. MAPK yo‘llari, IKK–IκB–NF-κB signallanishi, sitokinlar va adgeziya molekulalari RAGE bilan bog‘liq yallig‘lanishning turli qismlaridir. p38, ERK va JNK turli MAPK tarmoqlarini tashkil etadi; IL-6, TNF, MCP-1, ICAM-1 va VCAM-1 javoblarda qatnashishi mumkin. NF-κB retseptor ifodalanishini oshirib qayta aloqa yaratishi mumkin, ammo bu jarayonning davomiyligi va kuchi to‘qima, ligand hamda nazorat tizimlariga bog‘liq. [9, 10, 25, 31]
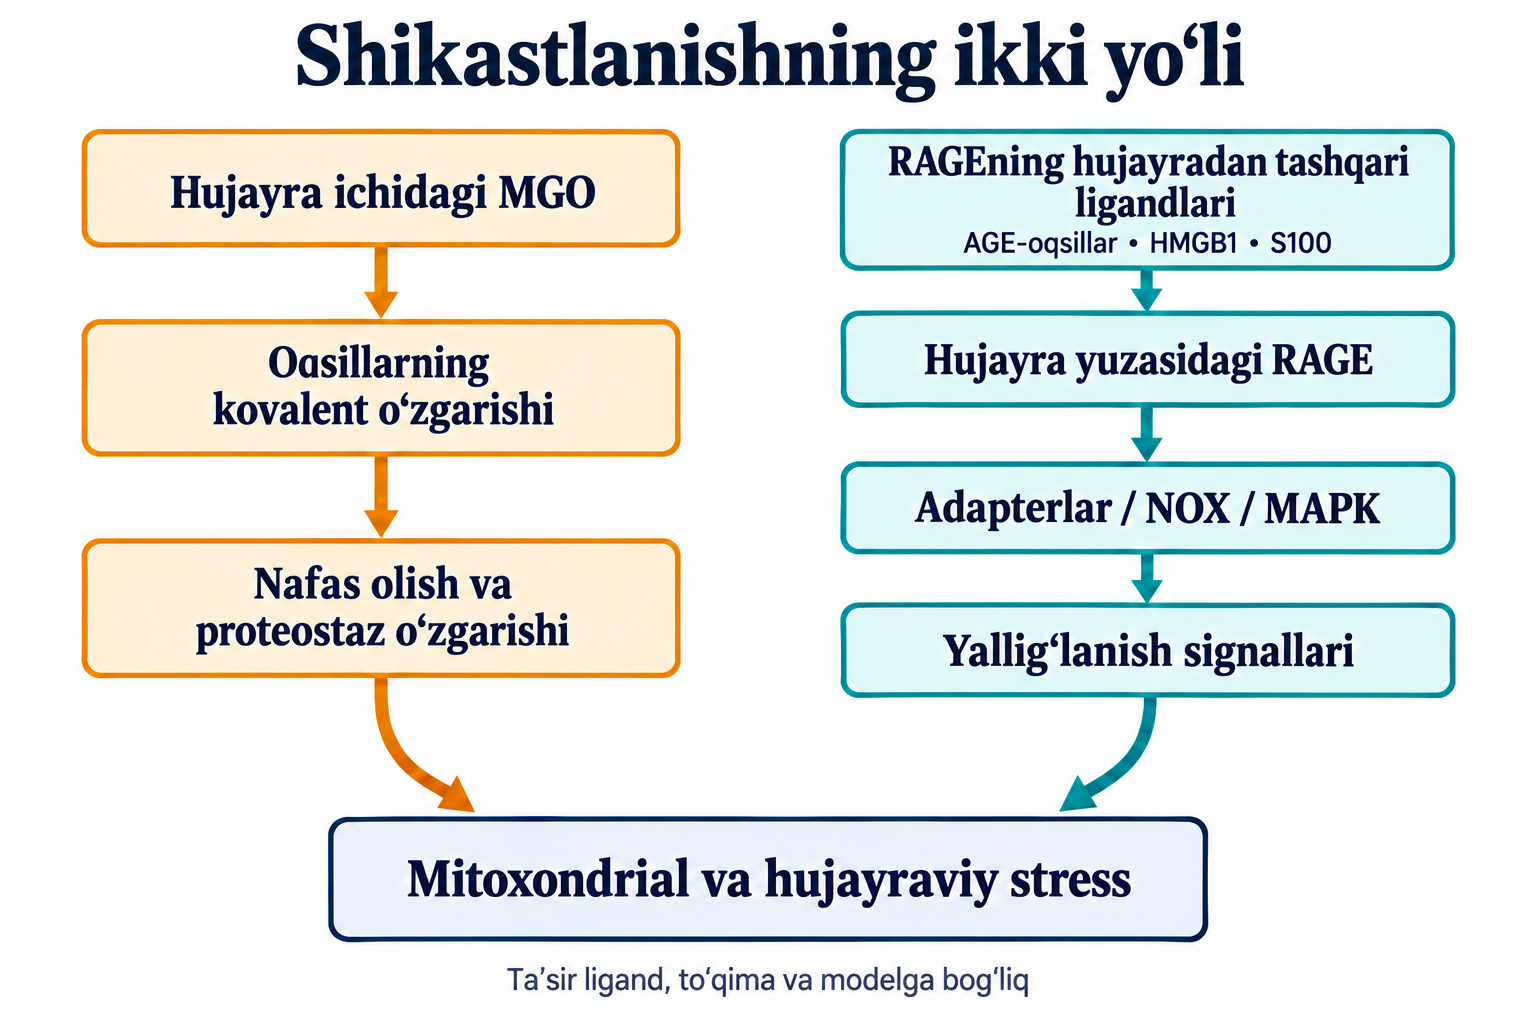
Hujayra ichidagi MGOning oqsillarga kovalent qo‘shilishi va hujayra yuzasidagi RAGE signallanishi alohida boshlanadi. Ular mitoxondrial va hujayraviy stressga birgalikda hissa qo‘shishi mumkin; har bir tarmoqning ahamiyati tajriba sharoitiga bog‘liq.
Mitoxondrial RAGE haqidagi ma’lumotni butunlay inkor etish ham to‘g‘ri emas. Kang va hamkorlari me’da osti bezi o‘smasi modelida mitoxondriyalarda RAGEni aniqlab, HMGB1/RAGE yo‘lini I kompleks faolligi va ATP ishlab chiqarilishi ortishi bilan bog‘lagan. Bu ish aynan o‘sma bioenergetikasi kontekstida bajarilgan. Uni barcha to‘qimalarda RAGE mitoxondriyani shikastlaydi yoki VDAC–ANT–siklofilin D kanalini bevosita ochadi degan dalil sifatida ishlatib bo‘lmaydi. Proteaza himoyasi tajribasi oqsil faqat tashqi sirtga yopishmaganini baholashga yordam beradi, ammo uning barcha membranalardagi aniq topologiyasini yoki TOM/TIM orqali import mexanizmini to‘liq hal qilmaydi. [36]
Kalsiy, redoks holati va membrana energetikasi mitoxondrial o‘tkazuvchanlik o‘tish porasi haqidagi maqolada muhokama qilinadi. Bu hodisani RAGEga oid har qanday kuzatuvga avtomatik yakun sifatida qo‘shish mumkin emas; mPTPning molekulyar tarkibi haqidagi bahslar ham saqlanib qolgan.
Glioksalaza tizimining asosiy sikli MGOni D-laktatga aylantiradi. Avval MGO qaytarilgan glutation (GSH) bilan o‘z-o‘zidan qaytaruvchan gemitioatsetal hosil qiladi:
Glioksalaza 1 (GLO1) ushbu oraliq mahsulotni S-D-laktoilglutationga aylantiradi:
Glioksalaza 2 (GLO2) uni gidrolizlaydi:
Shunday qilib, to‘liq siklda GSH qayta hosil bo‘ladi. «Har bir MGO molekulasi bir GSHni butunlay yo‘q qiladi» deyish noto‘g‘ri. Lekin bu umumiy GSH havzasi stress vaqtida o‘zgarmaydi degani ham emas: oksidlanish, boshqa kon’yugatsiya reaksiyalari, GSH sintezi va hujayra bo‘limlari uning mavjudligini belgilaydi. [3, 4, 32]
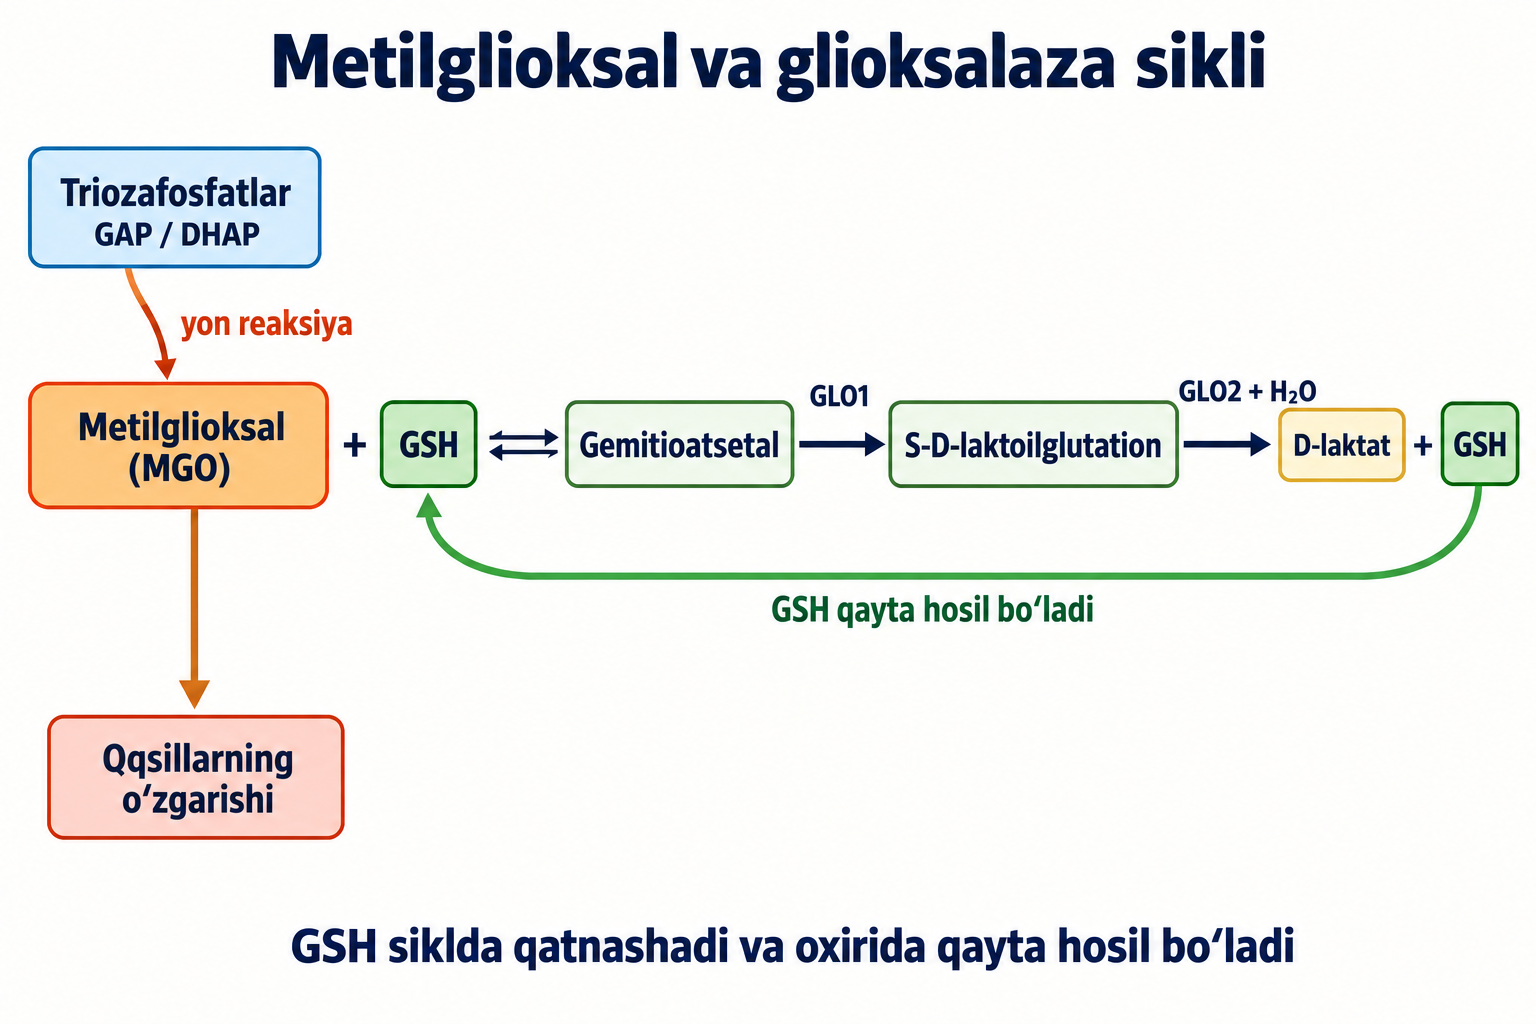
Glioksalaza siklida GSH avval oraliq mahsulotga kiradi, GLO2 bosqichida esa qaytadi. MGOning oqsillarga qo‘shilishi ushbu detoksikatsiya yo‘li bilan raqobatlashishi mumkin.
Odam GLO1i metallga bog‘liq dimer ferment bo‘lib, rux katalitik tuzilmasida muhim. GLO2/HAGH ham metallofermentdir, ammo uning metall tarkibini barcha sharoitlar va organizmlar uchun bitta qat’iy ion jufti sifatida berish to‘g‘ri emas. Fermentlar turli reaksiyalarni katalizlaydi; ikkalasini «MGO bilan bevosita bog‘lanadigan bir xil ferment» deb atab bo‘lmaydi.
Gemitioatsetal hosil bo‘lishini soddalashtirilgan muvozanat bilan ifodalash mumkin:
GLO1 kinetikasini talqin qilishda substratning aynan qaysi shakli va qanday tajriba sharoiti ishlatilganini bilish zarur. Erkin MGO, umumiy MGO yoki gemitioatsetal asosida berilgan parametrlar bir-biriga to‘liq teng emas. va ferment preparati va analiz sharoitiga bog‘liq. Alohida preparatda yuqori katalitik samaradorlik kuzatilishi barcha hujayralarda butun sikl diffuziya chegarasida ishlashini yoki GSH hech qachon cheklovchi bo‘lmasligini isbotlamaydi.
Glutationreduktaza NADPH hisobiga GSSGni GSHga qaytaradi. GSHning yangidan sintezi esa glutamat–sistein ligaza (GCL) va glutation sintetaza (GSS) bosqichlaridan iborat: birinchi bosqich glutamat va sisteinni, ikkinchisi γ-glutamilsistein va glitsinni birlashtiradi. N-atsetilsistein (NAC) ayrim sharoitlarda sistein ta’minotiga yordam berishi mumkin; u GSSning bevosita substrati yoki barcha to‘qimalarda GLO1 faolligini kafolatli oshiradigan vosita emas. GSH kamayishi gemitioatsetal hosil bo‘lishini cheklashi mumkin, lekin barcha mitoxondriyalar uchun yagona halokatli GSH chegarasi belgilanmagan. D-laktatning keyingi metabolizmi, jumladan LDHD orqali, uni hosil qilish bilan uni chiqarish o‘rtasidagi farqni ko‘rsatadi; «D-laktat doim zararsiz» degan umumiy xulosa to‘g‘ri emas.
Nrf2–KEAP1 tizimi GLO1 va boshqa himoya genlarini boshqarish bilan bog‘liq. Ammo yoshga qarab GLO1 barcha odamlarda aynan 40–60 foiz kamayadi yoki istalgan Nrf2 faollashtiruvchisi buni bir xil darajada tiklaydi degan universal sonlar yo‘q. Transkripsiya, ferment miqdori va haqiqiy MGO oqimi alohida o‘lchanadigan qatlamlardir. Yallig‘lanish, epigenetik o‘zgarishlar va mikroRNKlar ifodalanishga ta’sir qilishi mumkin; karbonilreduktazalar kabi muqobil himoya yo‘llari ham baholanadi. [5]
Buyrakda yuqori glyukozali muhit, filtratsiya, karbonil chiqarilishi va mitoxondrial energetika bir-biriga ta’sir qiladi. Podotsitlarning aktin sitoskeleti va sinaptopodin, bazal membranadagi IV tip kollagen va laminin o‘zgarishlar uchun muhim tuzilmalardir. Shunga qaramay, proteinuriyani faqat bazal membrana zaryadining yo‘qolishi bilan tushuntirish yetarli emas: gemodinamika, yallig‘lanish, mezangial javoblar, filtratsion to‘siqning hujayraviy tarkibi va fibroz ham qatnashadi. Qonda AGE miqdorining oshishi ishlab chiqarish ortganini ham, buyrak orqali chiqarilish kamayganini ham aks ettirishi mumkin. [16, 17, 26, 28]
To‘r pardada peritsitlarning yo‘qolishi, endoteliy to‘sig‘ining buzilishi, hujayradan tashqari matritsa va integrin aloqalari, VEGF signallari turli tajribalar bilan bog‘langan. MGO yoki AGE-oqsil preparati ishlatilgan hujayra tajribasi butun inson retinopatiyasining bitta sababini isbotlamaydi. Hayvon modelidagi yo‘lni bemordagi ko‘rish saqlanishi bilan tenglashtirish uchun klinik natijalar kerak. [6, 24, 27]
Periferik asablarda Shvann hujayralari, poliol yo‘li, akson transporti va qon ta’minoti ahamiyatli. Neyrofilamentlar, tubulin, kinezin va dinein kabi motor oqsillari yoki NGF tashilishi metabolik shikastlanish bilan o‘zgarishi mumkin, ammo «falon glikatsiya joyi barcha diabetik neyropatiyada akson transportini to‘xtatadi» degan xulosa bevosita joyga xos dalilni talab qiladi. Og‘riq, sezgi yo‘qolishi va asab tolasi morfologiyasi bir xil yakuniy ko‘rsatkich emas.
Tomirlarda I va III tip kollagenning ko‘ndalang bog‘lanishi qattiqlikka hissa qo‘shishi mumkin. Puls to‘lqini tezligi esa bosim, yosh, elastin, kalsifikatsiya va boshqa omillarga ham bog‘liq; u glukozepanning o‘ziga xos o‘lchovi emas. Miokardda titin izoformalari va fosforlanishi diastolik xususiyatlarni belgilaydi, shuning uchun barcha qattiqlikni titin glikatsiyasiga yuklash mumkin emas. LDLning ApoB oqsili modifikatsiyalanishi uning almashinuvi va makrofaglar bilan o‘zaro ta’sirini o‘zgartirishi mumkin, lekin turli adduktilar bir xil retseptor yo‘li yoki aterogen kuchga ega emas. [1, 2, 11–14, 27]
Miyada energiya almashinuvi, karbonil stress, Aβ va tau biologiyasi orasidagi aloqalar o‘rganiladi. RAGE bu yerda ham faqat AGElarni tanimaydi. Tajriba preparatlari bilan o‘lchangan reaktivlikni «MGO har doim yuz marta tezroq Altsgeymer kasalligini chaqiradi» kabi klinik da’voga aylantirish mumkin emas. Tau fosforlanishi barcha fosfatazalar bir xil glikatsiya bilan bloklanganini anglatmaydi; AGE yoki MGO belgilarining topilishi kasallikning yagona sababini aniqlamaydi. [25, 30, 31]
Karbonilni tutish, glikoliz oqimini o‘zgartirish, GLO1ni oshirish, redoks himoyani qo‘llash, RAGE signalini to‘sish va ko‘ndalang bog‘larni uzish — turli strategiyalar. Ularning barchasini bir «antiglikatsion kompleks»ga birlashtirib, isbotlangan sinergiya sifatida tavsiya qilish mumkin emas. Biokimyoviy nishon, biomarker o‘zgarishi va bemor uchun foydali klinik natija alohida dalil bosqichlaridir.
Aminoguanidin reaktiv karbonillar bilan reaksiyaga kirishishi mumkin, ammo uning ta’siri faqat AGE kimyosi bilan cheklanmaydi. ACTION I sinovida birlamchi buyrak yakuniy ko‘rsatkichi bo‘yicha statistik ishonchli foyda aniqlanmagan. ACTION II haqidagi dizayn maqolasini davolash natijasi sifatida keltirish yoki barcha sinovlar bir xil vaqtda bir xil sabab bilan to‘xtatilganini yozish noto‘g‘ri. Tolerantlik va boshqa nishonlarga ta’sir ham klinik rivojlantirish uchun muhim bo‘lgan. [22, 23]
Piridoksamin B₆ vitamini shakllaridan biri bo‘lib, karbonil va oksidlovchi kimyoga ta’sir etishi mumkin. Bu uni barcha B₆ preparatlari bilan almashtirish mumkin degani emas. Diabetik nefropatiyadagi keyingi randomizatsiyalangan sinovda umumiy kohort uchun birlamchi samaradorlik natijasi ijobiy bo‘lmagan; kichik guruh yoki erta biomarker kuzatuvi butun klinik dastur muvaffaqiyatini isbotlamaydi. [37]
Karnozin (β-alanil-L-gistidin) ayrim karbonillarni tutishi mumkin. Odamdagi CNDP1 kodlaydigan zardob karnozinazasi uning farmakokinetikasiga ta’sir qiladi. Genetik variant bilan kasallik xavfi orasidagi bog‘lanish og‘iz orqali qabul qilingan karnozin fermentni to‘yintirishi va diabetik asoratlarni oldini olishini ko‘rsatmaydi. Qonda va hujayra ichida erishilgan konsentratsiyalar alohida masaladir. [19]
Benfotiamin tiamin bilan bog‘liq modda bo‘lib, faol tiamin difosfat (ThDP) transketolaza uchun kofaktordir. Buni transketolazaning isbotlangan to‘g‘ridan-to‘g‘ri allosterik faollashuvi deb yozish to‘g‘ri emas. Pentozafosfat yo‘lining oksidlanmaydigan qismida transketolaza va transaldolaza uch pentozafosfat uglerodlarini ikki fruktoza-6-fosfat va bir GAPga qayta taqsimlashi mumkin:
Bu yig‘indi sxemada ikkala tomonda ham 15 uglerod atomi bor. Uni uchta 3-uglerodli metabolitdan ikkita 6-uglerodli mahsulot paydo bo‘lishi tarzida yozish massa balansini buzadi. Yo‘l oqimining o‘zgarishi triozafosfat yukiga ta’sir qilishi mumkin, biroq natija butun metabolik tizimga bog‘liq. [6]
Hammes va hamkorlarining retinopatiya bo‘yicha tajribasi hayvon modelida o‘tkazilgan. BEDIP kichik uch haftalik klinik pilot bo‘lgan; uni 130 bemorli 12 haftalik sinov deb taqdim etish xato. BENDIPda ayrim simptom tahlillari qayd etilgan bo‘lsa ham, yakuniy ko‘rsatkich va tahlil populyatsiyasini ajratish kerak. 2026-yilgi 12 oylik BOND sinovida birlamchi shox parda asab tolasi uzunligi ko‘rsatkichi bo‘yicha foyda ko‘rsatilmagan. Shunday ekan, qisqa muddatli simptom natijasini uzoq muddatli asab qayta tiklanishi bilan tenglashtirib bo‘lmaydi. [6, 18, 38, 39]
Sulforafan KEAP1–Nrf2 yo‘liga ta’sir qilishi mumkin; GLO1 o‘zgarishi hujayra va ekspozitsiyaga bog‘liq. Trans-resveratrol va hesperetin (tRES–HESP) formulasi esa kichik, ikki davrli klinik tajribada o‘rganilgan. Sinovni tugatgan 29 ortiqcha vaznli yoki semizlikka ega ishtirokchida 8 haftalik davr uchun kuniga 90 mg tRES va 120 mg HESP qo‘llangan. BMI 27,5 dan yuqori kichik guruhda GLO1 faolligi taxminan 27 foiz oshishi va MGO taxminan 37 foiz kamayishi qayd etilgan; bunday kichik guruh tahlili butun aholida bir xil javob bo‘lishini ko‘rsatmaydi. OGIS va tomir funksiyasi ko‘rsatkichlarining o‘zgarishi diabet asoratlari yoki o‘limning oldi olinganini isbotlamaydi. Bu miqdorlar sinov tavsifi bo‘lib, individual davolash sxemasi emas. [21]
Pterostilben kimyoviy jihatdan yaqin bo‘lsa ham, hesperetin o‘rniga qo‘yilganda ushbu formula natijasini takrorlashi ko‘rsatilmagan. SIRT1 yoki boshqa signal yo‘llariga oid hujayra ma’lumotlari klinik antiglikatsion samaradorlik kafolati emas. Alfa-lipoat redoks reaksiyalari bilan bog‘liq; fermentga bog‘langan lipoyl guruhining kofaktor vazifasi qo‘shimcha sifatida qabul qilingan alfa-lipoatning barcha ta’sirlari bilan bir xil emas. SYDNEY singari neyropatiya sinovlaridagi simptom o‘zgarishi barcha AGElar kamaygani yoki asab regeneratsiyasi yuz berganini ko‘rsatmaydi. Faqat R-enantiomer har qanday holatda samarali, boshqa shakl esa foydasiz degan mutlaq xulosa ham bunday ma’lumotdan kelib chiqmaydi. [20]
GSH sintezini qo‘llab-quvvatlash, NACdan foydalanish va GLO1ni induksiya qilish bir xil aralashuv emas. Ularni resveratrol, pterostilben, benfotiamin, karnozin yoki alfa-lipoat bilan birlashtirishning klinik sinergiyasi alohida sinovdan o‘tishi kerak. Ovqatdan oldin yoki keyin qat’iy vaqtlar, universal dozalar va «mitoxondrial glikatsiyani to‘liq to‘xtatadigan» to‘plam haqidagi da’volar ushbu mexanistik adabiyot bilan tasdiqlanmagan.
Eruvchan RAGE (sRAGE) retseptorning proteolitik kesilishi va muqobil splaysingdan keladigan shakllarni o‘z ichiga oladi; esRAGE shu guruh ichidagi ma’lum shakldir. Qondagi daraja ishlab chiqarish va chiqarilishga bog‘liq. Barcha bemorlar uchun bir xil, masalan 600 birlikli «himoya chegarasi»ni ko‘rsatish uchun analiz, birlik va populyatsiyaga mos dalil kerak. RAGE antagonisti azeliragon uchun ham nishonning biologik mantiqi klinik muvaffaqiyatni kafolatlamagan: STEADFAST A va B dasturlarida birgalikdagi birlamchi yakuniy ko‘rsatkichlar bajarilmagan. [25, 31, 40]
Ko‘ndalang bog‘larni «uzuvchi» moddalar haqidagi dastlabki tajribalar va alagebrium bo‘yicha kuzatuvlar ham bog‘ turiga bog‘liq. Ayrim model birikmalaridagi natija odam kollagenidagi glukozepan bog‘lari samarali va xavfsiz uzilganini isbotlamaydi. CML kabi ko‘ndalang bog‘ bo‘lmagan addukting kamayishi esa ko‘ndalang bog‘larni uzish bilan aynanlashtirilmaydi. [14, 29]
| Aralashuv darajasi | Mexanistik nishon | Klinik xulosadagi chegara |
|---|---|---|
| Karbonilni tutish | MGO yoki boshqa reaktiv karbonillar | Preparat yetib borishi, boshqa nishonlar va salbiy sinovlar hisobga olinadi |
| Glyukoza oqimini qayta taqsimlash | ThDP/transketolaza va boshqa metabolik tugunlar | Hayvon retinopatiyasi yoki qisqa simptom sinovi uzoq muddatli klinik himoya emas |
| GLO1ni induksiya qilish | Nrf2 bilan bog‘liq transkripsiya va glioksalaza faolligi | Kichik biomarker tajribasi asoratlar kamayishini isbotlamaydi |
| Redoks va GSH tizimi | GSH sintezi/qaytarilishi va oksidlovchi yuk | GSH miqdori barcha AGE adduktilarining yo‘qolishini anglatmaydi |
| RAGE signalini to‘sish | Ligand–retseptor yoki adapter signali | Ligandlar xilma-xilligi va muvaffaqiyatsiz klinik dasturlar muhim |
| Ko‘ndalang bog‘ni uzish | Muayyan bog‘ning kimyosi | Bir model substrati natijasi barcha inson AGElariga tatbiq qilinmaydi |
«AGE tahlili» bitta standart test emas. LC–MS/MS aniq adduktilarni farqlashi mumkin, ammo namuna tayyorlash, oqsilni gidrolizlash va erkin hamda oqsilga bog‘langan shakllarni ajratish muhim. MGOni derivatizatsiya orqali o‘lchashda namunadan keyin hosil bo‘ladigan artefaktlar nazorat qilinishi kerak. Immunotahlillar antitana xususiyatiga bog‘liq, umumiy fluoresans esa barcha AGElarni qamrab olmaydi. [3, 4, 32]
| Ko‘rsatkich | Qaysi savolga yordam beradi? | Nimani ko‘rsatmaydi? |
|---|---|---|
| HbA1c | Eritrotsitlar umriga bog‘liq davrdagi glikemik ta’sir | Mitoxondriyadagi barcha AGElar yoki oqsilga xos shikastlanish |
| Fruktozamin | Qisqaroq davrdagi zardob oqsili glikatsiyasi | Oqsil almashinuvidan mustaqil universal karbonil yuk |
| MGO | Namuna va metodga bog‘liq karbonil konsentratsiyasi | Uning ishlab chiqarish oqimi yoki barcha to‘qimalardagi daraja |
| CML, CEL, MG-H1 | Muayyan kimyoviy adduktilar | Barcha AGElar yig‘indisi yoki ularning yagona manbai |
| Pentozidin va fluoresans | Ma’lum fluoresansli mahsulotlar | Fluoresanssiz glukozepan va boshqa adduktilar |
| sRAGE/esRAGE | Retseptor shakllari va ularning almashinuvi | Analizdan mustaqil universal himoya chegarasi |
| GSH/GSSG, GLO1/GLO2 | Redoks havzasi va detoksikatsiya tizimining ayrim qatlamlari | Har qanday qo‘shimcha samarasi yoki klinik asoratlarning muqarrar o‘zgarishi |
HbA1c klinik boshqaruvda ishlatiladigan ko‘rsatkichdir; tadqiqotdagi keng AGE paneli avtomatik ravishda individual davolash tanlash uchun tasdiqlangan testga aylanmaydi. Eritrotsitlar umri HbA1cga, buyrak funksiyasi karbonil va sRAGEga, oqsil almashinuvi esa zardob adduktilariga ta’sir qilishi mumkin. Laboratoriya sonini mexanizm va klinik holatdan ajratib talqin qilish noto‘g‘ri.
Glikooksidlanish mitoxondrial shikastlanishga hissa qo‘sha oladigan muhim mexanizmlar guruhidir. Ammo kimyoviy addukting topilishi, nafas olish buzilishi, RAGE signali va bemordagi klinik natija bir xil dalil emas. Eng ishonchli talqin ushbu qatlamlarni bog‘laydigan tajribalar mavjudligini tekshiradi va mavjud bo‘lmagan bog‘lanishni qat’iy sabab sifatida qo‘shmaydi.
Ushbu ilmiy sharh asl maqoladagi mexanizmlar va bibliografiya asosida, 2026-yil 8-oktabrda tahrir qilindi. Muayyan ziddiyatlar bo‘yicha birlamchi manbalar tekshirildi: odam TDH psevdogeni, RAGE adapterlari va o‘sma modelidagi mitoxondrial RAGE, Rosca ishlarining bibliografiyasi, glioksalaza-induktor formulasi hamda ayrim klinik sinovlarning haqiqiy natijalari. Ochiq muallif nusxalari, birlamchi maqola sahifalari, sinov registri va STEADFAST uchun kompaniyaning SECga taqdim etilgan birlamchi hisoboti ishlatildi. Ayrim to‘liq matnlarga kirish cheklangan; bunday hollarda mavjud birlamchi metama’lumot va natija bayonotidan ortiq xulosa chiqarilmadi. Bu sistematik sharh yoki barcha manbalar qayta tekshirilgan degan da’vo emas. Maqola individual tashxis, doza tanlash yoki davolash to‘plamini belgilamaydi.
Glikooksidlanish glikatsiya bilan bog‘liq oksidlanish o‘zgarishlarini o‘z ichiga oladi. Glikatsiya kengroq tushuncha; turli AGElar turli yo‘llarda hosil bo‘ladi.
Yo‘q. CML, CEL va MG-H1 bir nuqtali adduktilarga misol. Pentozidin va glukozepan ko‘ndalang bog‘lar bo‘lib, o‘zaro ham farqlanadi.
U qisman triozafosfatlardan hosil bo‘ladi va oqsil guruhlarini o‘zgartirishi mumkin. Uning yuki hosil bo‘lish, detoksikatsiya va oqsil yangilanishiga bog‘liq.
GSH gemitioatsetal hosil bo‘lishida qatnashadi va GLO2 bosqichida qayta hosil bo‘ladi. Boshqa hujayraviy reaksiyalar umumiy GSH havzasini baribir o‘zgartirishi mumkin.
Yo‘q. Birlamchi o‘sma modeli mitRAGEni I kompleks faolligi va ATP ortishi bilan bog‘lagan. Bu universal mPTP ochuvchi kompleksni isbotlamaydi.
Mantiqli mexanizmlarni birlashtirish klinik sinergiyani isbotlamaydi. Kombinatsiya uchun to‘qimaga yetib borish, yakuniy natijalar va nojo‘ya ta’sirlar bo‘yicha sinov kerak.