HMO і 2′-FL: мікробіом, кишковий бар’єр і докази — NutriFit
Олігосахариди грудного молока: HMO, 2′-FL і мікробіом немовляти
Будова HMO, бактерії, що їх використовують, і докази щодо 2′-FL, кишкового бар’єра, інфекцій та годування немовлят. Первинні дослідження з їхніми обмеженнями, включно з дорослими, синбіотиками, алергією й безпекою.
Олігосахариди грудного молока (HMO) — родина вуглеводів із різною будовою та біологічними властивостями. Більшість цих молекул стійка до травлення в тонкій кишці й надходить до мікроорганізмів, здатних їх використовувати. Частина також взаємодіє з епітеліальними клітинами, імунними рецепторами та мікробними білками, які розпізнають вуглеводи. Зв’язування в лабораторному тесті, зміна мікробіоти й запобігання захворюванню людини — різні результати.
2′-Фукозиллактоза (2′-FL) є одним із найкраще досліджених представників. Додавання її або кількох HMO до суміші відтворює окремі компоненти грудного молока. Саме молоко містить багато інших гліканів, білки, ліпіди й антитіла; властивості всієї системи не можна приписувати одному інгредієнту.
1. Молекулярна будова й материнські гени
HMO складаються з глюкози, галактози, N-ацетилглюкозаміну, L-фукози та N-ацетилнейрамінової кислоти, яку позначають Neu5Ac. Відновлювальний кінець містить лактозне ядро Galβ1–4Glc. Подовження, розгалуження, фукозилювання й сіалілювання створюють різні структури. Лакто-N-тетраоза (LNT) закінчується фрагментом типу 1 Galβ1–3GlcNAc — лакто-N-біозою. Лакто-N-неотетраоза (LNnT) має кінцевий фрагмент типу 2 Galβ1–4GlcNAc — N-ацетиллактозамін. До більших молекул належать розгалужені лакто-N-гексаози.
Нейтральні нефукозильовані, фукозильовані та кислі сіалільовані групи зручні для опису, але фукоза й сіалова кислота можуть бути в одній молекулі. Фіксованого відсоткового співвідношення для всіх матерів і періодів лактації немає. Сумарна концентрація зазвичай вища в молозиві й згодом знижується; окремі структури, зокрема 3-FL, можуть мати іншу динаміку (Thurl та співавт., 2010).
FUT2 переносить фукозу з GDP-фукози, утворюючи α1–2-зв’язки, важливі для 2′-FL і лакто-N-фукопентаози I. Будова 2′-FL — Fucα1–2Galβ1–4Glc. Активність FUT2 визначає секреторний статус. Варіант rs601338 пояснює частину несекреторних фенотипів у певних популяціях, але не всі причини у світі. FUT3 бере участь у глікозилюванні системи Lewis, зокрема α1–4-фукозилюванні. Поєднання цих статусів змінюють профілі HMO, але не роблять молоко несекреторної матері неповноцінним і не означають відсутності всіх фукозильованих структур, включно з 3-FL (Thurl та співавт., 2010; Lewis та співавт., 2015).
3′-Сіаліллактоза (3′-SL) містить Neu5Acα2–3Galβ1–4Glc, а 6′-SL — Neu5Acα2–6Galβ1–4Glc. Донором сіалової кислоти є CMP-Neu5Ac. Дисіаліллакто-N-тетраоза, DSLNT, має дві сіалільні групи на тетраозному каркасі. Негативний заряд впливає на взаємодії, але не забезпечує універсального електростатичного відштовхування вірусів. Сам тип зв’язку не встановлює, яка ізоформа сіалілтрансферази молочної залози його утворила.
2. Бактеріальний транспорт, ферменти й ферментація
Стійкість HMO до травлення пов’язана з їхньою будовою й обмеженим набором відповідних травних ферментів. Це не означає, що немовля взагалі не розщеплює β1–4-зв’язки: лактаза перетравлює лактозу. Частину HMO знаходять у крові та сечі, тому їхня доля не обмежується ферментацією в товстій кишці (Goehring та співавт., 2014; Underwood та співавт., 2015).
У геномі Bifidobacterium longum subsp. infantis ATCC 15697 описано ділянку H1 завдовжки приблизно 43 кб, пов’язану з транспортом і розщепленням HMO; додаткові ферменти містяться поза нею. Це допомагає пояснити набір доступних субстратів, але не доводить однакових властивостей усіх штамів підвиду чи будь-якого комерційного пробіотика (Sela та співавт., 2008).
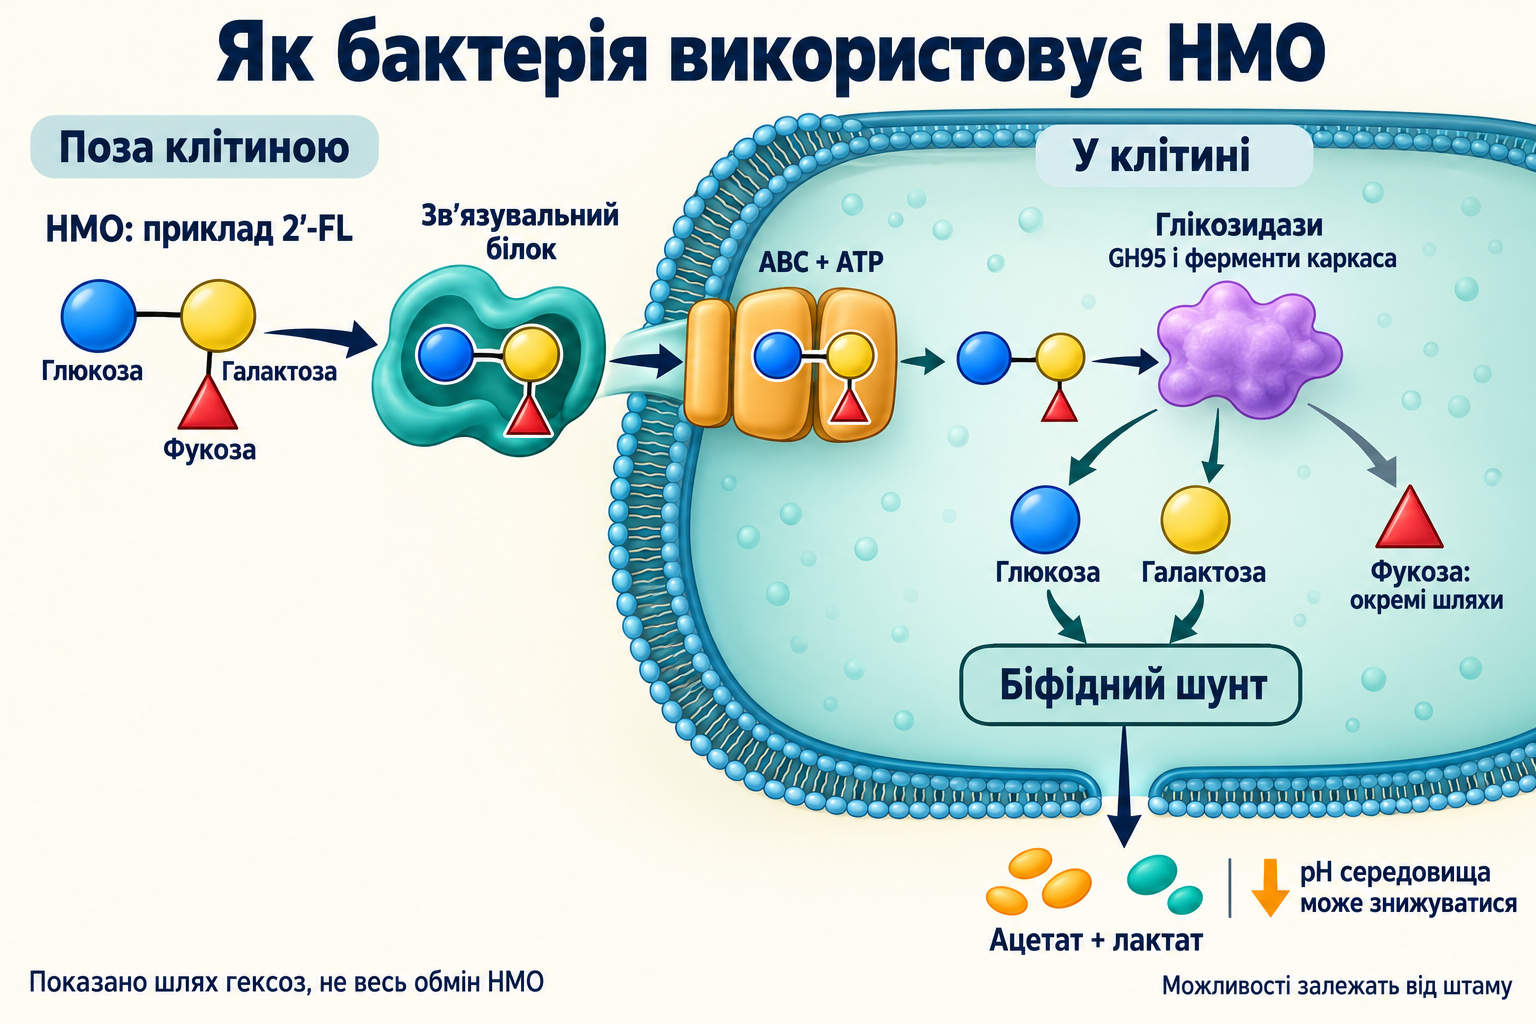
Одна зі стратегій — захоплення цілих гліканів позаклітинними субстратзв’язувальними білками й перенесення через мембрану ABC-транспортерами з використанням ATP. У грампозитивних біфідобактерій ці білки не варто називати периплазматичними в розумінні будови грамнегативної клітини. Різні системи транспорту фукозиллактози мають специфічності, які частково перекриваються (Sakanaka та співавт., 2019).
У ATCC 15697 α-фукозидаза GH95 Blon_2335 переважно розщеплює α1–2-зв’язки, а GH29 Blon_2336 — α1–3/4-зв’язки. NanH1 відповідає Blon_0646; NanH2 — Blon_2348 і пов’язана з HMO-ділянкою. β-Галактозидази та N-ацетилгексозамінідази розбирають інші частини глікану. Назви AfcA/AfcB, уживані для ферментів B. bifidum, не можна без перевірки переносити на B. infantis. Лакто-N-біозофосфорилаза й лакто-N-біозидаза також є різними ферментами (Sela та співавт., 2011, 2012).
Гідроліз 2′-FL вивільняє фукозу й лактозу; остання може дати глюкозу й галактозу. Фукоза не обов’язково проходить ті самі шляхи, що й гексози. B. bifidum здійснює важливе позаклітинне розщеплення, продукти якого використовують сусідні бактерії. Таке перехресне живлення є екологічною взаємодією, а не доказом шкідливості виду. Bacteroides мають власні системи захоплення й розщеплення гліканів, зокрема пов’язані з використанням слизу (Marcobal та співавт., 2011). B. breve та B. animalis subsp. lactis, включно з BB-12, також потребують оцінки конкретного штаму: назва виду не визначає універсальної здатності споживати HMO або клінічної переваги.
Біфідний шунт, кислоти й pH
Фруктозо-6-фосфат/ксилулозо-5-фосфат-фосфокетолаза бере участь у центральному обміні біфідобактерій. Ідеалізований баланс вуглецю для гексоз:
2C6H12O6→3CH3COOH+2C3H6O3
Він дає три молекули ацетату й дві лактату на дві гексози. Це модель розподілу вуглецю, а не повний баланс ATP чи фіксований вихід продуктів із будь-якого HMO. Реальні співвідношення залежать від субстрату й умов росту.
Ацетат і лактат можуть знижувати pH кишкового вмісту та змінювати умови для інших мікроорганізмів. Вони не стерилізують кишку й не гарантують усунення патогенів. Інші бактерії можуть використовувати ці продукти, зокрема для утворення бутирату; відповідні спільноти змінюються з віком і раціоном. pH калу відображає лише частину складного середовища й не є самостійним визначенням здорового мікробіому (Frese та співавт., 2017).
3. Розчинні глікани й конкуренція за прикріплення
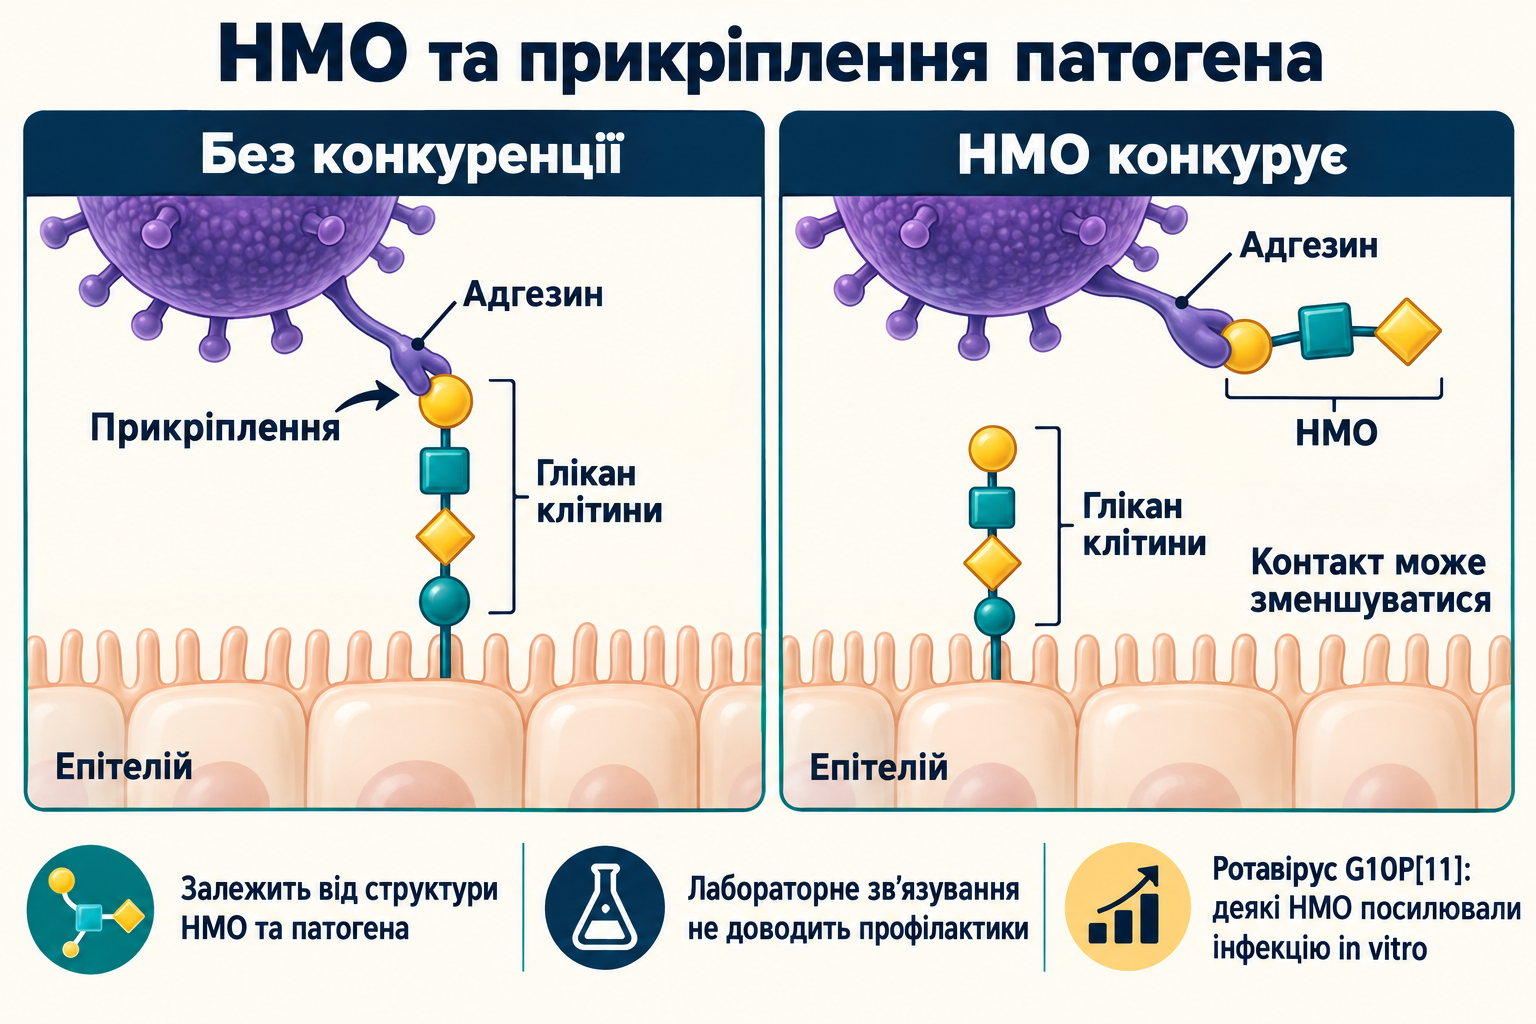
Деякі HMO нагадують вуглеводні мотиви клітинної поверхні та слизу. Якщо адгезин їх розпізнає, розчинний глікан може конкурувати з лігандом організму. Ефект залежить від будови HMO, мікробного білка, концентрації, доступності рецептора й багатовалентності. Менше прикріплення не обов’язково означає загибель мікроорганізму.
Номінальна молярна маса 2′-FL становить приблизно 488,44 г/моль. Для 1 г/л:
c=488.44g/mol1g/L≈2.05mmol/L
Це перерахунок одиниць, а не лікувальна доза чи доказ досягнення такої концентрації біля рецептора після споживання.
Норовірус і ротавірус — різні випадки
Weichert та співавт. (2016) досліджували зв’язування 2′-FL і 3-FL із P-доменом капсидного білка VP1 норовірусу GII.10 та конкуренцію вірусоподібних частинок за гліканові ліганди. Структурні результати й така модель не встановлюють профілактики інфекції людини чи захисту від усіх генотипів, включно з GII.4.
Ротавірус використовує інші білки, зокрема фрагмент VP8* білка VP4. Ramani та співавт. (2018) виявили, що окремі HMO, серед них 2′-FL, LNT і 6′-SL, посилювали інфікування клітин неонатальним ротавірусом G10P[11]; склад молока також був пов’язаний із симптомною інфекцією в дослідженій популяції. Це важливий виняток із твердження про універсальний противірусний захист: ефекти відрізняються між патогенами й моделями.
Бактеріальні адгезини, токсини та віруси молока
Campylobacter jejuni може розпізнавати H(O)-мотив типу 2 Fucα1–2Galβ1–4GlcNAc (Ruiz-Palacios та співавт., 2003). У спостереженнях деякі фукозильовані HMO були пов’язані з меншим ризиком діареї, але годування, склад молока й інші чинники ускладнюють причинне тлумачення (Morrow та співавт., 2004). Це не встановлює однакового захисту від усіх штамів Campylobacter, ентеропатогенних чи ентеротоксигенних E. coli, Salmonella та Helicobacter pylori. Адгезія, експресія вірулентності, ріст і запалення є окремими результатами.
Холерний і термолабільний токсин E. coli розпізнають складний гангліозид GM1. Вільна сіаліллактоза не є повною молекулою GM1. Спільні цукрові фрагменти не доводять гарантованого блокування цих токсинів або токсинів A/B Clostridioides difficile. Потрібні прямі тести зв’язування, функціональні моделі й клінічні дослідження.
Взаємодію молочних гліканів із DC-SIGN вивчали й у контексті HIV. Bode та співавт. (2012) описали зв’язок концентрації HMO з постнатальною передачею HIV під час грудного вигодовування. Спостережне порівняння не є випробуванням профілактики HMO й не замінює антиретровірусних заходів. Для цитомегаловірусу окремий HMO також не визначає кількісної нейтралізації чи безпечного годування за будь-яких умов. Рішення щодо HIV і CMV потребують клінічного контексту й чинних рекомендацій.
4. Епітелій, слиз і кишковий бар’єр
Пряму дію на епітелій досліджують окремо від ферментації. У моделях Caco-2Bbe та HT-29 певні HMO зменшували проліферацію й змінювали маркери диференціювання, а не просто стимулювали поділ через EGFR (Holscher, Davis і Tappenden, 2014). MAPK/ERK та PI3K/Akt беруть участь у багатьох процесах, але єдиний обов’язковий шлях «усі HMO → EGFR → відновлення кишки» не встановлено.
У досліджених ентероцитарних моделях 2′-FL змінювала експресію CD14 і послаблювала відповідь на LPS (He та співавт., 2016). Це не доводить прямого високоафінного зв’язування DSLNT із TLR4–MD-2. Рецепторну взаємодію, зміну експресії та кінцевий запальний сигнал слід розрізняти.
Трансепітеліальний електричний опір, TEER, оцінює один аспект проходження іонів; потік маркера, наприклад декстрану, — іншу властивість проникності. Вищий TEER сам по собі не доводить неможливості транслокації бактерій у людини. Natividad та співавт. (2020) показали захист клітинних моделей за певних пошкоджувальних впливів; їхні концентрації та умови не можна автоматично переносити на харчування.
ZO-1 організовує компоненти щільних контактів разом із внутрішньоклітинними структурами. Оклюдин і різні клаудини мають неоднакові функції, зокрема вибіркове проходження іонів. Регуляція MLCK впливає на бар’єр, але універсальне пригнічення всіма HMO не показане. Докладніше ці відмінності викладено в матеріалі про кишкову проникність і клаудини.
MUC2 — основний секретований муцин келихоподібних клітин; MUC1 пов’язаний із мембраною та поверхневим глікокаліксом. Зміна одного маркера не доводить утворення повністю стерильного слизового шару. Молоко несекреторної матері не обов’язково формує тонкий або дефектний слизовий бар’єр.
DSLNT, некротизувальний ентероколіт і перфузія
Некротизувальний ентероколіт (НЕК) — тяжке захворювання, особливо важливе для недоношених дітей. Jantscher-Krenn та співавт. (2012) показали захисну дію DSLNT у моделі НЕК у новонароджених щурів. Це допомагає вивчати механізми, але не встановлює ефективності добавки для недоношеної дитини.
Autran та співавт. (2018) спостерігали 200 пар матері й дитини з дуже низькою масою при народженні; НЕК розвинувся у восьми дітей. Нижчий рівень DSLNT у молоці був пов’язаний із НЕК. Така кількість подій і спостережний дизайн не визначають універсального діагностичного порогу чи гарантії відсутності захворювання вище певної концентрації. Результат підтримує дослідження потенційного маркера, а не готовий алгоритм добору молока чи дозування.
DSLNT не є єдиним HMO в цьому напрямі. Експериментальні ефекти 2′-FL на мезентеріальну перфузію також описано (Good та співавт., 2016). Судинна перфузія та сигнали ендотеліальної NO-синтази належать до іншого рівня, ніж епітеліальні контакти. Їхній контекст розглянуто в матеріалі про eNOS та її роз’єднання.
Ендотеліальний глікокалікс містить протеоглікани й глікозаміноглікани. Виявлення HMO в крові не доводить їхнього вбудовування до цієї структури чи заміни гепарансульфату. Вивільнення синдекану-1 може відображати пошкодження глікокаліксу, але не підтверджує специфічного відновлення HMO або профілактики тромбозу.
5. Імунні рецептори та системна експозиція
DC-SIGN — кальційзалежний мембранний лектин. Noll та співавт. (2016) показали розпізнавання окремих молочних гліканів; для вільної 2′-FL інгібувальна концентрація в тесті була близько 1 мМ. IC50 залежить від устрою тесту й не дорівнює константі дисоціації Kd. Це не наномолярна афінність і не доказ ефективного зв’язування в усіх тканинах.
Селектини й Siglec розпізнають певні мотиви. Для селектинів важливі просторове представлення та поєднання фукозилювання й сіалілювання, як у деяких сіаліл-Lewis-структурах; прості 2′-FL та 6′-SL не є універсальними антагоністами. Bode та співавт. (2004) спостерігали зміни тромбоцитарно-нейтрофільних комплексів в експерименті. Це механістичні дані, а не встановлена терапія сепсису.
ITIM-сигнали частини Siglec можуть залучати фосфатази SHP-1/SHP-2 та обмежувати активацію. Із цієї загальної біології не випливає, що спожита вільна 6′-SL пригнічує процеси Siglec-9, NADPH-оксидазу або нейтрофільні позаклітинні пастки. Потрібні окремі дані про ліганд, функцію й досяжну концентрацію.
Дозрівання Th1, Th2, Th17 і регуляторних T-клітин залежить від багатьох сигналів. HMO та метаболіти можуть впливати на середовище, але універсальне «перемикання імунітету» не встановлено. Ацетат і бутират не є однаковими інгібіторами гістондеацетилаз. IL-22 може підтримувати епітеліальний захист, тому його пригнічення не є загальною метою.
Goehring та співавт. (2016) вимірювали цитокіни в підгрупі дослідження годування з окремою референтною групою грудного вигодовування. Зміни цитокінів плазми або стимульованих клітин — імунологічні результати, а не доказ запобігання кожній інфекції чи клінічної еквівалентності суміші й молока.
Частину HMO виявляють у крові та сечі немовлят (Goehring та співавт., 2014; Underwood та співавт., 2015). Це підтверджує можливість системного доступу, а не фіксовану біодоступність 1–2% для всіх структур. Позакишковий ефект потребує даних про експозицію, рецептор та результат; профілактика RSV чи інфекцій сечових шляхів не випливає з самого виявлення молекули.
6. Виробництво та якість інгредієнта
Деякі HMO отримують ферментацією сконструйованих штамів, зокрема похідних E. coli K-12. Інженерія забезпечує GDP-фукозу й перенесення фукози на лактозу відповідною фукозилтрансферазою. manB/manC, gmd і wcaG описують функції утворення попередників; людський FUT2 не є загальною назвою всіх бактеріальних фукозилтрансфераз. Конкретні зміни, як інактивація lacZ, залежать від платформи.
Після ферментації відділяють клітини, очищують і концентрують продукт. Важливі ідентичність HMO, домішки інших цукрів, залишкові білки, мікробіологічна якість і, залежно від процесу, ендотоксин та матеріал виробничого організму. Не можна обіцяти однаковий вихід, чистоту 98% чи абсолютну відсутність усіх домішок для кожного виробника. Відповідь FDA на GRN 852 описує специфікації конкретного 2′-FL; це приклад контролю продукту, а не універсальний стандарт HMO (FDA, 2019).
7. Що встановлюють дослідження дитячих сумішей
Дослідження
Питання
Тлумачення
Marriage та співавт., 2015
Ріст і надходження 2′-FL у доношених дітей на різних сумішах
Дані для певних продуктів і здорових учасників; грудне вигодовування було окремою референтною групою
Goehring та співавт., 2016
Імунологічні показники в підгрупі
Зміни цитокінів не дорівнюють клінічному захисту від інфекцій
Puccio та співавт., 2017
1 г/л 2′-FL і 0,5 г/л LNnT; 175 рандомізованих дітей
Ріст був первинним результатом, захворювання й ліки — вторинними
Berger та співавт., 2020
Мікробні спільноти й подальші антибіотики
Аналіз спільноти не встановлює причинного впливу одного виду
У Puccio суміш із HMO давали до шести місяців. Прибавка маси до чотирьох місяців відповідала наперед заданому критерію не меншої ефективності. Подальше спостереження не означало безперервного отримання HMO до року. Вторинні відмінності щодо бронхіту, нижніх респіраторних інфекцій та антибіотиків важливі для подальшого вивчення; вони включали повідомлення батьків і аналіз без поправки на множинні порівняння. Це не універсальні відсотки захисту чи доведена профілактика отиту. Фінансування виробником також є частиною контексту (Puccio та співавт., 2017).
Зміни мікробіоти можуть бути проміжним механізмом, але не гарантують клінічного результату. Аналіз 16S рРНК не завжди розрізняє близькі види й штами. Збільшення роду Bifidobacterium не доводить колонізації саме B. infantis EVC001 (Berger та співавт., 2020).
8. Дорослі, СПК і запальні захворювання кишківника
Elison та співавт. (2016) досліджували 100 здорових дорослих протягом двох тижнів із 2′-FL, LNnT або їхніми поєднаннями, зокрема до 20 г/добу. Оцінювали переносимість і мікробіоту. Короткий дослід у здорових добровольців не встановлює тривалої безпеки для всіх пацієнтів і не доводить лікування синдрому подразненого кишківника (СПК).
У відкритому багатоцентровому дослідженні Palsson та співавт. (2020) залучили 317 людей із СПК; 245 завершили курс. Вони отримували 5 г/добу суміші 2′-FL:LNnT 4:1 протягом 12 тижнів. Поліпшення від вихідного рівня не відокремлює ефект інгредієнта від плацебо, зміни звичок і природних коливань симптомів, адже контрольної групи не було.
Iribarren та співавт. (2020) провели окреме рандомізоване плацебо-контрольоване дослідження мікробіоти; наступна публікація розглядала метаболіти та слизову відповідь (Iribarren та співавт., 2021). Кожна стаття не є незалежним повторенням доказу клінічної ефективності. Важливі наперед визначені результати, різниця між групами й дизайн.
Для запальних захворювань кишківника експериментальний захист бар’єра або зміна метаболітів не означають ремісії виразкового коліту чи хвороби Крона. Універсального лікувального протоколу HMO для СПК, надмірного бактеріального росту в тонкій кишці або цих запальних захворювань не встановлено. Дози зі статей описують умови досліджень, а не індивідуальні призначення.
9. Синбіотики, алергія, мозок і метаболічні гіпотези
Поєднання HMO з відповідним живим штамом є синбіотичною стратегією; результат залежить від харчування й початкової мікробіоти. Frese та співавт. (2017) описали збереження EVC001 у грудних немовлят після прийому. Це не гарантує однакової колонізації за всіх умов. У дорослих B. infantis разом із HMO давав зворотне приживлення, а не гарантовану довічну присутність без субстрату (Button та співавт., 2022). ATCC 15697, EVC001 та інші штами потребують окремих доказів.
Очищений вуглевод і живий пробіотик мають різні ризики. У 2023 році FDA попередило про інвазивні інфекції, пов’язані з деякими пробіотичними продуктами в госпіталізованих недоношених дітей. Це не попередження про сам HMO, але воно важливе для оцінки синбіотиків у вразливій групі (FDA, 2023).
У немовлят з алергією на білок коров’ячого молока досліджували глибоко гідролізовану суміш із двома HMO. Ріст, переносимість і вторинні інфекційні результати не доводять швидшого зникнення алергії чи запобігання всьому атопічному маршу (Vandenplas та співавт., 2022). Важливий повний склад: HMO не робить невідповідний білок гіпоалергенним.
Сіалова кислота входить до гангліозидів і бере участь у полісіалілюванні NCAM, важливому для нервової тканини. Ендогенний синтез пов’язаний із GNE, а полісіалілювання — зі ST8SIA2/ST8SIA4. Це не доводить обов’язкового дефіциту без добавки сіаліллактози. Її харчові ізомери змінювали сіалову кислоту гангліозидів в окремих ділянках мозку поросят; біохімічний результат у тварин не встановлює підвищення інтелекту дітей (Jacobi та співавт., 2016).
Мікробні кислоти можуть брати участь у сигналах FFAR2/FFAR3 і кишкових гормонів. Це пояснює інтерес до HMO, GLP-1 та метаболізму, але не доводить лікування стеатотичної хвороби печінки, гарантованого зниження LPS чи поліпшення інсулінової чутливості людини. Загальний механізм описано в матеріалі про GLP-1 та харчові секретагоги.
10. Безпека й практичне тлумачення
Оцінка безпеки стосується певної структури, процесу, складу, групи споживачів та умов використання. Відповідь FDA без запитань до конкретного повідомлення GRAS стосується висновку заявника в зазначених умовах; це не схвалення ліків чи всіх оздоровчих тверджень (FDA, 2019). EFSA оцінює безпеку нових харчових інгредієнтів, тоді як дозвіл у ЄС є окремим процесом. Висновок щодо 2′-FL і LNnT не охоплює автоматично всі HMO (EFSA, 2022).
Великі кількості вуглеводів, які ферментуються можуть спричиняти газоутворення, здуття чи зміни випорожнень. Переносимість залежить від суміші, кількості й людини. Токсикологічні рівні у тварин не можна прямо перетворювати на лікувальну дозу немовляти. Самостійне додавання HMO не відтворює випробувану суміш і може ускладнити оцінку її складу.
Кожен висновок слід співвідносити з дослідженою молекулою чи сумішшю, штамом, віком і результатом. HMO — важливий напрям харчової науки й мікробної екології. Дані про ріст і переносимість певних сумішей, спостережні зв’язки та механістичні експерименти мають різний зміст; разом вони не утворюють універсального лікувального протоколу.
Метод підготовки: версія від 8 жовтня 2026 року ґрунтується на вибірковій перевірці первинних досліджень та офіційних документів. Використано доступні розділи повних текстів, реферати й індексовані описи первинних публікацій; повного доступу до всіх статей не було. Це оповідний аналіз, а не систематичний огляд, оцінка GRADE чи незалежне рецензування.
Часті питання
HMO та 2′-FL — те саме?
Ні. HMO — родина олігосахаридів, а 2′-FL — одна структура. Її результати не можна автоматично переносити на всі HMO чи все грудне молоко.
Молоко несекреторної матері гірше?
Секреторний статус змінює окремі HMO. Він не робить молоко неповноцінним і не визначає здоров’я дитини за одним маркером.
HMO гарантують захист від інфекцій?
Ні. Ефект залежить від білків патогена й будови гліканів. Експерименти та вторинні результати не встановлюють однакового захисту від кожної інфекції.
Чи можна давати DSLNT для профілактики НЕК?
Тваринні й спостережні дані підтримують подальші дослідження, але не дають готового протоколу самостійного призначення недоношеним.
Яка доза HMO лікує СПК?
Універсальну лікувальну дозу не встановлено. Опубліковані кількості стосуються досліджень із різними сумішами, дизайном і учасниками.
Суміш із HMO відтворює всі властивості молока?
Вона додає окремі вуглеводи. Грудне молоко є складнішою системою, і клінічну еквівалентність не можна вивести з одного інгредієнта.