UCP1, UCP2, UCP3: термогенез, бурый жир и протонный транспорт — NutriFit
UCP1, UCP2 и UCP3: протонный транспорт, термогенез и пределы стимуляции
Как UCP1 связывает жирные кислоты, протонный градиент и тепло; чем отличаются UCP2/UCP3, как измеряют разобщение и почему холод, добавки и бежевение требуют отдельной клинической оценки.
Митохондриальное дыхание и синтез АТФ связаны электрохимическим градиентом, но связь не обязана быть жёсткой. Часть энергии может рассеиваться при обратном переносе протонов через внутреннюю мембрану. В бурых и активированных бежевых адипоцитах UCP1 превращает этот путь в регулируемый источник тепла. Названия UCP2 и UCP3 отражают родство белков, однако не устанавливают одинаковую функцию: их участие в обмене субстратов, редокс-сигналах и клеточном ответе требует отдельного рассмотрения.
Чтобы понять клинический смысл разобщения, нужно различать три уровня: транспорт через мембрану, работу жировой клетки и расход энергии всего человека. Рост потребления кислорода в клеточной культуре ещё не означает снижение массы тела; увеличение захвата глюкозы на ПЭТ не измеряет тепловую мощность ткани. Далее механизм прослеживается от структуры переносчика до этих границ интерпретации.
1. От химического разобщителя к физиологическому термогенезу
1.1. Почему дыхание может продолжаться без сопоставимого синтеза АТФ
Исследования окислительного фосфорилирования середины XX века, включая работы Loomis и Lipmann, затем Lardy и Wellman, показали: скорость окисления субстратов и образование АТФ можно изменить неодинаково. Липофильный слабокислотный разобщитель переносит протоны через мембрану в обход АТФ-синтазы. Дыхательная цепь компенсирует потерю градиента, пока доступны субстраты и кислород, а энергетическая эффективность падает.
История 2,4-динитрофенола (DNP) сделала этот принцип медицински наглядным. Его применение для снижения веса в 1930-х сопровождалось тяжёлой токсичностью: химическое разобщение не ограничивается нужным депо, а чрезмерное выделение тепла и дефицит АТФ опасны для органов. Биологическая возможность увеличить расход энергии поэтому сама по себе не является лечебной рекомендацией. Регулируемый UCP1 и бесконтрольная протонная проводимость отличаются прежде всего локализацией, управлением и масштабом воздействия.
1.2. Хемоосмотическая связь и термогенин
В хемоосмотической модели Mitchell дыхательная цепь создаёт разность электрического потенциала и концентрации протонов между матриксом и межмембранным пространством. Их возвращение через АТФ-синтазу обеспечивает фосфорилирование АДФ. Путь возвращения через другой переносчик позволяет дыханию продолжаться, расходуя меньшую долю энергии на АТФ.
Работы с митохондриями бурого жира связали необычную протонную проводимость с белком, получившим название «термогенин», позднее UCP1. Связывание пуриновых нуклеотидов, влияние жирных кислот и выделение самого переносчика помогли отличить специфический механизм от повреждения мембраны. Клонирование гена закрепило принадлежность UCP1 к семейству митохондриальных переносчиков. Исторический обзор Nicholls и Locke и последующий синтез Cannon и Nedergaard дают контекст этой экспериментальной цепочки [2; 3].
1.3. Почему находка бурого жира у взрослых изменила вопрос
В 2009 году три независимые клинические работы — Cypess, van Marken Lichtenbelt и Virtanen с коллегами — продемонстрировали метаболически активные депо бурого жира у взрослых людей. Утверждение, что значимый термогенный жир существует только у младенцев и грызунов, стало несостоятельным. Но эти работы не доказывали, что холод позволяет каждому человеку предсказуемо сбрасывать килограммы [4; 5; 6].
UCP2 и UCP3 были описаны ранее, в 1997 году. Сходство последовательностей породило предположение о распространённой системе «сжигания энергии», однако дальнейшая биология оказалась сложнее. Отсутствие типичного нарушения холодовой защиты при выключении этих генов и результаты транспортных экспериментов не позволяют приравнивать их к UCP1 [14; 15; 13].
2. Архитектура переносчика и различие изоформ
2.1. Семейство SLC25: подвижная белковая система
UCP1 относится к семейству SLC25 — переносчикам внутренней митохондриальной мембраны. Его строение включает три родственных повтора и шесть трансмембранных спиралей. Повторы создают центральную полость и элементы затворов, доступных со стороны матрикса или межмембранного пространства. Характерный мотив P–X–[D/E]–X–X–[K/R] участвует в организации этой архитектуры, но одна последовательность не определяет транспортируемый субстрат.
В моделях митохондриальных переносчиков сети заряженных остатков и изменение конформации обеспечивают чередующийся доступ к полости. Это полезнее образа постоянно открытой «дырки»: UCP1 — регулируемая транспортная система, а не пассивный разрыв липидного бислоя. При этом конкретный путь протона и жирнокислотного аниона в активном UCP1 нельзя вывести только из общего родства с другими SLC25.
2.2. Что показали структуры 2023 года
Криоэлектронные структуры человеческого UCP1 дали непосредственное представление о шести спиралях, центральной полости и взаимодействии с пуриновыми нуклеотидами. Jones и коллеги исследовали структурную основу нуклеотидного ингибирования; Kang и Chen — связывание нуклеотидов и DNP [8; 9].
Важна граница метода: структура нуклеотид-связанного белка показывает стабилизированное состояние, а не полный цикл жирнокислотно-зависимого переноса в живом адипоците. Нельзя объявлять на её основании доказанным единственный «протонный провод» или утверждать, что жирная кислота обязательно выталкивает нуклеотид из полости. Для динамического механизма нужны функциональные измерения вместе со структурными данными.
2.3. UCP1, UCP2 и UCP3 в тканях и эволюции
Белок и ген
Основной контекст
Что установлено лучше всего
Что нельзя автоматически заключить
UCP1 / SLC25A7
Бурые и активированные бежевые адипоциты
Регулируемый жирнокислотно-зависимый путь рассеивания градиента и несократительный термогенез
Что наличие мРНК гарантирует большой расход энергии организма
UCP2 / SLC25A8
Иммунные и другие клетки; распределение белка зависит от условий
Участие в метаболизме; экспериментально показан перенос C4-метаболитов
Что это повсеместный термогенин или исключительно протонный канал
UCP3 / SLC25A9
Прежде всего скелетная мышца, также другие тканевые контексты
Связь с обменом жирных кислот и адаптацией к метаболической нагрузке
Что его активация даёт доказанный способ похудения
Уровень транскрипта, количество белка и транспортная активность — разные величины. Универсальные проценты UCP в мембране и одинаковые коэффициенты усиления обмена для разных тканей не обоснованы. Особенно для UCP2 посттранскрипционная регуляция осложняет выводы по одной мРНК.
Семейство переносчиков эволюционно древнее, а физиологическая специализация отдельных UCP менялась между линиями животных. Например, потеря функционального UCP1 у свиней подчёркивает, что холодовая адаптация может опираться на иные механизмы. Нельзя переносить мышиные схемы экспрессии, маркеры клеточных линий и долю бурого жира на человека без оговорки о виде.
3. Протонный градиент, тепло и измерение дыхания
3.1. Знаки в уравнении важнее красивой цифры
Определим разности как «матрикс минус межмембранное пространство»: Δψ=ψm−ψi и ΔpH=pHm−pHi. Для переноса протона снаружи в матрикс электрохимический потенциал выражается через:
Δp=Δψ−F2.303RTΔpH,ΔGH+,i→m=FΔp.
Здесь R — газовая постоянная, T — абсолютная температура, F — постоянная Фарадея. При 37 °C коэффициент 2.303RT/F приблизительно равен 61,5 мВ на единицу pH. Матрикс обычно электрически отрицателен и более щелочной, поэтому оба компонента делают возвращение протона энергетически выгодным [1].
Например, при Δψ=−150 мВ и ΔpH=0,5 получается Δp≈−181 мВ. Это учебный расчёт, а не диагностический предел или обязательное состояние всех митохондрий. В литературе знак потенциала иногда задают наоборот; сравнивать цифры без определения направления нельзя.
Электрическое поле внутри мембраны оценивают как ∣Δψ∣/d, где d — её толщина. Подставлять вместо электрического потенциала весь Δp, включающий химический компонент, некорректно. Из этого расчёта также не следует универсальный порог «пробоя» живой мембраны.
3.2. Базальная утечка и регулируемый путь UCP1
Обратный поток протонов не целиком проходит через АТФ-синтазу. В него вносят вклад липидное окружение и мембранные белки, включая переносчик АДФ/АТФ; величина зависит от потенциала, ткани и условий опыта. Термин «утечка» описывает энергетический эффект, а не обязательно повреждение. Нельзя назначить всем клеткам один процент базального обмена, расходуемый на этот процесс.
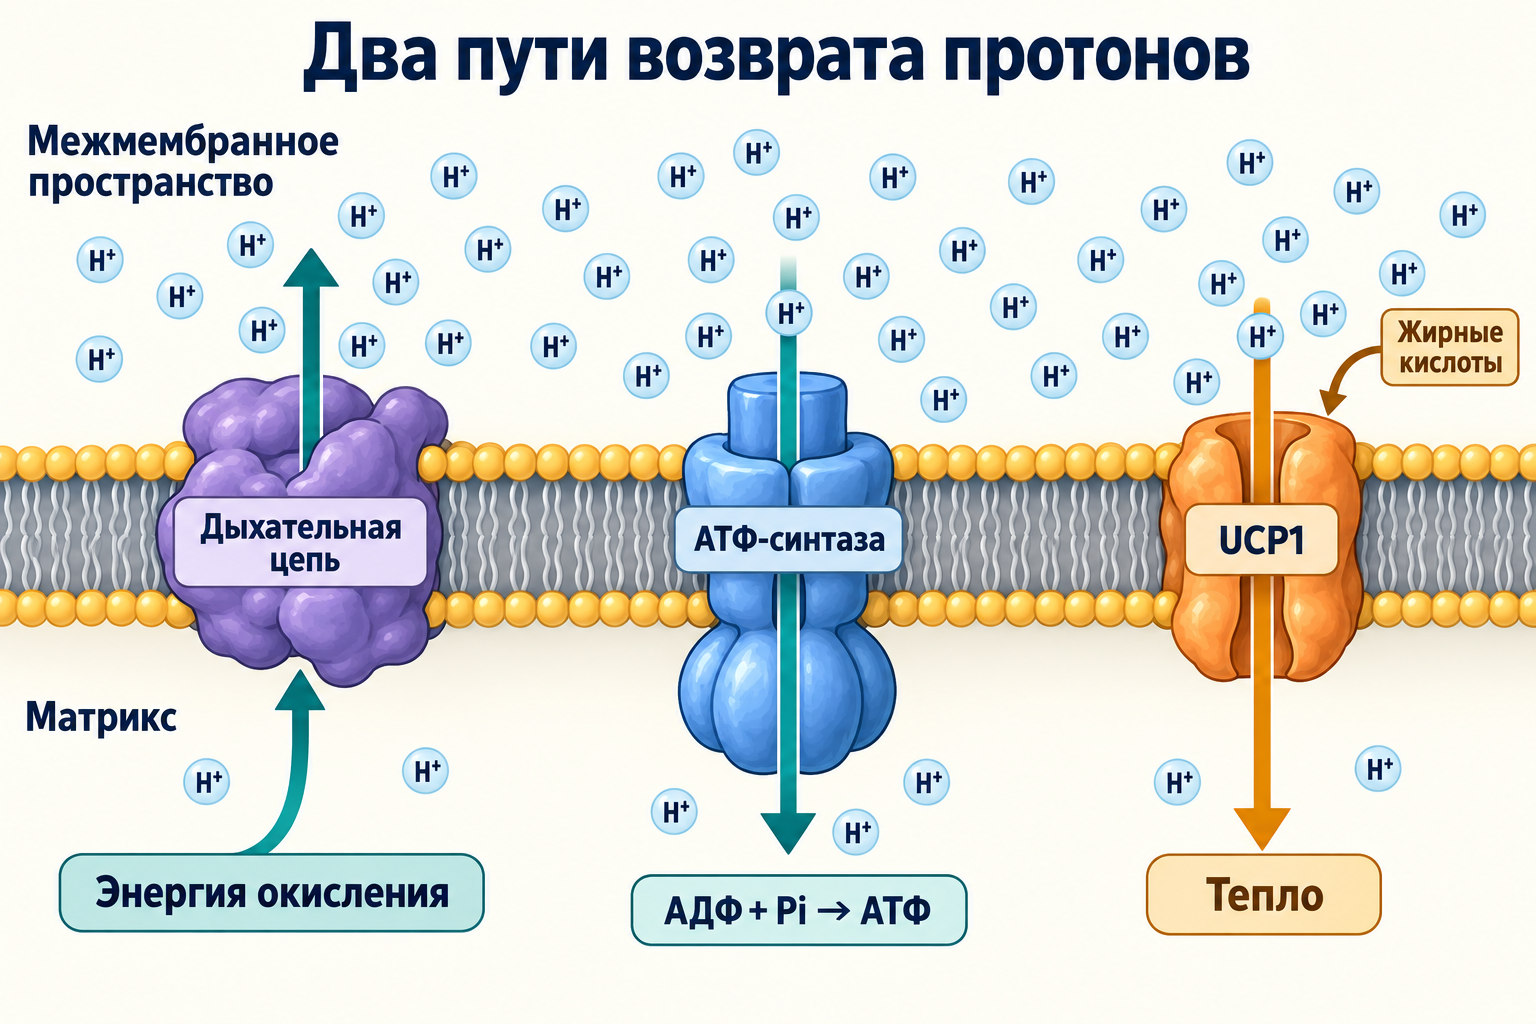
UCP1 добавляет к этому фону регулируемую проводимость. Жирные кислоты и нуклеотиды изменяют её, а симпатическая система связывает активность с потребностью в тепле. Чем больше протонов возвращается через UCP1, тем меньшая их доля доступна для продуктивного сопряжения при прочих равных.
Стехиометрия АТФ-синтазы не тождественна клеточной цене АТФ. Для восьмисубъединичного c-кольца оборот соответствует переносу восьми протонов и синтезу трёх АТФ, то есть 8/3 протона на каталитическую АТФ. Доставка фосфата и обмен АДФ/АТФ требуют дополнительных энергетических затрат. Поэтому округлённое «2,7 H⁺ на АТФ» нельзя выдавать за полную стоимость фосфорилирования и экспорта АТФ.
На схеме дыхательная цепь создаёт градиент, а два параллельных пути расходуют его. Стрелки показывают направление протонного потока, не фиксированное соотношение между образованием АТФ и тепла. Адипоцит сохраняет потребность в АТФ для транспорта, синтеза и поддержания клеточных процессов.
3.3. Энергетическая мощность и кислород
Если молярный поток протонов через рассеивающий путь равен JH в моль/с, соответствующая энергетическая мощность оценивается:
Pdiss=JH∣FΔp∣.
Для электрического тока IH в амперах эквивалентная запись — Pdiss=∣IHΔp∣, с потенциалом в вольтах. Это описание потока свободной энергии; тепловой баланс всей клетки включает и другие реакции.
Снижение противодавления градиента часто ускоряет дыхательную цепь и потребление кислорода (OCR), если хватает топлива, кислорода и мощности комплексов. При слишком сильном разобщении или ограничении субстрата это условие нарушается. Рост OCR поэтому не обязателен при любой потере потенциала и не доказывает оздоровление митохондрий.
Отношение АТФ/O уменьшается при дополнительном рассеивании. Нужно уточнять, относится ли O к атому кислорода или к молекуле O₂, а также как измеряли АТФ. Формулировки «АТФ/O падает до нуля» и «весь бурый адипоцит перестаёт синтезировать АТФ» не описывают обычный регулируемый термогенез.
3.4. Что в действительности измеряют респирометрия и Seahorse
Классические состояния Chance–Williams описывают условия опыта с изолированными митохондриями: исходное состояние, подача субстрата, стимуляция АДФ (state 3) и дыхание после его расходования (state 4). Отношение скоростей RCR=V3/V4 помогает оценивать сопряжение в конкретном препарате. Универсального «здорового» RCR для всех тканей и протоколов нет; разобщённое состояние не является точной моделью физиологической активности UCP1 [27].
Этап анализа клеточного дыхания
Полезный вывод
Ограничение
Базальный OCR
Исходное потребление кислорода
Сумма АТФ-связанного дыхания, утечки и других вкладов
Олигомицин
Разность до/после помогает оценивать АТФ-связанный компонент
Блокада АТФ-синтазы изменяет потенциал; остаток не специфичен для UCP1
Титрованный FCCP
Максимальное дыхание при подходящих условиях
Недостаточная или чрезмерная доза и дефицит топлива искажают результат
Требуются контроль токсичности, фон и нормализация
Клеточные число и состояние, белок или ДНК для нормализации, доступность субстратов и длительность воздействия должны быть сопоставимы. ECAR отражает внеклеточное подкисление и без дополнительного расчёта не равен исключительно гликолизу. Чтобы приписать изменение именно UCP1, полезны отсутствие гена и его восстановление, контроль жирных кислот и нуклеотидов, измерение потенциала и, когда возможно, прямого тока через мембрану. Один многократный рост OCR не идентифицирует белок.
4. Как включается UCP1
4.1. Нуклеотидное торможение зависит от химической формы
Пуриновые нуклеотиды ATP, ADP, GTP и GDP ингибируют UCP1 в биохимических системах. Их связывание с переносчиком ограничивает проводимость. Но суммарная концентрация ATP в клетке не равна количеству доступного ингибитора: важны свободная и связанная с Mg²⁺ формы, pH, компартмент и локальное окружение [8].
Следовательно, «ATP много — UCP1 всегда закрыт» слишком грубая модель. В активированном адипоците изменение липолиза и доступности жирных кислот сосуществует с нуклеотидной регуляцией. Структурная фиксация ингибированного состояния не отменяет физиологическую возможность быстрого включения теплопроизводства.
4.2. Жирная кислота: переносимый участник или удерживаемый кофактор?
Длинноцепочечные жирные кислоты необходимы для характерной активности UCP1. В модели жирнокислотного цикла протонированная форма RCOOH перемещается через липидную фазу к матриксу и освобождает протон. Анион RCOO⁻ возвращается с помощью переносчика. Суммарный цикл переносит протон внутрь, хотя белок может непосредственно переносить анион [10; 11].
Альтернативные модели предполагают, что жирная кислота остаётся тесно связанной с белком и её карбоксильная группа участвует в переносе протона, тогда как гидрофобная цепь ограничивает полное перемещение молекулы. Термин «кофактор» здесь не означает, что UCP1 превращается в обычную открытую водную пору.
Электрофизиологические опыты Fedorenko и коллег на внутренней мембране бурожировых митохондрий непосредственно связали ток UCP1 с жирными кислотами и их анионной группой. Они существенно уточнили старые схемы, но не дают оснований рисовать произвольную цепочку аминокислот как окончательно доказанный маршрут каждого протона [7].
Для обеих интерпретаций критична свободная, доступная жирная кислота. Альбумин и FABP связывают её, меняя активную концентрацию; суммарное содержание липидов не измеряет эту величину. Поэтому концентрации в реконструированной мембране нельзя напрямую переводить в дозу перорального «активатора».
4.3. Симпатический сигнал и липолиз
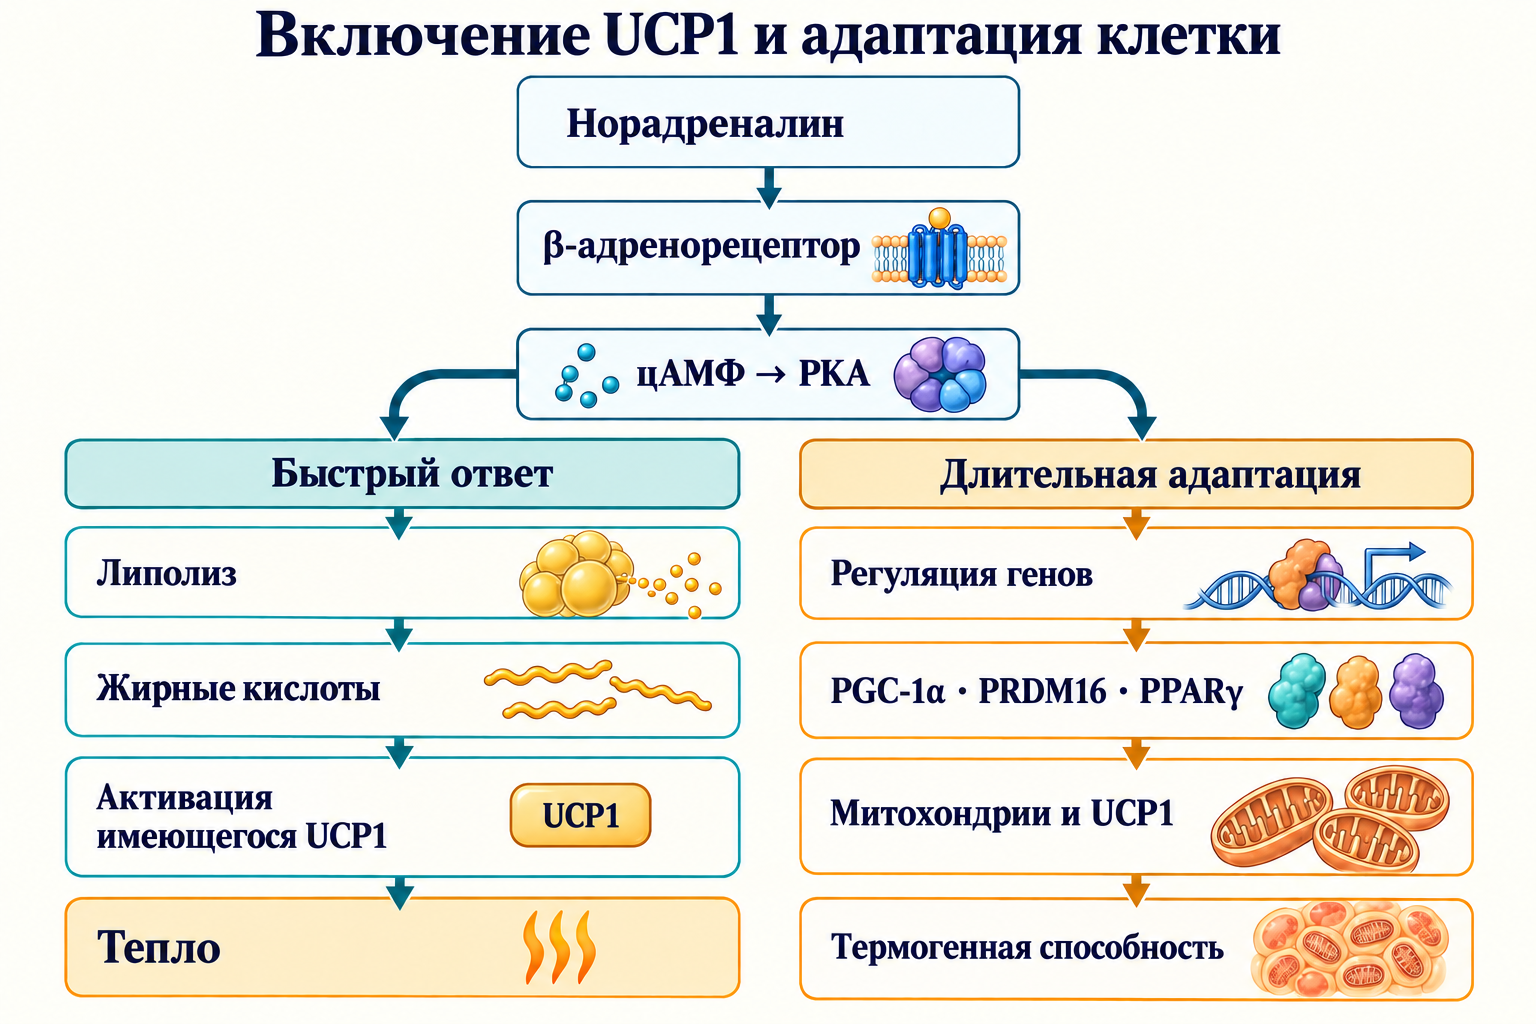
Охлаждение кожи запускает терморегуляторную обработку сигналов в центральной нервной системе и симпатический выход к жировой ткани. Норадреналин активирует β-адренорецепторы; через Gs, аденилатциклазу, цАМФ и PKA сигнал достигает липидной капли. У грызунов важен β3-рецептор, но человеческий BAT нельзя описывать только этой схемой: первичные данные указывают на значимую роль β2-сигнализации [31].
PKA меняет регуляцию перилипина PLIN1 и гормончувствительной липазы HSL. Освобождение коактиватора ABHD5/CGI-58 поддерживает ATGL: триацилглицерол превращается в диацилглицерол, HSL продолжает гидролиз, а моноглицеридлипаза завершает его. Для понимания достаточно последовательности TG → DAG → MAG → глицерин и жирные кислоты; отдельные номера фосфорилируемых остатков зависят от белка и вида.
Жирные кислоты одновременно служат топливом для окисления и участниками активации UCP1. Клетка также получает субстраты из кровотока, а липидная капля не является единственным источником. Быстрое включение уже имеющегося переносчика отличается от более медленного увеличения его количества и митохондриальной массы.
Развилка на схеме отделяет функциональную активацию от изменения клеточной программы. PGC-1α, PRDM16 и PPARγ показаны как взаимодействующие регуляторы, а не как последовательность ферментов. Она не задаёт универсальную длительность адаптации и не утверждает, что любое повышение цАМФ гарантирует бежевение.
5. Бурые и бежевые клетки: изменение программы
5.1. Похожие функции, неодинаковое происхождение
Бурые адипоциты обычно содержат много небольших липидных капель и митохондрий; богатое кровоснабжение помогает доставлять топливо и распределять тепло. Бежевые клетки возникают в некоторых беложировых депо при определённых стимулах. Их происхождение может включать дифференцировку предшественников и переключение уже существующих клеток. После отмены стимула фенотип способен ослабевать, сохраняя элементы памяти предыдущей активации [20].
Myf5, Pax7 и другие маркеры позволили изучать происхождение бурых клеток у мышей, однако формула «весь бурый жир Myf5⁺, весь бежевый Myf5⁻» чрезмерна. Панели Zic1/Lhx8 и CD137/TMEM26/TBX1/CITED1 полезны в определённых моделях, но не являются универсальными клиническими тестами человеческого депо. Тип клетки надёжнее определять совокупностью происхождения, молекулярных признаков и функции, чем одним маркером.
5.2. PRDM16, PGC-1α и EBF2 делают разные работы
PRDM16 взаимодействует с транскрипционными партнёрами, включая C/EBPβ и PPARγ, и помогает организовать термогенную клеточную идентичность. Эксперименты переключения программы бурого жира и скелетной мышцы показали его причинную роль в модельных системах [17]. Это не означает, что изменение одного белка в организме автоматически создаёт новое функциональное депо.
PGC-1α, продукт PPARGC1A, — коактиватор, а не самостоятельно связывающий ДНК транскрипционный фактор. Через партнёров PPAR, ERR и ядерные респираторные факторы он координирует окислительный обмен и митохондриальную биогенезную программу, включая TFAM. Холод-индуцируемая роль коактиватора была описана Puigserver и коллегами [18]. Увеличение транскрипта не устанавливает фиксированное «удвоение митохондрий» или одинаковый прирост тепла.
EBF2 помогает формировать доступность регуляторных участков хроматина и взаимодействие с комплексами ремоделирования, в том числе SWI/SNF. Система работает как согласованная сеть: клеточная идентичность, количество переносчика, снабжение субстратами и иннервация должны соответствовать друг другу. Название молекулярной мишени ещё не валидирует добавку, якобы управляющую всей сетью.
5.3. SIRT1 и ацетилирование PPARγ
В эксперименте Qiang и коллег SIRT1-зависимое деацетилирование PPARγ, включая Lys268 и Lys293, изменяло взаимодействие регуляторных белков и способствовало буроподобному ремоделированию белой жировой ткани. Это конкретное звено между модификацией белка и программой клетки, а не доказательство необратимого бежевения после «активации сиртуинов» [23].
SIRT1 использует NAD⁺, но наличие этого кофактора в реакции не означает, что повышение его уровня в крови воспроизводит результат в жировом депо. Компартменты, доступность фермента и контекст PPARγ имеют значение. Родственную тему кофакторов и клинических ограничений разбирает материал о ниацине и безопасности витамина B3.
5.4. Полиморфизмы не определяют персональный протокол
В исследованиях обсуждаются UCP1 −3826A>G (rs1800592), UCP2 −866G>A (rs6593660) и UCP3 −55C>T (rs1800849). Ассоциации с экспрессией, ожирением или углеводным обменом зависят от популяции, условий и дизайна. Промоторный вариант может быть биологически интересен, но его эффект не равен индивидуальному диагнозу или неизменной потере термогенной способности.
Для назначения температуры, длительности охлаждения или берберина по этим SNP нет валидированного алгоритма. Корреляция варианта UCP2 с диабетом не доказывает, что у конкретного человека нужно усилить или подавить этот белок. Так же нельзя переводить ассоциации UCP3 с липидным обменом в обещание защиты от инсулинорезистентности. Здесь генетика помогает формулировать исследовательский вопрос, а не заменяет оценку клинического риска.
6. UCP2 и UCP3: обмен веществ вместо универсального термогенина
6.1. Почему название семейства вводит в заблуждение
UCP2 и UCP3 не воспроизводят физиологическую специализацию высокоактивного UCP1 в буром жире. Их количество, регуляция и тканевые задачи отличаются; фенотипы генетического выключения не показывают простой потери основного несократительного термогенеза. Однако отсутствие одного фенотипа не означает отсутствие функции: компенсация, питание, температура содержания животных и клеточный тип меняют результаты [13].
Для UCP2 особенно важны прямые данные транспорта. Vozza и коллеги показали перенос C4-метаболитов, включая малат, оксалоацетат и аспартат, связанный с обменом фосфата и протонов [30]. Это дополняет представление о распределении углеродных субстратов между путями окисления. Сведение UCP2 исключительно к «слабому протонному каналу» теряет существенную часть биологии.
6.2. Мягкое разобщение и образование АФК
Часть образования активных форм кислорода зависит от потенциала, восстановленности переносчиков и направления электронного потока. При определённых субстратах высокий градиент способствует обратному транспорту электронов к комплексу I; небольшое снижение движущей силы может существенно уменьшить этот источник супероксида. Но зависимость не одинакова для всех участков дыхательной цепи и всех метаболических состояний [12].
Поэтому универсальные обещания «сдвиг на 10–15 мВ убирает 70–90% радикалов без энергетической цены» некорректны. Число, полученное в одном препарате, не задаёт клеточную норму; отрицательный знак потенциала также нельзя сравнивать как обычную положительную шкалу. Окислительный стресс определяется не только образованием АФК, но и их устранением, локализацией и повреждением мишеней.
Модели обратной связи через жирные кислоты и продукты пероксидации, например 4-HNE, исследовались для UCP-зависимой проводимости. Их условия, специфичность и физиологический масштаб важны. АФК выполняют сигнальные функции, а меньшая их регистрация не всегда означает лучший иммунный ответ или продление жизни. «Мягкое разобщение» — механистическая концепция, не готовый режим профилактики.
6.3. Липидные анионы: данные и гипотезы
Для UCP3 обсуждают помощь при несоответствии поступления жирных кислот их окислительной мощности. Экспорт жирнокислотных анионов и продуктов пероксидации предложен как возможный механизм защиты от липидной нагрузки. Но такие модели не следует описывать как универсально доказанный селективный вывоз всех гидроперекисей из матрикса [13].
Липидная пероксидация затрагивает мембранные фазы; не все её продукты — свободные водорастворимые анионы в матриксе. Внутренняя мембрана обладает низкой проницаемостью для многих заряженных веществ, однако содержит специализированные переносчики. Для каждого предполагаемого субстрата требуется показать транспорт, направление и значение в клетке. Для UCP2 доказательства переноса C4-метаболитов следует отделять от гипотез о липидных анионах UCP3.
6.4. β-клетка и макрофаг используют митохондрии по-разному
Глюкозостимулированная секреция инсулина включает следующую связь:
Изменение митохондриального обмена может влиять на эту цепочку. Работа Zhang и коллег связала UCP2 с отрицательной регуляцией секреции инсулина в экспериментальных моделях [16]. Но клеточный контекст, субстраты, редокс-сигналы и хроническая нагрузка не позволяют заменить всё объяснением «UCP2 просто отводит протоны». Нельзя назначать подавление UCP2 как лечение диабета на основании одного нокаута.
В макрофагах UCP2 участвует в метаболических и редокс-изменениях, влияющих на активацию и защиту от патогенов. Упрощённая ось «больше UCP2 — M2, меньше — M1» не описывает разнообразие иммунных состояний. Бактерицидный дыхательный взрыв связан также с NADPH-оксидазами, а не только с митохондриальным потенциалом. Антиоксидантный эффект в одном опыте не даёт основания обещать общее противовоспалительное действие в организме.
7. Термогенез у человека и пределы его стимуляции
7.1. Депо бурого жира и значение ПЭТ
У взрослых термогенная жировая ткань часто определяется в шейно-надключичной области; встречаются паравертебральные, медиастинальные и другие депо. Их состав неоднороден и зависит от возраста, температуры, питания и метода обнаружения. Общая анатомическая карта не задаёт одинаковую массу активной ткани у каждого человека [4; 6].
¹⁸F-ФДГ ПЭТ-КТ регистрирует захват аналога глюкозы. Этот сигнал полезен для выявления холод-активируемой ткани, но не равен расходу кислорода или выделению тепла. Инсулин, кровоток и доступность субстратов влияют на захват; жирная кислота может питать термогенез без пропорционального роста ФДГ-сигнала. Для энергетической оценки нужны дополнительные методы, включая непрямую калориметрию и исследования тканевого окисления.
Бурый жир получает глюкозу и липиды из кровотока. LPL помогает освобождать жирные кислоты из богатых триглицеридами липопротеинов, а перенос и окисление субстратов поддерживают теплопроизводство. В мышиной работе Bartelt и коллег показан заметный вклад BAT в клиренс триглицеридов; человеческое исследование Chondronikola связало активацию BAT с энергетическим и глюкозным обменом [25; 26]. Вид и экспериментальный режим принципиальны.
Ни из этих результатов, ни из обратной связи BAT с индексом массы тела нельзя вывести гарантированные «150–300 ккал ежедневно» и линейную потерю «4–8 кг за год». Компенсация аппетитом, изменение активности и адаптация меняют баланс. Корреляция количества активного BAT с метаболическим здоровьем также не доказывает, что именно BAT полностью объясняет различия между группами.
7.2. Пищевые вещества: мишень ещё не клинический результат
Вещество
Обсуждаемый механизм
Граница доказательств
Капсаицин и капсиноиды
TRPV1-зависимые сенсорные сигналы и симпатический ответ
Небольшие человеческие исследования термогенеза не устанавливают устойчивое лечение ожирения; экстракты не равны острому перцу
Берберин
AMPK и программы окислительного обмена, PGC-1α/PRDM16
Бежевение и BAT-эффекты работы Zhang 2014 показаны в экспериментальных моделях, не как доказанное создание бежевого депо у пациентов
Ментол и родственные вещества
Холод-чувствительный TRPM8
Рецепторная активация не гарантирует безопасную имитацию охлаждения и снижение веса у человека
EGCG и кофеин
Несколько метаболических и сигнальных мишеней
Упрощение до длительного торможения COMT в синапсе BAT и прямой блокады PDE клинической дозой кофеина не доказано
Ресвератрол и птеростильбен
Модельные взаимодействия с AMPK/SIRT1 и транскрипционными программами
Механизм деацетилирования PPARγ не доказывает эквивалентность добавки активации фермента или устойчивое бежевение
Урсоловая кислота
В экспериментальных моделях обсуждаются IGF-1/Akt и изменения мышц/жировой ткани
Результаты у животных не устанавливают клиническую термогенную эффективность
Для капсиноидов существуют человеческие исследования холод-индуцируемого расхода энергии и рекрутирования BAT, но выборка и суррогатный исход ограничивают перенос результата на долговременное изменение массы тела [33]. Исследование берберина 2014 года относится к клеточным и животным экспериментам [24]. Эти работы отвечают разным вопросам и не подтверждают синергизм их совместного приёма.
Пищевое происхождение не устанавливает сердечно-сосудистую безопасность концентрированной смеси. Кофеин может усиливать сердцебиение и нарушать сон, экстракты зелёного чая имеют собственные ограничения; состав и лекарственные взаимодействия тоже значимы. Сопоставление напитка и концентрированного продукта подробно обсуждается в материале о зелёном чае, полифенолах и безопасности.
Мирабегрон полезен как исследовательский пример адренергической стимуляции, но результаты у грызунов и человека различаются. Доза, рецепторная селективность и сердечно-сосудистые эффекты ограничивают перенос в практику [31]. Из повышения термогенеза в опыте не следует назначение препарата для самостоятельного снижения веса.
7.3. Мышцы, сердце и щитовидная железа
Физическая нагрузка меняет метаболические сигналы мышц. Исходная работа Boström и коллег связала PGC-1α, FNDC5 и выделяемый миокин иризин с буроподобной программой в экспериментальных моделях [19]. Этот путь не доказывает, что вся польза тренировок опосредована бежевением человеческого жира. Протеолиз FNDC5 выполняют ферменты, а PGC-1α регулирует программу экспрессии, поэтому рисунок «PGC-1α расщепляет FNDC5» был бы неверен.
Натрийуретические пептиды ANP и BNP через NPR-A/гуанилатциклазу, цГМФ, PKG и p38 MAPK могут включать липолитические и термогенные программы. Bordicchia и коллеги показали такой путь в мышиных и человеческих адипоцитах [21]. Это дополнительная линия регуляции, а не достаточное объяснение сердечной кахексии или свидетельство, что высокий BNP полезен пациенту.
Meteorin-like (METRNL) рассматривается как участник иммунно-жировых взаимодействий в модели термогенной адаптации [22]. Такие межтканевые сигналы требуют различать причинный эксперимент у животных, измерение циркулирующего маркера и установленный лечебный эффект. Наличие гормонального «диалога» не делает любой его компонент безопасной мишенью для усиления.
Тиреоидный гормон T₃ поддерживает транскрипционные и адренергические ответы термогенной ткани. Локальная дейодиназа DIO2 преобразует T₄ в T₃ и меняет внутриклеточную доступность сигнала. Это физиологическая регуляция, а не основание создавать системный тиреотоксикоз: избыток гормона затрагивает сердце, кости и мышцы, выходя далеко за пределы BAT.
7.4. Диабет, холод и желчные кислоты
Hanssen 2015: у восьми пациентов после холодовой акклиматизации чувствительность к инсулину выросла примерно на 43%; изменения преимущественно касались мышечного GLUT4, вклад BAT был небольшим [28]. Поэтому результат не следует представлять как доказанный эффект «GLUT4 в бурых адипоцитах через AMPK»: в самой работе активация AMPK не объясняла наблюдение.
В другом небольшом исследовании 2021 года десятидневное мягкое охлаждение без заметной дрожи у девяти пациентов не улучшило чувствительность к инсулину [32]. Различие протоколов и мышечной активности оставляет исследовательский вопрос открытым; обе работы не заменяют сравнительные испытания лечения диабета.
Желчные кислоты участвуют в сигнализации помимо переваривания жиров. В модели Watanabe активация TGR5/GPBAR1 была связана с цАМФ и DIO2-зависимым увеличением локальной тиреоидной активности и расхода энергии [29]. Микробиота преобразует первичные желчные кислоты во вторичные, меняя состав пула и его рецепторные эффекты. Одновременно существуют другие рецепторы и тканевые мишени, поэтому формула «изменить желчные кислоты — селективно включить BAT без системных эффектов» слишком сильна.
Этот механизм не подтверждает лечение диабета берберином или растворимыми волокнами именно через UCP1 и не делает самостоятельный приём желчных кислот термогенной стратегией. Потенциальную мишень необходимо отдельно проверять на эффективность, распределение и нежелательные эффекты у людей.
8. Практический смысл и пределы мониторинга
8.1. Что можно перенести из механизма
UCP1 показывает, что снижение эффективности сопряжения может быть физиологически полезным для сохранения температуры. UCP2 и UCP3 напоминают, что похожие переносчики решают неодинаковые задачи, а редокс-сигнал и использование субстратов нельзя свести к числу «сожжённых калорий». Функциональные различия сведены в таблицу раздела 2.3; повторная матрица с неподтверждёнными процентами белка или одинаковыми активаторами скрывала бы эти различия.
Физическая активность, питание и лечение метаболических заболеваний оцениваются по собственным клиническим результатам. Упражнения могут менять миокины и тканевые программы, но их польза не требует доказательства роста UCP1. Переносимость прохлады также не является тестом индивидуальной термогенной мощности: дрожь, сосудистые реакции, одежда и привычка к температуре меняют ощущения.
8.2. Почему готового мультимодального протокола здесь нет
Ни сочетание капсаицина, берберина, EGCG/кофеина, ресвератрола и ментола, ни объединение такой смеси с холодовыми сеансами не валидировано как единый клинический протокол стимуляции UCP1. Дозировки и длительность из отдельных механистических опытов не складываются в доказанный режим. Единицы жгучести SHU также не сообщают точную дозу капсаицина в капсуле без анализа состава.
Холод вызывает симпатический и сосудистый ответ; интенсивное воздействие и погружение в холодную воду отличаются от контролируемой мягкой акклиматизации. При сердечно-сосудистых заболеваниях, нарушениях чувствительности и других состояниях индивидуальный риск важнее механистического обещания. Боль в груди, выраженная слабость, спутанность и потеря контроля над дрожью требуют прекращения воздействия и медицинской оценки. Научные результаты не устанавливают универсальной домашней температуры или лечебной продолжительности охлаждения.
Показатель
Что помогает оценивать
Чего он не измеряет
Глюкоза, HbA1c
Углеводный обмен по клиническим показаниям
Специфическую активность UCP1
Триглицериды и ApoB
Липидный обмен и сердечно-сосудистый риск
Изолированный клиренс субстратов бурым жиром
Инсулин натощак, HOMA-IR
При определённом контексте — косвенные оценки обмена
Прямую тканевую чувствительность или мощность BAT
ТТГ и свободный T₄
Оценку функции щитовидной железы по показаниям
Локальную активность DIO2; широкий скрининг T₃ не служит тестом бежевения
Пульс и давление
Гемодинамику и переносимость воздействия
Эффективность митохондриального разобщения
ПЭТ-КТ
Специализированную исследовательскую или клиническую задачу
Повседневный скрининг «слабого бурого жира»
Снижение массы тела, улучшение HbA1c или триглицеридов может иметь множество причин. Приписывать изменение только UCP по этим анализам нельзя. Для обоснованного вмешательства нужны воспроизводимые клинические исходы и оценка безопасности; глубина молекулярной схемы не заменяет их.
Метод и ограничения
Это повествовательная научная редакция предоставленного исходного материала, завершённая 8 октября 2026 года. Темы и механистическая последовательность сохранены; спорные переходы от клеточных и животных данных к человеку уточнены. Выполнена целевая сверка первичных работ для ключевых транспортных и клинических утверждений и исправлены обнаруженные библиографические идентификаторы. Это не систематический поиск всей литературы, не формальная оценка GRADE и не внешнее рецензирование. Ссылки в квадратных скобках соответствуют общему списку источников; иллюстрации объясняют механизм без количественного масштаба.
Частые вопросы
UCP1 просто прекращает синтез АТФ?
Он создаёт параллельный путь расходования градиента. Клетка продолжает нуждаться в АТФ, а доля энергии, направленная в тепло, зависит от регуляции и доступности субстратов.
UCP2 и UCP3 выполняют ту же работу, что UCP1?
Нет. Их тканевые задачи отличаются; для UCP2 показан транспорт C4-метаболитов, а UCP3 связан с адаптацией липидного обмена. Они не являются доказанными универсальными термогенинами.
Доказывает ли активный BAT на ПЭТ большой расход калорий?
ФДГ-сигнал отражает захват аналога глюкозы. Он не равен прямому измерению тепла или кислородного обмена и не предсказывает индивидуальную потерю веса.
Можно ли назначить холод или добавки по SNP UCP?
Валидированного алгоритма для температуры, длительности охлаждения или нутрицевтиков по этим вариантам нет. Популяционная ассоциация не является индивидуальным назначением.
Есть ли доказанный комплекс добавок для бежевения?
Сочетание капсаицина, берберина, EGCG/кофеина, ресвератрола и ментола не валидировано как единый клинический протокол. Механистические опыты и пищевое происхождение не устанавливают эффективность и безопасность смеси.