BSH и желчные кислоты: от микробной деконъюгации к рецепторам и клинике
Как BSH разрывает конъюгаты желчных кислот, чем от неё отличается bai-зависимое образование DCA и LCA и где заканчиваются данные по FXR, TGR5, диарее и ингибиторам.
Название «гидролаза желчных солей» легко принять за название фермента, который производит дезоксихолевую и литохолевую кислоты. На деле бактериальная BSH разрывает амидную связь между желчной кислотой и глицином или таурином. Удаление 7α-гидроксильной группы стероидного ядра — другая, многореакционная работа редких бактерий с генами bai. Свободная желчная кислота после BSH может стать субстратом этого пути, пройти эпимеризацию, всосаться или покинуть организм. Какая ветвь преобладает, определяется не одним геном bsh, а хозяином, микробным сообществом, доступностью субстрата и местом реакции.
Это нарративный обзор исследований энзимологии, микробной генетики, физиологии рецепторов и клинических состояний. 9 октября 2026 года адресно сверены первичные работы по структуре BSH, её распространению, ингибиторам, bai-зависимому образованию вторичных кислот, колонизационной резистентности и испытаниям при желчнокислотной диарее. Обзор не основан на сплошном поиске или формальной оценке риска смещения; GRADE и внешнее рецензирование не выполнялись. Результаты для очищенного фермента, гнотобиотической мыши, здорового человека и пациента с диареей ниже разделены: между ними нет автоматического перехода.
Пул хозяина: синтез, конъюгация и возврат
У человека основные первичные кислоты — холевая (CA; гидроксилы 3α, 7α и 12α) и хенодезоксихолевая (CDCA; 3α и 7α). Печёночный классический путь начинается с CYP7A1 в эндоплазматическом ретикулуме: холестерин превращается в 7α-гидроксихолестерин, затем HSD3B7 формирует 7α-гидрокси-4-холестен-3-он, обозначаемый C4. CYP8B1 определяет включение 12α-гидроксила и тем самым сдвигает образование к CA; без этого шага относительная доля CDCA выше. Альтернативный путь начинается с окисления боковой цепи CYP27A1 в митохондрии и включает CYP7B1. Это сеть компартментов и регуляторов, а не прямое «превращение холестерина в DCA» печенью. Фекальная потеря желчных кислот поддерживает новый синтез из холестерина, но фиксированная доля каждого пути и универсальное соотношение CA:CDCA для любого человека некорректны.
До секреции печень активирует карбоксильную группу кислоты с помощью SLC27A5/BACS, затрачивая ATP, и BAAT переносит ацильный остаток на глицин либо таурин. Это амидная конъюгация, а не сульфатирование. Для холевой кислоты две суммарные стадии можно записать так:
Для таурина продуктом будет таурохолат (TCA), для CDCA — GCDCA или TCDCA. Карбоксильная группа глицинового конъюгата и сульфонат тауринового в кишечной среде хорошо ионизированы. Их амфипатическая поверхность обеспечивает смешанные мицеллы с фосфатидилхолином и продуктами липолиза, необходимые для переноса липидов к слизистой. Растворимость, критическая концентрация мицеллообразования и повреждение мембран зависят от pH, соли, фосфолипидов и состава смеси. Нельзя перенести одно число CMC очищенной свободной кислоты на содержимое кишечника или считать любой гидрофобный метаболит «токсином» при любой концентрации.
BSEP/ABCB11 выносит конъюгированные соли через каналикулярную мембрану гепатоцита с затратой ATP. MDR3/ABCB4 обеспечивает появление фосфатидилхолина в желчи, ABCG5/ABCG8 участвует в выделении холестерина. После еды соли поступают в тонкую кишку и затем преимущественно возвращаются в терминальном отделе подвздошной кишки: апикальный ASBT/SLC10A2 использует градиент Na⁺, FABP6/IBABP связывает их в энтероците, базолатеральный OSTα–OSTβ передаёт в портальную кровь. NTCP/SLC10A1 и OATP обеспечивают печёночный захват различных конъюгированных и неконъюгированных форм. Вернувшиеся кислоты могут снова конъюгироваться. Количество, достигшее ободочной кишки, определяется секрецией, временем транзита, функцией подвздошной кишки и микробными превращениями; «95%» — ориентир для нормальной циркуляции, а не неизменная доля у больного после резекции.
В здоровом цикле относительно небольшой пул проходит через кишечник многократно за сутки. Поэтому масса желчных кислот, секретированная после нескольких приёмов пищи, не равна размеру самого пула и не равна количеству, выделенному с калом. Такое различие существенно для трактовки «усиленной BSH»: деконъюгация может сместить место всасывания, изменить рецепторный сигнал и скорость потери, но арифметика между тремя массами не выводится из одного фекального анализа. При заболевании терминальной подвздошной кишки или её резекции нарушается преимущественный активный захват конъюгатов, а свободные кислоты ещё могут пассивно всасываться в других отделах. Химическое превращение и транспорт создают разные виды экспозиции для тонкой и толстой кишки.
| Узел | Реакция или перенос | Что меняет вывод о BSH |
|---|---|---|
| Печень: CYP7A1/CYP8B1 и CYP27A1 | Образование CA и CDCA из холестерина | Состав субстрата зависит от синтеза и обратной связи |
| Печень: BACS и BAAT | Конъюгация с глицином/таурином | Создаёт амидную связь, которую способна разорвать BSH |
| Желчь и тонкая кишка | BSEP, MDR3, мицеллы, ASBT | Определяет доступность солей микробам и хозяину |
| Подвздошная кишка и печень | OSTα/β, NTCP, OATP | Возвращают кислоты в цикл, не измеряя микробную BSH |
| Ободочная кишка | BSH, HSDH, bai, пассивное всасывание | Разные ферменты дают разные продукты и сигналы |
Что именно делает бактериальная BSH
BSH, или холоилглицин-гидролаза (EC 3.5.1.24), принадлежит к N-концевым нуклеофильным амидогидролазам. В изученной структуре фермента Clostridium perfringens белок образует тетрамер; активный центр ориентирует стероидную часть и амидную связь субстрата. Нумерация каталитического N-концевого Cys зависит от обработки инициаторного метионина, поэтому Cys1 и Cys2 в разных описаниях могут обозначать функционально тот же остаток. Его тиол атакует карбонил амидной связи. После тетраэдрического промежуточного состояния уходит глицин или таурин, остаётся ацил-фермент; вода гидролизует тиоэфир и освобождает кислоту. Суммарная реакция не отщепляет гидроксил с кольца:
Структурный опыт с C. perfringens показал узнавание стероидной и аминокислотной частей; он не устанавливает один набор и для всех BSH. Изоферменты разных штаммов предпочитают различные комбинации стероидного ядра, глицина и таурина. Например, очищенная BSH Bacteroides thetaiotaomicron в биохимическом исследовании расщепляла TUDCA, но не TCA; обобщение «каждая Bacteroides-BSH удаляет таурин быстрее» было бы ошибкой. Числа измеряют при указанном pH, температуре, субстрате и методе обнаружения свободной аминокислоты; помогает сравнивать ферменты только при сопоставимых условиях. Нельзя трактовать количество копий bsh в кале как измерение скорости гидролиза каждой желчной соли в подвздошной кишке.
Кинетическая постановка обычно включает очищенный рекомбинантный белок, заданную концентрацию одного конъюгата и время отбора проб, когда скорость ещё близка к начальной. Нингидриновый тест обнаруживает высвобождённую аминокислоту, а хроматография с масс-спектрометрией может различить исходную и свободную желчную кислоту. Оба метода требуют контролей: свободный глицин уже присутствует в бактериальной среде, некоторые изомеры плохо разделяются без стандарта, а падение субстрата может отражать адсорбцию или дальнейшую трансформацию. В кишечнике параллельно присутствуют несколько конкурирующих солей в миллимолярном диапазоне, поэтому скорость гидролиза одного субстрата по Михаэлису—Ментену не описывает всю смесь. Состояние активной доли белка, обработка N-конца, концентрация желчных кислот и доступность воды определяют, можно ли переносить лабораторную активность на содержимое кишки.
Гены с функцией BSH обнаруживаются в разных бактериальных линиях; функциональная метагеномика Jones и коллег показала широкую распространённость и избыточность, а также роль BSH в переносимости желчи отдельными бактериями. Однако гомологичный ген без опыта на конкретном субстрате не доказывает активность, а свойство штамма не переносится на целый род Lactobacillus, Bifidobacterium или Bacteroides. Место фермента — внутри клетки, у поверхности или после выхода белка — меняет доступность солей. Так же различаются присутствие гена, транскрипт, активный белок и итоговый профиль кислот. Произвольные проценты «BSH у 80% бактерий» и единая четырёхтипная шкала субстратной избирательности не подтверждают функциональное состояние конкретного человека.
Деконъюгация может помогать микробу переносить желчь, но знак эффекта зависит от химии среды: свободная кислота в одном pH может легче осаждаться, а в другом — проникать в мембраны и быть более токсичной. Освобождённый таурин может питать другие организмы, однако его появление не означает, что каждый BSH-положительный штамм сам использует таурин как акцептор электронов. Микробное сообщество, слизь, желчные кислоты хозяина и диета совместно определяют результат. Простой вывод «высокая BSH всегда защищает кишечник» столь же ошибочен, как «BSH всегда создаёт токсин».
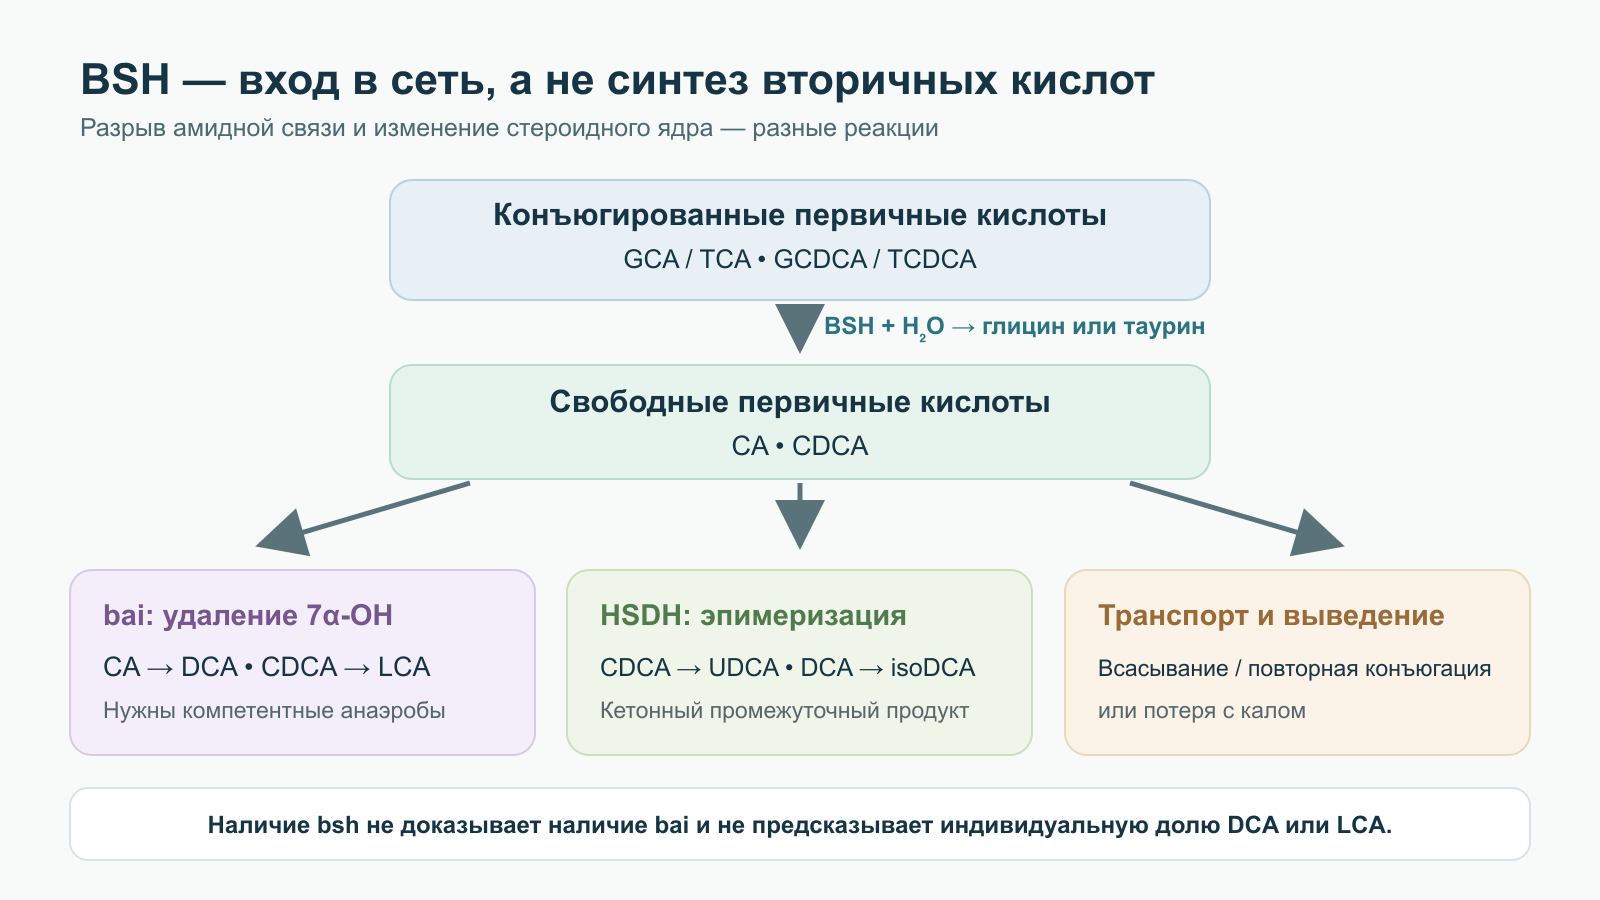
Деконъюгация открывает несколько микробных дорог
Свободные CA и CDCA доступны бактериям, выполняющим 7α-дегидроксилирование, но эта возможность не равна обязательному превращению. Узкий набор анаэробов с функциональными генами bai, в том числе изученный Clostridium scindens, проводит окислительные, дегидратационные и восстановительные этапы. После транспорта свободной кислоты, активации КоА-лигазой BaiB и изменения 3α-гидроксила BaiA путь включает образование сопряжённого ненасыщенного интермедиата и удаление 7α-OH при участии дегидратазы BaiE. Дальнейшие редуктазы и перенос КоА возвращают насыщенную структуру. Конкретный порядок интермедиатов и функции отдельных Bai-белков различают по организму и эксперименту; клинический анализ кала не показывает каждый шаг. Суммарная химическая запись удобнее подробной неподтверждённой стрелочной схемы:
DCA теряет 7α-гидроксил CA, но сохраняет 12α-OH; LCA образуется из CDCA и сохраняет только 3α-OH. Оба соединения называют вторичными желчными кислотами. Если bai-носителя нет или условия роста не подходят, наличие BSH лишь создаёт свободные первичные кислоты. Даже при обоих генетических наборах важны время транзита, количество субстрата, pH, кислород, конкурирующие бактерии и всасывание. Поэтому «ингибирование BSH полностью выключает DCA» и «малая доля bai-бактерий почти полностью перерабатывает весь пул» — не универсальные физиологические законы.
Гидроксистероиддегидрогеназы (HSDH) ведут другие ветви. Пара 7α-HSDH и 7β-HSDH может через 7-оксо-промежуточное вещество инвертировать конфигурацию гидроксила CDCA и дать урсодезоксихолевую кислоту (UDCA). Пара 3α/3β-HSDH создаёт 3β-эпимеры, например isoDCA. В работе Devlin и Fischbach путь образования isoDCA у Ruminococcus gnavus и других организмов менял действие DCA на рост Bacteroides в эксперименте. Опыты с отдельными метаболитами также обнаружили влияние на дифференцировку T-клеток; это не значит, что весь пул вторичных кислот «противовоспалителен» и что штамм с HSDH лечит колит.
Для HSDH принципиальны окисленный и восстановленный кофакторы NAD(P)⁺/NAD(P)H, направление реакции и расположение гидроксила. Удаление атома кислорода через bai и инверсия α→β через кетонный промежуточный продукт имеют разные атомные балансы. Нельзя назвать UDCA «гидрофильным продуктом BSH»: BSH может освободить субстрат, но стереоинверсию исполняют другие ферменты. Аналогично isoDCA — не синоним меньшего общего количества DCA: часть исходной молекулы сменила конфигурацию гидроксила и может иначе связываться с бактерией или рецептором.
| Исходный субстрат | Ферментный шаг | Продукт | Важное ограничение |
|---|---|---|---|
| GCA или TCA | BSH: гидролиз амидной связи | CA + глицин/таурин | CA остаётся первичной кислотой |
| GCDCA или TCDCA | BSH | CDCA + глицин/таурин | BSH не образует LCA напрямую |
| Свободная CA | bai-каскад, 7α-дегидроксилирование | DCA | Нужен компетентный штамм и подходящая среда |
| Свободная CDCA | bai-каскад | LCA | Пул LCA дополнительно зависит от всасывания и детоксикации |
| CDCA | 7α/7β-HSDH через 7-оксо-форму | UDCA | Эпимеризация не равна дегидроксилированию |
| DCA | 3α/3β-HSDH через 3-оксо-форму | isoDCA | Изомер и DCA могут по-разному действовать на бактерии |
У свободных кислот и их конъюгатов меняются заряд, растворимость и способность связываться с кальцием или смешанными мицеллами. Однако простая схема «низкий pH полностью осаждает DCA с кальцием» игнорирует реальные концентрации, ионный состав, пищевой жир и неоднородность содержимого кишки. Равновесие растворённой и связанной фракций можно исследовать, но нельзя из него вывести индивидуальный риск повреждения слизистой по одному анализу pH стула.
От молекулы к сигналу: FXR, TGR5 и защитные ответы
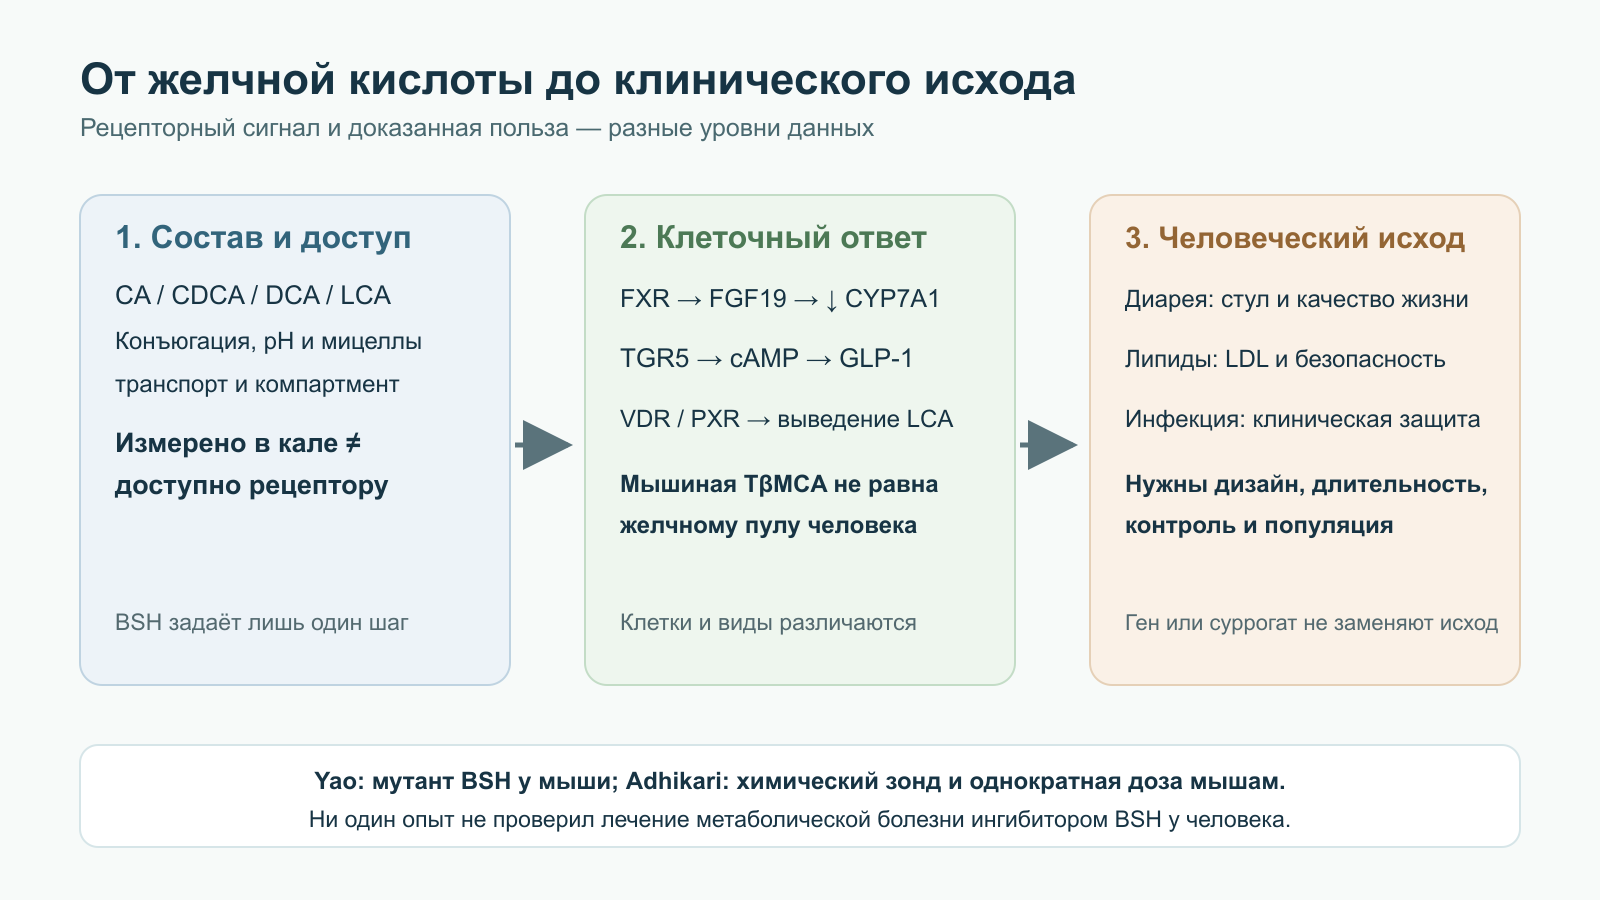
Желчные кислоты связывают не только липиды, но и рецепторы. FXR/NR1H4 — ядерный транскрипционный фактор в кишечнике и печени. Лиганд меняет его взаимодействие с RXR, коактиваторами и элементами ответа на ДНК. CDCA — сильный природный агонист в ряде клеточных систем; сила ответа иных кислот зависит от вида, конъюгации, транспорта через мембрану и тестовой системы. По одному списку нельзя предсказать, что при повышении DCA весь организм «переключится» с FXR на TGR5: оба сигнала возможны одновременно в разных клетках и концентрациях.
В подвздошном энтероците FXR стимулирует образование FGF19 у человека (Fgf15 у мыши). Портальный FGF19 через комплекс FGFR4/β-Klotho в печени подавляет транскрипцию CYP7A1 и новый синтез кислот. Печёночный FXR также влияет на экспорт, конъюгацию и регулятор SHP/NR0B2; изменение CYP7A1 не следует приписывать одной-единственной ветви. Если терминальная кишка повреждена или FGF19 недостаточен, печень может производить избыток кислот, которые достигают толстой кишки. Этот механизм важен для желчнокислотной диареи. В небольшом исследовании Walters 25 мг обетихолевой кислоты ежедневно две недели повышали FGF19 и снижали C4 у 10 пациентов с первичной желчнокислотной диареей, одновременно улучшив некоторые симптомы; ещё были 10 пациентов со вторичной диареей и 8 с идиопатической. Открытый короткий опыт без плацебо не доказывает, что любая стимуляция FXR является готовым универсальным лечением.
TGR5/GPBAR1 — мембранный рецептор, сопряжённый с . Его активация повышает cAMP, запускает PKA и другие эффекторные процессы. DCA и LCA могут сильно активировать TGR5 в модельных системах. В энтероэндокринных L-клетках это связывают с высвобождением GLP-1; в макрофагах описаны эффекты на воспалительные сигналы, включая NLRP3. Работы по GPBAR1 демонстрируют одновременно метаболический и иммунный потенциал, но увеличение одного метаболита в кале не измеряет рецепторную занятость на базолатеральной мембране L-клетки. GLP-2, восстановление кишечных ворсинок и профилактику диабета нельзя считать неизбежной цепью от BSH.
В мышиных опытах Watanabe желчные кислоты активировали TGR5–cAMP–DIO2: дейодиназа превращала T4 в T3, увеличивая термогенный ответ тканей. Важны модель, доступность кислоты и видоспецифичная бурая жировая ткань. Из этого не следует, что пищевая добавка с BSH заметно повысит расход энергии или экспрессию UCP1 у человека. Литохолевая кислота также может активировать VDR и PXR, связанные с ферментами конъюгации и выведением желчных кислот. Сульфатирование LCA и другие пути снижают экспозицию свободной гидрофобной молекулы; реальные потоки отличаются между кишечником, печенью и кровью.
Мыши особенно важны для механистических опытов с FXR, но их желчный пул богат мурихолевыми кислотами, не являющимися главными кислотами человека. В работе Sayin тауро-α- и тауро-β-мурихолаты мыши действовали как антагонисты FXR; микробные превращения меняли илеальный Fgf15 и печёночный Cyp7a1. Переносить этот механизм как «TUDCA — человеческий аналог TβMCA и обязательный антагонист FXR» нельзя. BSH штамма B. thetaiotaomicron, изученная Yao, была избирательной к некоторым субстратам, а её генетическое выключение у колонизированных мышей меняло желчный профиль и массу тела. Это опыт с мутантом и животной моделью, а не клиническое испытание препарата-ингибитора BSH у людей.
| Рецептор или путь | Где действует | Наблюдаемая связь | Граница переноса |
|---|---|---|---|
| Илеальный FXR → FGF19 | Энтероцит → портальная кровь → печень | Торможение CYP7A1, обратная связь синтеза | Фекальная BSH не измеряет FGF19 или индивидуальную обратную связь |
| Печёночный FXR/SHP | Гепатоцит | Регуляция синтеза, транспорта и защиты от накопления | Не сводится к одной кислоте или одному гену |
| TGR5 → cAMP | L-клетки, макрофаги и другие ткани | GLP-1 и клеточные иммунные эффекты в опытах | Не доказывает похудение или лечение воспаления BSH-пробиотиком |
| TGR5–DIO2 | Мышиные метаболические модели | Местная активация T3 и термогенез | Человеческий клинический исход не установлен |
| VDR/PXR | Кишечник и печень | Ответ на LCA, биотрансформация и выведение | Сигнал защиты не делает высокую экспозицию безвредной |
Почему «вторичная кислота» не синоним яда
Удаление 7α-гидроксила обычно увеличивает гидрофобность: свободные DCA и особенно LCA способны нарушать мембраны и внутриклеточные органеллы при достаточной доступной концентрации. В культуре клеток DCA вызывала митохондриальный окислительный стресс, изменения NF-κB, апоптоз или пролиферативные сигналы в зависимости от линии и дозы. Эксперименты с β-катенином и другими путями дают механизм для исследования, но культура опухолевых клеток не измеряет безопасную человеческую порцию жира и не доказывает независимую причинную роль фекальной DCA в колоректальном раке.
Доза и форма определяют воздействие. Нужно знать, измерена ли свободная или конъюгированная кислота, растворена ли она в водной фазе, образует ли смешанные мицеллы, связана ли с кальцием и сколько времени контактирует с эпителием. После всасывания печень вновь конъюгирует часть DCA; LCA может сульфатироваться и выводиться. Отсюда нельзя вывести «универсальный порог лизиса 0,2 мМ» для живой кишки: такая цифра из модельной среды не учитывает защиту слизи, фосфолипидов и динамическую потерю с калом. Одновременно физиологическое присутствие DCA не исключает вреда при иной экспозиции или восприимчивости тканей.
Экспериментальные работы связывают DCA с реактивными формами кислорода, митохондриальным потенциалом, каспазами, β-катенином, EGFR/MAPK и NF-κB. Эти события не обязаны идти единым линейным «путём к раку»: в одних условиях клетка гибнет, в других выживает и меняет пролиферацию. Эпидемиологическую ассоциацию вторичных кислот с рационом или неоплазией трудно отделить от состава диеты, транзита, воспаления, микробного сообщества и причинно обратных эффектов. Проверенное наблюдение о метаболите, механистическая правдоподобность и доказательство предотвращения рака конкретным ингибитором BSH — три разных уровня данных.
Есть и противоположные эффекты вторичных кислот. В культурах C. difficile таурохолат с глицином запускал прорастание спор; DCA могла также стимулировать прорастание, но тормозила дальнейший вегетативный рост. В работе Buffie потеря 7α-дегидроксилирующего C. scindens была связана с восприимчивостью после антибиотиков, а введение бактерии в экспериментальной модели усиливало защиту при участии вторичных кислот. Следовательно, формула «убрать всю DCA = оздоровить микробиом» способна упустить защиту от инфекции. Это не основание самостоятельно заселять человека C. scindens или лечить инфекцию капсулой BSH; модель колонизационной резистентности не заменяет клинические испытания.
При желчнокислотной диарее ключевой вопрос часто иной: слишком много желчных кислот достигает толстой кишки из-за болезни/резекции терминальной подвздошной кишки либо недостаточной обратной связи FGF19 и повышенного синтеза. Секреция воды, ускорение транзита и рецепторные эффекты могут участвовать в симптомах; знак эффекта конкретной DCA не устанавливает весь диагноз. Обозначение «мальабсорбция» не покрывает полностью первичную форму с чрезмерным синтезом. После холецистэктомии, при некоторых кишечных болезнях и лекарствах клинический контекст иной. По профилю BSH невозможно автоматически назначить «тип 1–3» без обследования.
Свободная CDCA и DCA в ободочной кишке могут усиливать секрецию и моторику, но и конъюгированные соли при поступлении в избытке имеют значение. Скорость выведения меняется с объёмом стула: ускоренный транзит сам меняет время, оставленное BSH и bai, а не только возникает как следствие кислот. Это двусторонняя причинность. Высокий фекальный уровень одной кислоты может отражать её повышенную доставку, низкое всасывание или меньшую дальнейшую конверсию. Клиническая оценка начинается с характера хронической диареи и причин поражения подвздошной кишки, а не с назначения антимикробного воздействия против «избыточной BSH».
Связь желчных кислот со стеатогепатитом и сосудистым барьером кишки изучают в людских профилях и моделях. Данные о клеточном эндотелии, PV-1, цитокинах и LCA не дают установленной для человека цепи «BSH → дырявый сосудистый барьер → MASH/метастазы». В ткани и крови кислотная экспозиция отличается от фекальной; одно снижение bai-генов в кале не является профилактикой фиброза печени. Именно поэтому патологию печени и инфекцию нельзя оценивать одним универсальным показателем «токсичных вторичных желчных кислот».
Вмешательства: где есть человеческий исход
Связывание желчных кислот. Холестирамин и колесевелам — неабсорбируемые полимерные секвестранты: положительно заряженные группы связывают анионы желчных кислот и повышают их фекальную потерю. Это действует на пул хозяина, а не специфически на активный центр BSH. При желчнокислотной диарее они могут снижать доступную колоноцитам кислотную нагрузку, но эффект зависит от переносимости, дозы и правильного диагноза. В открытом 10-дневном опыте Camilleri при диарейном варианте СРК с мальабсорбцией использовали колесевелам 1875 мг дважды в день и измеряли 48-часовую экскрецию кислот, C4 и стул. Отсутствие ослеплённого контроля не допускает приписывать наблюдаемые изменения всем пациентам; даже установленная эффективность секвестранта не доказывает, что проблема начиналась с избыточной BSH. Смолы могут мешать всасыванию других лекарств и иногда вызывать запор; схему и интервалы приёма определяют по препарату и состоянию.
UDCA и TUDCA. Урсодезоксихолевая кислота — 7β-эпимер CDCA. Лекарственная UDCA применяется при конкретных холестатических показаниях, где дозы порядка 13–15 мг/кг/сут назначают в зависимости от диагноза и препарата; это не общая доза для «детоксикации DCA» у здоровых. Эксперименты с UDCA/TUDCA описывают изменения апоптоза, митохондрий и стресса эндоплазматического ретикулума, но клеточная защита не означает лечение любой желчнокислотной диареи, MASH или колоректального риска. UDCA сама включается в циркулирующий пул, конъюгируется и может изменяться микробами. Терапия требует отдельного показания и контроля, особенно при непроходимости желчных путей или иной серьёзной патологии печени.
BSH-положительные пробиотики. Штамм, способный гидролизовать GCA на чашке, не обязательно удержится в тонкой кишке, изменит фекальную потерю желчных кислот, снизит LDL и улучшит клинический исход. В опытах с пробиотиками часто сосуществуют BSH, связывание холестерина, изменения питания и другие свойства штамма. Нельзя вывести одинаковый эффект из названия вида и назначать «гиперактивную BSH» как универсальную гипохолестеринемическую терапию. Если оценивается конкретный препарат, важны точный штамм, жизнеспособная доза, длительность, исходный LDL, контрольная группа и измеренный клинический результат. Подробнее о границе между свойством штамма и доказанным исходом — в материале о пробиотиках и безопасности.
Экспериментальное ингибирование BSH. Yao и коллеги изменяли ген BSH у B. thetaiotaomicron в колонизированной мышиной модели и наблюдали изменения желчного профиля и метаболических показателей; это не фармакологическое ингибирование. Adhikari и коллеги позднее разработали ковалентный химический зонд с фторметилкетоновой группой, действующий на каталитический Cys. Одна доза мышам уменьшала фекальную активность BSH и долю деконъюгированных кислот, но публикация не показывает предотвращение ожирения, стеатоза или диабета у людей. Влияние длительного угнетения на устойчивость к патогенам, микробное сообщество и всасывание липидов требует оценки. Подавлять BSH только ради минимизации DCA было бы слишком узкой целью.
Рацион, волокна и полифенолы. В кратком человеческом сравнении David и коллег десять добровольцев получали рацион преимущественно из животных либо растительных продуктов; животный рацион менял микробные транскрипты, повышал фекальные желчные кислоты и DCA и сопровождался ростом Bilophila. Это короткая экспозиция, не измерение будущего рака и не доказательство, что всякий животный жир увеличит DCA в 3–5 раз. Растворимые пищевые волокна могут влиять на желчный пул через связывание кислот, транзит и ферментацию; результат зависит от формы и дозы. Обоснование достаточного количества пищевых волокон шире гипотезы о BSH. Берберин, куркумин и силимарин действуют на множество мишеней в экспериментальных системах; нет основания назначать их как доказанные селективные регуляторы BSH или FXR по одному фекальному отношению кислот. Дополнительная информация о фармакологии берберина помогает отделить эти механизмы от клинических обещаний.
| Воздействие или исследование | Популяция и длительность | Что наблюдали | Чего не доказали |
|---|---|---|---|
| Walters: обетихолевая кислота 25 мг/сут | 10 с первичной желчнокислотной диареей, 10 со вторичной, 8 с иной; две недели, открыто | FGF19 вырос, C4 уменьшился; у первичной группы некоторые показатели стула улучшились | Рандомизированную долгосрочную пользу всем пациентам или эффект через BSH |
| Camilleri: колесевелам 1875 мг дважды/сут | Пациенты с диарейным СРК и мальабсорбцией; 10 дней, открыто | Менялись 48-часовые фекальные кислоты, C4 и показатели стула | Универсальную диагностическую или лечебную роль фекальной BSH |
| David: животный и растительный рацион | 10 добровольцев, краткие периоды | Быстро менялись микробиота, фекальные кислоты, DCA и Bilophila | Долгосрочное предотвращение рака или индивидуальную норму DCA |
| Yao: генетически изменённая BSH | Гнотобиотические мыши | Менялись состав кислот и метаболические признаки | Эффект лекарства-ингибитора у людей |
| Adhikari: ковалентный BSH-зонд | Биохимические опыты и однократное введение мышам | Снижение фекальной BSH и деконъюгированных кислот | Профилактику ожирения, MASH или инфекции у людей |
| Buffie: C. scindens | Мыши и ассоциации у госпитализированных пациентов | Вторичные кислоты сопровождали устойчивость к C. difficile | Лечение CDI отдельной бактерией у пациента |
Что измерять и какой вопрос задавать
LC–MS/MS позволяет разделить CA, CDCA, их глико- и тауроконъюгаты, DCA, LCA, UDCA, эпимеры и сульфаты. Но кровь, содержимое подвздошной кишки и 48-часовой кал отражают разные потоки. Время после еды, антибиотики, секвестранты, транзит, способ забора и аналитическая калибровка меняют результат. Отношение свободных форм к конъюгированным — лишь косвенный показатель, потому что свободная кислота может всосаться, превратиться дальше или не попасть в пробу. Отношение DCA+LCA к CA+CDCA также смешивает BSH, bai, абсорбцию и печёночную обратную связь; «>80% = онкогенный риск» не является валидированным клиническим порогом.
При подозрении на желчнокислотную диарею измеряют релевантные клинические показатели: где доступно — удержание SeHCAT, 48-часовые фекальные кислоты, сывороточный C4 натощак как суррогат синтеза и FGF19 с учётом метода. Ни один маркер не равен непосредственной активности BSH. Значение C4 зависит от времени суток, состояния печени и лекарств, поэтому одно число вроде 47 нг/мл без лабораторного контекста нельзя применять ко всем методикам и популяциям. Если стоит вопрос о заболевании печени или колоректальной патологии, решающими остаются соответствующие клинические алгоритмы, а не домашний «индекс дегидроксилирования».
Практический вывод из этой биохимии не является призывом максимально усилить или подавить BSH. Нужно указать, какая кислота, в каком компартменте и концентрации меняется, чем это измерено и какой человеческий исход действительно показан. BSH открывает путь от конъюгатов к свободным кислотам; bai и HSDH создают другие молекулы; рецепторы и транспортёры хозяина определяют ещё один слой ответа. Сохранение этих границ делает желчнокислотный профиль полезным исследовательским инструментом, не превращая его в самостоятельный диагноз или универсальную нутрицевтическую схему.
Частые вопросы
BSH непосредственно образует дезоксихолевую и литохолевую кислоты?
Нет. BSH отщепляет глицин или таурин от конъюгата. Для превращения свободной CA в DCA и CDCA в LCA нужен отдельный бактериальный 7α-дегидроксилирующий путь bai.
Высокая активность BSH всегда вредна?
Нет. Деконъюгация может менять растворимость, всасывание, рецепторные сигналы и питание микробов в разных направлениях. Итог зависит от остальных ферментов и состояния хозяина.
Что показывают гены bsh в анализе кала?
Они указывают на потенциальную способность микробов, но не измеряют активный белок, субстратную избирательность, локальную скорость реакции или клинический исход.
Можно ли по фекальной DCA оценить риск рака?
Отдельная концентрация DCA не является валидированным индивидуальным онкологическим порогом. Важны экспозиция ткани, состав пула, диета, транзит, воспаление и обычная клиническая оценка риска.
Чем объясняется желчнокислотная диарея?
Избыточная доставка кислот в толстую кишку может следовать за поражением подвздошной кишки или недостаточной обратной связью FGF19 и повышенным синтезом. BSH не является единственным или достаточным объяснением.
Ингибиторы BSH уже лечат ожирение или стеатогепатит?
Нет. Генетические и химические опыты у мышей показывают возможность изменить пул кислот, но не устанавливают эффективность и безопасность такого лечения у людей.
Источники
- Hofmann A. F. The continuing importance of bile acids in liver and intestinal disease. Arch Intern Med. 1999;159(22):2647-2658.
- Ridlon J. M., Kang D. J., Hylemon P. B. Bile salt biotransformations by human intestinal bacteria. J Lipid Res. 2006;47(2):241-259.
- Begley M., Gahan C. G., Hill C. The interaction between bacteria and bile. FEMS Microbiol Rev. 2005;29(4):625-651.
- Jones BV et al. Functional and comparative metagenomic analysis of bile salt hydrolase activity in the human gut microbiome. Proc Natl Acad Sci U S A. 2008;105(36):13580-13585.
- Dawson P. A., Lan T., Rao A. Bile acid transporters. J Lipid Res. 2009;50(12):2340-2357.
- Chiang J. Y. Bile acids: regulation of synthesis. J Lipid Res. 2009;50(10):1955-1966.
- Makishima M., Okamoto A. Y., Repa J. J., Tu H., Learned R. M., Luk A., Hull M. V., Lustig K. D., Mangelsdorf D. J., Shan B. Identification of a nuclear receptor for bile acids. Science. 1999;284(5418):1362-1365.
- Maruyama T., Miyamoto Y., Nakamura T., Tamai Y., Okada H., Sugiyama E., Nakamura T., Itadani H., Tanaka K. Identification of membrane-type receptor for bile acids (M-BAR). Biochem Biophys Res Commun. 2002;298(5):714-719.
- Kawamata Y., Fujii R., Hosoya M., Harada M., Yoshida H., Miwa M., Fukusumi S., Habata Y., Itoh T., Shintani Y., Hinuma S., Fujisawa Y. A G protein-coupled receptor responsive to bile acids. J Biol Chem. 2003;278(11):9435-9440.
- Inagaki T., Choi M., Moschetta A., Peng L., Cummins C. L., McDonald J. G., Luo G., Jones S. A., Goodwin B., Mangelsdorf D. J., Kliewer S. A. Fibroblast growth factor 15 functions as an enterohepatic signal to regulate bile acid homeostasis. Cell Metab. 2005;2(4):217-225.
- Ridlon J. M., Devendran S., Alves J. M., Doden H., Wolf P. G., Pereira G. V., Ly L., Wang S., Gaskins H. R. The 'in vivo lifestyle' of bile acid 7alpha-dehydroxylating gut bacteria. Gut Microbes. 2020;11(6):1604-1624.
- Rossocha M et al. Conjugated bile acid hydrolase is a tetrameric N-terminal thiol hydrolase with specific recognition of its cholyl but not of its tauryl product. Biochemistry. 2005;44(15):5739-5748.
- Devlin AS, Fischbach MA. A biosynthetic pathway for a prominent class of microbiota-derived bile acids. Nat Chem Biol. 2015;11(9):685-690.
- Buffie CG et al. Precision microbiome reconstitution restores bile acid mediated resistance to Clostridium difficile. Nature. 2015;517(7533):205-208.
- Sorg J. A., Sonenshein A. L. Bile salts and glycine as cogerminants for Clostridium difficile spores. J Bacteriol. 2008;190(7):2505-2512.
- Thomas C., Gioiello A., Noriega L., Strehle A., Oury J., Rizzo G., Macchiarulo A., Yamamoto H., Mataki C., Pruzanski M., Pellicciari R., Auwerx J., Schoonjans K. TGR5-mediated bile acid sensing controls glucose homeostasis. Cell Metab. 2009;10(3):167-177.
- Watanabe M., Houten S. M., Mataki C., Christoffolete M. A., Kim B. W., Sato H., Messaddeq N., Harney J. W., Ezaki O., Kodama T., Schoonjans K., Bianco A. C., Auwerx J. Bile acids induce energy expenditure by promoting intracellular thyroid hormone activation. Nature. 2006;439(7075):484-489.
- Guo C., Xie S., Chi Z., Zhang J., Liu Y., Zhang L., Zheng M., Zhang X., Xia J., Ke H., Lu L., Wang D. Bile acids control inflammation by detecting the presence of bacteria through the TGR5-NLRP3 inflammasome axis. Immunity. 2016;45(4):802-816.
- Makishima M., Lu T. T., Xie W., Whitfield G. K., Domoto H., Evans R. M., Haussler M. R., Mangelsdorf D. J. Vitamin D receptor as an intestinal bile acid sensor. Science. 2002;296(5571):1313-1316.
- Staudinger JL et al. The nuclear receptor PXR is a lithocholic acid sensor that protects against liver toxicity. Proc Natl Acad Sci U S A. 2001;98(6):3369-3374.
- Payne C. M., Weber C., Crowley-Skillicorn C., Dvorak K., Bernstein H., Bernstein C., Holubec H., Sampliner R., Martinez J. Deoxycholate induces mitochondrial oxidative stress and activates NF-kappaB through calcineurin in human colon cells. Carcinogenesis. 2007;28(1):215-222.
- Pai R., Tarnawski A. S., Tran T. Deoxycholic acid activates beta-catenin signaling pathway and promotes colon cancer cell growth and invasiveness. Mol Biol Cell. 2004;15(7):3527-3536.
- Camilleri M. Advances in understanding of bile acid diarrhea. Expert Rev Gastroenterol Hepatol. 2014;8(1):49-61.
- Walters J. R., Johnston I. M., Nolan J. D., Vassie C., Paveletz M. E., Ellis C. E. The response of patients with bile acid diarrhoea to the farnesoid X receptor agonist obeticholic acid. Aliment Pharmacol Ther. 2015;41(1):54-64.
- Rodrigues C. M., Fan G., Wong P. Y., Kren B. T., Steer C. J. Ursodeoxycholic acid may inhibit deoxycholic acid-induced apoptosis by modulating mitochondrial transmembrane potential and reactive oxygen species production. Mol Med. 1998;4(3):165-178.
- Ozcan U., Yilmaz E., Ozcan L., Furuhashi M., Vaillancourt E., Smith R. O., Görgün C. Z., Hotamisligil G. S. Chemical chaperones reduce ER stress and restore glucose homeostasis in a mouse model of type 2 diabetes. Science. 2006;313(5790):1137-1140.
- David L. A., Maurice C. F., Carmody R. N., Gootenberg D. B., Button J. E., Wolfe B. E., Ling A. V., Devlin A. S., Varma Y., Fischbach M. A., Biddinger S. B., Dutton R. J., Turnbaugh P. J. Diet rapidly and reproducibly alters the human gut microbiome. Nature. 2014;505(7484):559-563.
- Sayin S. I., Wahlström A., Felin J., Jäntti S., Marschall H. U., Bamberg K., Angelin B., Hyötyläinen T., Orešič M., Bäckhed F. Gut microbiota regulates bile acid metabolism by reducing the levels of tauro-beta-muricholic acid, a naturally occurring FXR antagonist. Cell Metab. 2013;17(2):225-235.
- Yao L et al. A selective gut bacterial bile salt hydrolase alters host metabolism. eLife. 2018;7:e37182.
- Adhikari AA et al. Development of a covalent inhibitor of gut bacterial bile salt hydrolases. Nat Chem Biol. 2020;16:318-326.
- Song X., Sun X., Oh S. F., Wu M., Zhang Y., Zheng W., Geva-Zatorsky N., Janoir C., Goursandy C., Xu G., Perez-Lopez A., Kasper D. L. Microbial bile acid metabolites modulate gut RORgamma(+) regulatory T cell homeostasis. Nature. 2020;577(7790):410-415.
- Hang S et al. Bile acid metabolites control T(H)17 and T(reg) cell differentiation. Nature. 2019;576(7785):143-148.
- Campbell C., McKenney P. T., Shen Y., Feinman R. B., Jiang Z. D., DuPont H. L., Pamer E. G., Littman D. R. Bacterial metabolism of bile acids promotes generation of peripheral regulatory T cells. Nature. 2020;581(7809):475-479.
- Mouzaki M., Wang A. Y., Bandsma R., Comelli E. M., Arendt B. M., Zhang L., Fung S., Fischer S. E., McGilvray I. D., Allard J. P. Bile acids and dysbiosis in non-alcoholic fatty liver disease. PLoS One. 2016;11(5):e0151829.
- Camilleri M et al. Effect of colesevelam on faecal bile acids and bowel functions in diarrhoea-predominant irritable bowel syndrome. Aliment Pharmacol Ther. 2015;41:438-448.