
Кишечная щелочная фосфатаза: липид A, барьер и клинические испытания
Энзимология ALPI, дефосфорилирование LPS и ATP, микробиота, регуляция и человеческие испытания: отрицательные результаты STOP-AKI и REVIVAL и границы данных при колите.
Изменено: . Изменение не подтверждает экспертную проверку.
На поверхности энтероцита кишечная щелочная фосфатаза (intestinal alkaline phosphatase, IAP; продукт гена ALPI) встречает бактериальные молекулы раньше, чем те достигнут иммунных клеток слизистой. Фермент удаляет фосфат с некоторых микробных и хозяйских субстратов, меняя условия распознавания LPS и внеклеточных нуклеотидов. Этот ясный химический механизм часто превращают в слишком широкое клиническое обещание: будто повышение активности IAP автоматически устраняет «дырявый кишечник», метаболическую эндотоксемию и даже сепсис. Для оценки такого перехода нужны три разных уровня данных — активность очищенного фермента на конкретном субстрате, эффект в организме с живым барьером и клинический исход у человека. Ниже они рассматриваются отдельно.
1. Белок ALPI на границе кишечного просвета
1.1. Четыре человеческие щелочные фосфатазы и тканевая локализация
У человека щелочные фосфатазы относятся к семейству фосфомоноэстераз EC 3.1.3.1. ALPI кодирует кишечный изофермент, особенно выраженный на щёточной каёмке дифференцированных энтероцитов тонкой кишки. ALPL кодирует тканенеспецифическую щелочную фосфатазу (TNAP), значимую для костной минерализации и обмена внеклеточного пирофосфата; ALPP — плацентарную форму, ALPPL2 — плацентарноподобную. Измеренная «общая щелочная фосфатаза» в сыворотке не является прямым измерением апикальной IAP: вклад печени, кости, плаценты и кишечника различается с возрастом и состоянием пациента. Гены и изоформы близки, но различаются распределением, устойчивостью и реакцией на ингибиторы.
Полипептид ALPI синтезируется на рибосомах шероховатого ЭПР с N-концевым сигнальным пептидом. В ЭПР и аппарате Гольджи он сворачивается, гликозилируется, образует димер и получает гликозилфосфатидилинозитольный (GPI) якорь после удаления C-концевого сигнала. Якорь помещает активные домены на наружную сторону апикальной мембраны: субстрат должен оказаться в просвете кишки или на поверхности щёточной каёмки. Гликановые цепи и липидная композиция мембраны могут менять стабильность, транспорт и время нахождения фермента на поверхности; отдельные остатки и стехиометрия гликозилирования зависят от вида и конструкции белка, поэтому их нельзя автоматически переносить с кристаллической плацентарной изоформы на человеческую IAP.
Фермент обнаруживают также в кишечном содержимом. Он может покидать поверхность вместе с мембранными частицами щёточной каёмки и после расщепления GPI-якоря. Описанные сурфактантоподобные частицы представляют собой возможный путь доставки фермента в просвет, однако скорость выделения, доля растворимой и мембранной форм и количество активности, достигающей дистальной кишки, зависят от питания, протеолиза и метода измерения. Фиксированную долю «20–30% дошло до толстой кишки» из структуры белка вывести нельзя.
1.2. Димер, металлы и каталитический цикл
Каталитически компетентная молекула — димер. У щелочных фосфатаз активный центр каждого протомера организован вокруг двух Zn²⁺ и Mg²⁺; металлы координируют фосфат, стабилизируют переходное состояние и участвуют в регенерации фермента. Консервативный каталитический серин атакует фосфор фосфомоноэфира; номер остатка зависит от изоформы и того, включён ли сигнальный пептид в нумерацию. Упрощённая суммарная реакция: R–O–PO₃²⁻ + H₂O → R–OH + Pᵢ. Она скрывает две химические стадии: сначала образуются R–OH и ковалентный фосфорил-серин, затем вода гидролизует этот интермедиат с освобождением неорганического фосфата. Катионы не расходуются стехиометрически, а задают геометрию и электростатику центра.
Таблицы ферментной активности требуют описания pH, буфера, температуры, вида IAP и формы субстрата. Пара-нитрофенилфосфат (pNPP) удобен для спектрофотометрии: p-нитрофенолат измеряют около 405 нм. Его гидролиз в щелочном буфере не равен доступности фосфатной группы липида A в агрегированном LPS. Kₘ на pNPP — концентрация модельного субстрата при половине максимальной скорости в данном опыте, а не универсальная «аффинность IAP к эндотоксину»; kcat и kcat/Kₘ также меняются с условиями. Для гидрофобного LPS существенны мицеллы, носители, ацилирование, солевой состав и способ подготовки. Приведённые в исходной рукописи точные Kₘ и kcat для human/bovine IAP без проверенного первичного протокола здесь не сохранены как физиологические константы.
IAP относительно чувствительна к L-фенилаланину; TNAP обычно оценивают с помощью иного ингибиторного профиля, включая левамизол. Эти различия помогают разложить смешанный лабораторный сигнал, но один ингибитор не даёт абсолютно специфического «истинного IAP» в кале, где присутствуют бактериальные фосфатазы, воспалительные клетки и другие ферменты. Разница видов — человеческая и бычья IAP — важна и для фармакологии: активность на pNPP и стабильность чужеродного белка не предсказывают одинаковую эффективность на LPS человека.
Важно различать экспериментальную единицу активности и клиническую дозу. Одна «единица» в ферментном анализе описывает количество продукта в стандартных условиях выбранного субстрата; она не означает, что та же скорость сохранится в кислой пище, сложной смеси желчи, липидов и бактериальных везикул. При сравнении исследований нужно проверять активность на pNPP и на нативном LPS раздельно, а также приводить отношение активности к массе белка и стабильность после прохождения желудка. Это особенно существенно при переходе от бычьего фермента к рекомбинантной химере.
2. Что именно происходит с LPS
2.1. Липид A — мишень, а не весь эндотоксин сразу
Липополисахарид наружной мембраны грамотрицательных бактерий состоит из липида A, корового олигосахарида и у многих видов O-антигенной цепи. Липид A удерживает молекулу в мембране и определяет значительную часть её TLR4-активности. «Типовой» сильный агонист, часто взятый из E. coli, имеет две глюкозаминовые единицы, фосфаты около положений 1 и 4′ и шесть ацильных цепей. Но микробные виды меняют длину, число ацилов, фосфатные и другие заместители. LPS многих кишечных комменсалов отличается от лабораторного E. coli и может быть слабым агонистом или антагонистом уже до действия IAP. Поэтому нельзя утверждать, что весь кишечный LPS одинаково опасен и одинаково «обезвреживается» одной стадией.
При доступе к клетке LPS переносится с участием LBP и CD14 к MD-2, связанному с TLR4. Геометрия липида A определяет димеризацию рецепторного комплекса и сигнал через TIR-домены. Поверхностный путь MyD88–IRAK–TRAF6–IKK активирует NF-κB; эндосомальный путь TRIF–TBK1–IRF3 способствует продукции интерферонов I типа. Этот механизм зависит от типа клетки и концентрации лиганда. У интактной слизистой эпителиальная и иммунная экспозиция ограничены слизью, полярностью рецепторов и физическими контактами; люминальный LPS не равен автоматически системной эндотоксемии.
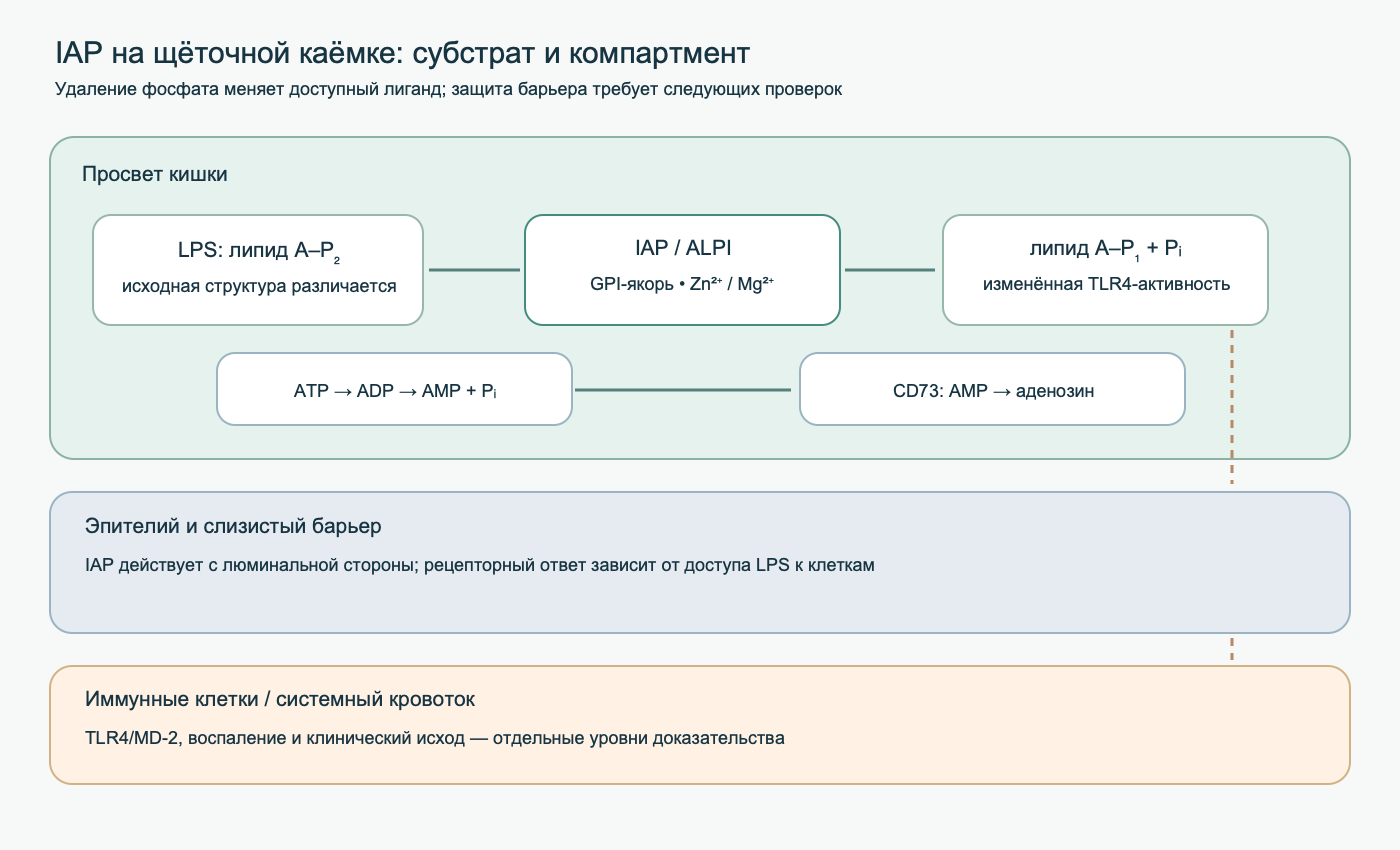
2.2. Отщепление фосфата и предел слова «детоксикация»
IAP способна гидролизовать доступные фосфомоноэфирные группы липида A: дифосфорил-липид A + H₂O → монофосфорил-липид A + Pᵢ. При дальнейшей доступности второй группы возможен дополнительный гидролиз, но скорость и продукт зависят от молекулы и условий. Удаление фосфата меняет заряд и распознавание TLR4/MD-2; ранние биохимические и животные работы показали уменьшение некоторых воспалительных эффектов обработанного LPS. Это не делает любой монофосфорилированный липид A полностью биологически инертным. Синтетические/очищенные MPLA-формы могут сохранять иммуногенность и использоваться как адъювант; их нельзя отождествлять со всеми неоднородными продуктами IAP в кишечнике. Нет общего правила о «снижении связывания ровно в 100 или 1000 раз» для всех видов LPS и клеток.
Точная запись двух последовательных стадий такова: LPS–P₂ + H₂O → LPS–P₁ + Pᵢ; затем LPS–P₁ + H₂O → LPS–P₀ + Pᵢ. Если складывать стадии, общий выход — два Pᵢ, а не два на втором шаге. Активность на LPS показана в биохимических условиях и подкреплена моделями животных, но не является прямым доказательством того, что пероральная IAP предотвращает клинический сепсис. Мембранные агрегаты, доступность каталитического центра и барьерная проницаемость могут ограничить реакцию in vivo.
2.3. eATP и другие субстраты: совпадение химии не означает совпадение сигнала
Внеклеточный ATP появляется при повреждении клеток и действует через пуринергические рецепторы; P2X7 может способствовать активации инфламмасомы в подходящем иммунном контексте. IAP гидролизует ATP→ADP→AMP с освобождением фосфата на каждой стадии. Переход AMP→аденозин также возможен при участии внеклеточных фосфатаз, особенно CD73/NT5E; приписывать весь аденозиновый выход одной IAP неверно. Аденозин действует через семейство P1-рецепторов, а ADP и AMP имеют собственные эффекты и распределение, поэтому результат определяется доступными ферментами и рецепторами в конкретном компартменте. Мышиная работа Malo и соавт. связала люминальный ATP и IAP с ростом кишечных бактерий: это отдельная функция от гидролиза липида A.
Для UDP и нуклеотидных производных возможен гидролиз фосфатных групп, но фенотип P2Y6 зависит от их локальной концентрации и конкуренции с другими эктонуклеотидазами. Утверждения, будто IAP прямо дефосфорилирует сам белок флагеллин и таким образом универсально блокирует TLR5, не подтверждены приведённой библиографией: флагеллин является белковым лигандом, его рецепторное распознавание нельзя вывести из общей фосфомоноэстеразной активности. Аналогично удаление терминального фосфата с олигонуклеотида возможно химически, но исходная рукопись не демонстрирует, что это выключает CpG-распознавание TLR9 в живой слизистой. Эти два тезиса оставлены как открытые гипотезы, а не как отдельные установленные функции IAP.
| Субстрат или путь | Реакция/событие, которое можно измерить | Следующий вывод, требующий отдельной проверки |
|---|---|---|
| Липид A в составе LPS | Потеря фосфата, изменение массы/заряда и активности на клетках TLR4 | Снижение транслокации LPS, воспаления или частоты клинической болезни |
| Люминальный ATP | Образование ADP/AMP и неорганического фосфата | Изменение P2X7-сигнала, роста микробов и исхода у пациента |
| ALPI на апикальной мембране | Белок, локализация и активность на выбранном субстрате | Сохранение плотных контактов и снижение проницаемости |
| Фекальная фосфатазная активность | Скорость гидролиза pNPP в стандартном буфере | Функция щёточной каёмки и диагноз «дефицита IAP» |
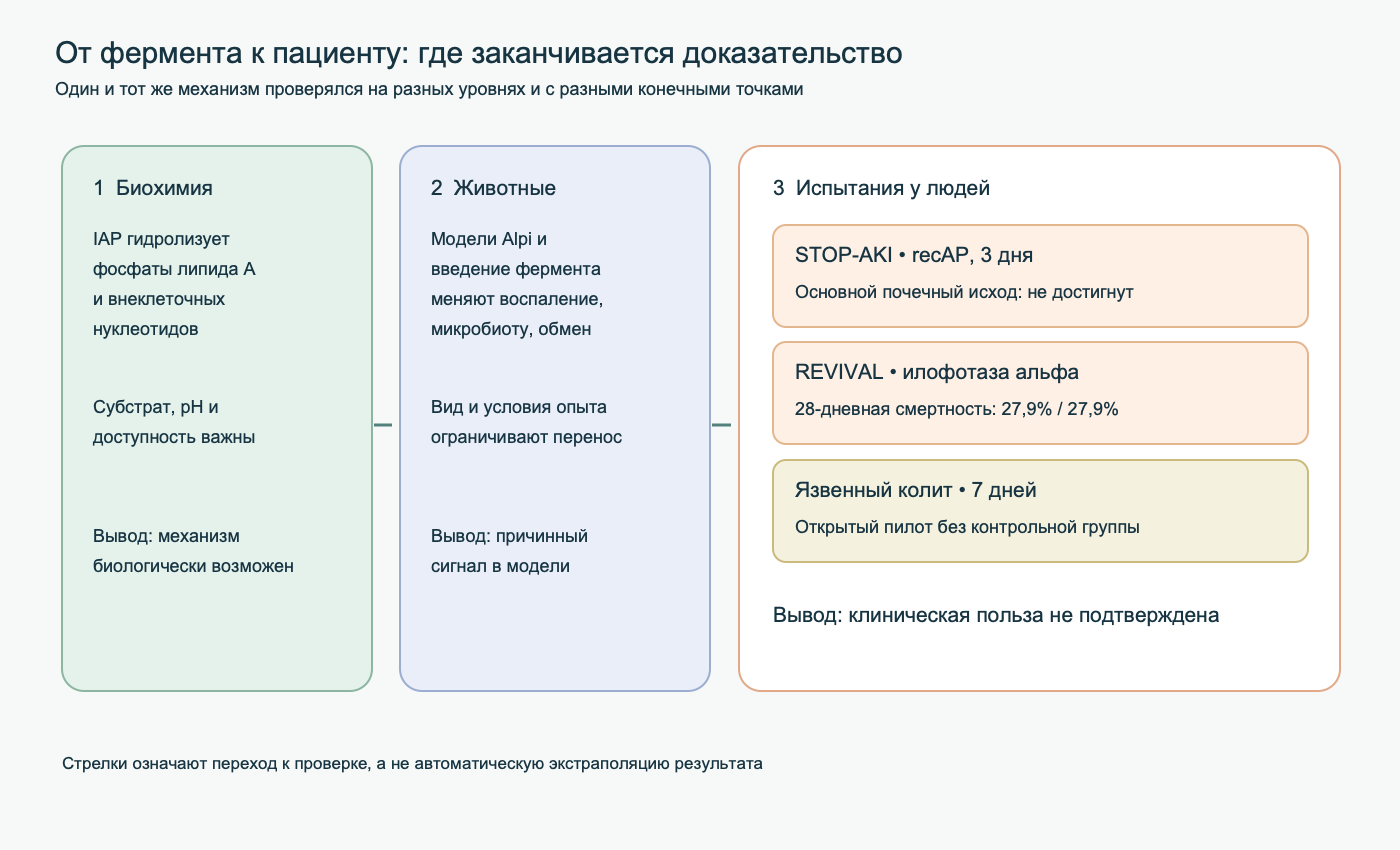
Эта последовательность защищает от двух противоположных ошибок. Отрицательное клиническое испытание recAP не отменяет доказанную каталитическую реакцию очищенного белка. Положительная реакция на липиде A, в свою очередь, не указывает без промежуточных измерений, сколько LPS пересекло конкретную слизистую и изменилось ли состояние пациента.
3. От молекулы к барьеру и микробиоте
В опытах на рыбах Bates и соавт. показали, что щелочная фосфатаза участвует в сдерживании воспалительного ответа на микробиоту. В мышиных моделях отсутствие Alpi изменяет кишечную экосистему, восприимчивость к экспериментальной инфекции и метаболические исходы; введение фермента иногда ослабляет фенотип. В таких опытах IAP действует на нескольких уровнях сразу: меняет доступность LPS, концентрацию люминального ATP и условия роста отдельных видов. Это сильнее, чем только реакция в пробирке, но мышиная микробиота, диета и иммунитет не тождественны человеческим. Нельзя считать «рост Akkermansia» или «снижение протеобактерий» обязательным универсальным ответом на IAP у каждого человека.
Плотные контакты между энтероцитами включают клаудины, окклюдин и адаптерные белки ZO; перицеллюлярный актомиозиновый пояс регулирует их проницаемость. Воспалительные медиаторы могут активировать MLCK, фосфорилировать лёгкую цепь миозина и увеличить параклеточный поток. Поскольку дефосфорилирование LPS или ATP может уменьшить входящие сигналы, IAP способна косвенно влиять на барьер в моделях воспаления. Но прямое связывание IAP с MLCK, обязательная последовательность «LPS→MLCK→разрыв клаудинов» или самостоятельное восстановление контактов у больного человека не следуют из ферментной реакции. Измерение проницаемости требует указать участок кишки, метод и воспалительный контекст.
При поступлении пищевых липидов IAP высвобождается вместе с частицами щёточной каёмки, и это связывает фермент с постпрандиальной физиологией. В исходной рукописи предложена прямая координация сборки ApoB-48-хиломикронов IAP в аппарате Гольджи. Наличие фермента во везикулах само по себе такой координации не доказывает; для неё нужны эксперименты с тканеспецифическим вмешательством и измерением сборки, секреции и липидного потока. Связь питания и IAP разумнее пока описывать через регуляцию экспрессии/секреции и возможное влияние на люминальную нагрузку LPS, чем через установленную роль фермента как обязательного фактора сборки хиломикрона.
Для микробиома важна не только таксономия, но и функция. Два образца с одинаковой относительной долей грамотрицательных бактерий могут различаться по структуре липида A, образованию везикул и доступности фосфатных групп. Относительные доли 16S-профиля не сообщают абсолютную бактериальную массу и биологическую активность LPS. Вмешательство в ALPI может также изменить питательные субстраты бактерий через гидролиз ATP, так что результат нельзя приписывать исключительно подавлению TLR4. Отсюда следует дизайн хорошего эксперимента: наряду с составом микробиоты измерять субстраты IAP, активность на них и иммунный ответ хозяина.
4. Заболевания: что говорят модели и человеческие наблюдения
4.1. Метаболическое воспаление и ось кишечник–печень
В работах Cani и соавт. мышиная диета с высоким содержанием жира меняла микробиоту и концентрацию циркулирующего LPS; инфузия LPS воспроизводила часть метаболического фенотипа. Отдельные модели Kaliannan и соавт. связали IAP с метаболическими показателями. Вместе они обосновывают биологическую гипотезу: изменённый барьер и сигналы LPS могут участвовать в воспалении жировой ткани и нарушении обмена глюкозы. Они не устанавливают, что дефицит IAP — единственная или первичная причина ожирения, инсулинорезистентности или диабета человека. «Метаболическая эндотоксемия» описывает измерительный и биологический конструкт; результат анализа зависит от теста, загрязнения образца, времени после еды и того, измеряется ли масса LPS или его биологическая активность.
Портальная кровь связывает кишечник с печенью. Клетки Купфера и другие клетки печени отвечают на микробные продукты, а хроническое воспаление может усиливать стеатоз и фиброгенез. В животных работах пероральная IAP снижала некоторые признаки жировой болезни печени, в том числе на фоне высокожировой диеты или алкоголя. Эти эффекты не доказывают профилактику перехода MASLD в MASH или цирроз у людей. В человеческом заболевании существенны обмен энергии, генетический фон, инсулинорезистентность, алкоголь, питание и лекарства; отдельный сигнал LPS не покрывает всё причинное поле. Предположение, что IAP непосредственно задаёт ось ileal FXR–FGF19 и что её дефицит обязательно вызывает желчнокислотную диарею, требует отдельной первичной демонстрации и не представлено как установленный эффект.
4.2. Воспаление кишечника и некротизирующий энтероколит
При воспалительных заболеваниях кишечника описаны изменения активности и распределения IAP, но направление может зависеть от участка, степени воспаления, потери дифференцированных энтероцитов и компенсаторной индукции. Поперечное наблюдение не отвечает, было ли снижение IAP причиной колита или его следствием. Эксперименты с экзогенной фосфатазой при химическом колите у грызунов поддерживают изучение локальной терапии. Для язвенного колита у людей пилотное исследование Lukas и соавт. было открытым, без рандомизированной контрольной группы; фермент вводили интрадуоденально семь дней. Кратковременное улучшение клинических показателей в такой схеме не отделяет действие препарата от фона лечения, естественной динамики и отбора пациентов. Исходная рукопись ошибочно называла эту работу двойным слепым плацебо-контролируемым испытанием с ректальным введением.
У недоношенных младенцев риск некротизирующего энтероколита связан с незрелостью барьера и особенностями TLR4-сигнализации. Модели Ramasamy и соавт. изучали IAP как защитный фактор, а другие исследования показывают роль амниотической жидкости и микробных сигналов. Отсюда следует направление исследований, но не готовая рекомендация добавлять фермент в смеси или проводить профилактику НЭК. Детский клинический исход — частота НЭК, операции, смертность и безопасность — нельзя заменить окраской ткани или уровнем цитокина в модели.
4.3. Возраст, сосуды и ограничения причинного вывода
Возрастное изменение активности IAP в некоторых моделях и связь кишечного воспаления с системными маркерами стимулируют гипотезу об участии фермента в возрастном воспалении. Но последовательная цепь «возраст→падение IAP→эндотоксемия→саркопения/атеросклероз/нейродегенерация» у людей не подтверждена как единый причинный путь. Кишечная проницаемость, состав микробиоты, питание, лекарства и заболевания меняются вместе и могут создавать ассоциацию. Экстраполировать эффект IAP у животных на профилактику сердечно-сосудистой смерти или когнитивного снижения нельзя.
5. Что регулирует эндогенную IAP
Биологически осмысленный способ думать о регуляции ALPI — разделять транскрипцию гена, созревание белка, доставку на апикальную мембрану, высвобождение и сохранение активности в просвете. Увеличение мРНК не гарантирует больше активного фермента на субстрате; повышение фекальной активности не доказывает более плотный барьер. Пища одновременно меняет все эти уровни и состав микробиоты, что затрудняет приписывание эффекта одному нутриенту.
Бутират, продукт ферментации некоторых пищевых волокон, в культуре клеток способен усиливать экспрессию ферментов дифференцировки, включая ALPI. Работа Hodin и соавт. изучала клетки рака толстой кишки и транскрипционную активацию: это механистический аргумент, но не измерение IAP на щёточной каёмке здоровой тонкой кишки после конкретной дозы пребиотика. Бутират влияет также на рецепторы и гистондеацетилазы; точный путь от потребления волокна до промотора ALPI у человека нельзя объявить единственной HDAC–Cdx2–KLF4 осью. Практика потребления пищевых волокон имеет основания шире гипотезы IAP.
Пищевой жир способен стимулировать синтез и секрецию IAP в экспериментальных системах; разные кислоты и длительность воздействия дают разные эффекты. Острый секреторный ответ на еду не означает, что высокожировой рацион полезен барьеру в долгосрочной перспективе. Для омега-3 и PPAR, а также для бутирата и HDAC в исходной рукописи предложены правдоподобные звенья, но конкретные кратности индукции ALPI и выбор «оптимального» жира не установлены по перечисленной библиографии как универсальные человеческие эффекты. Рациональные рекомендации по жирам опираются на собственные исходы, а не на один фермент.
Zn²⁺ и Mg²⁺ входят в каталитическую структуру фосфатазы; при дефиците металлов функция металлоферментов может страдать. Но структурное присутствие иона не доказывает, что приём высоких доз цинка или магния сверх потребности повысит кишечную IAP и вылечит эндотоксемию. Дефицит цинка и витамина D оценивают и исправляют по обычным клиническим показаниям; «целевой 25(OH)D 40–60 нг/мл для ALPI» и предложенные дозы не являются результатом испытания такого протокола. Для VDR, пробиотиков, берберина, куркумина, ресвератрола и физической нагрузки имеются разрозненные клеточные и животные гипотезы, но перечень предсказуемых человеческих индукторов ALPI пока не сформирован. Работа с микробиотой через пробиотики требует штаммовой и клинической конкретности.
Голодание, отсутствие энтерального питания, антибиотики и алкоголь меняют эпителий и микробиоту. Но падение IAP при них может быть спутником потери энтероцитов, а не единственным механизмом инфекции или системного воспаления. Утверждение, что все больные после 48–72 часов без питания теряют «более 90% IAP» и поэтому развивают сепсис, слишком сильно и не подтверждено подходящим человеческим сравнением. Замена причинной модели на более аккуратную важна для практики: при парентеральном питании, ВЗК или алкоголе лечат установленное состояние и поддерживают питание, а не предлагают универсальный тест или «стек для ALPI».
Для проверки пищевой регуляции нужен дизайн, различающий острое высвобождение уже имеющегося белка и новую транскрипцию ALPI. В первой ситуации активность в химусе может возрасти спустя короткое время после еды без увеличения количества фермента в эпителии; во второй требуется время на синтез, гликозилирование и апикальный транспорт. Отдельно следует оценить, меняется ли устойчивость IAP к протеазам и сколько активного белка обнаруживается в месте встречи с LPS. Приписывание любого постпрандиального снижения плазменного LPS одному ALPI без этих измерений не позволяет отделить роль желчи, хиломикронов, липопротеинов и проницаемости.
6. Экзогенный фермент: форма, путь введения и клинический исход
6.1. Почему пероральная IAP и внутривенная recAP — не одно вмешательство
Бычью кишечную щелочную фосфатазу (bIAP) исследовали как доступный источник ферментной активности, в основном в доклинических моделях и небольших клинических программах. Рекомбинантная щелочная фосфатаза человека (recAP; илофотаза альфа) сконструирована с элементами кишечной и плацентарной изоформ и предназначалась для системного введения. Химерный белок в плазме не тождественен апикальной GPI-заякоренной ALPI. У него другой путь доставки, распределение, контакт с LPS/eATP и фармакокинетика. Поэтому испытание recAP при сепсис-ассоциированном ОПП нельзя цитировать как доказательство эффективности пищевой добавки IAP для кишечного барьера. Напротив, наблюдение энтеральной bIAP при колите не доказывает нефропротекцию внутривенной recAP.
Ферментный препарат должен сохранять структуру димера и металлоцентра во время производства, хранения и достижения мишени. Для перорального пути кислота, пепсин и протеазы создают проблему доставки в кишку; оболочка, распадающаяся в заданном отделе, — фармацевтическое решение, но её наличие не подтверждает лечебную эффективность. Для системного пути важны доза, инфузионный режим, иммуногенность, возможные реакции на белок и распределение по органам. Утверждение «рекомбинантная форма неиммуногенна» не следует из её человеческого аминокислотного происхождения без клинического наблюдения.
6.2. STOP-AKI и REVIVAL: первичные результаты
| Испытание | Популяция, форма и дизайн | Основной исход | Результат и смысл |
|---|---|---|---|
| STOP-AKI, Pickkers и соавт., 2018 | 301 взрослый пациент ОРИТ с сепсис-ассоциированным острым повреждением почек; международное двойное слепое адаптивное РКИ IIa/IIb; внутривенная recAP 0,4/0,8/1,6 мг/кг либо плацебо один раз в сутки три дня, во второй части 1,6 мг/кг против плацебо | Средний эндогенный клиренс креатинина как AUC дней 1–7 / 7 | Разница для выбранной дозы не достигла статистической значимости: оценка 9,5 мл/мин, 95% ДИ −23,9…25,5; P=0,47. Поздние и вторичные сигналы не меняют отрицательный первичный исход. |
| REVIVAL, Pickkers и соавт., опубликовано в 2024 | 649 пациентов в анализе эффективности с сепсис-ассоциированным ОПП; международное двойное слепое РКИ III фазы; внутривенная илофотаза альфа 1,6 мг/кг в виде часовой инфузии ежедневно три дня против плацебо | Общая смертность к 28-му дню | По 27,9% в обеих группах; набор остановлен из-за бесперспективности по первичной конечной точке. К 90-му дню 33,9% и 34,8%; компонентный почечный исход MAKE90 оставлен как гипотеза для дальнейшего исследования. |
STOP-AKI оценивал функцию почек в первую неделю и не подтвердил клинически обещанное «достоверное ускорение» по первичному критерию. Исходная рукопись также неверно записала идентификатор публикации. REVIVAL является прямой проверкой важнейшего позднего обещания: одинаковая 28-дневная смертность не позволяет назвать илофотазу альфа подтверждённым селективным нефропротектором или средством снижения летальности. Любые вторичные или подгрупповые сигналы требуют отдельного, заранее заданного подтверждения. Химическая правдоподобность гидролиза LPS и ATP сохраняется, но клиническая эффективность для сепсис-ассоциированного ОПП не установлена этими испытаниями.
6.3. Язвенный колит, инфекции и незавершённые направления
В исследовании Lukas и соавт. 21 пациенту со среднетяжёлым или тяжёлым язвенным колитом вводили экзогенную фосфатазу по 30 000 ЕД интрадуоденально ежедневно семь дней. Это было раннее открытое, неконтролируемое исследование безопасности и предварительного сигнала, а не двойное слепое плацебо-контролируемое РКИ. Наблюдавшееся улучшение симптомов и воспалительных маркеров нельзя преобразовать в абсолютный эффект препарата относительно плацебо. Указанные в исходнике «68% против 25%», ректальный путь и вывод о доказанном купировании колита поэтому удалены. Работы Tuin и соавт. на животных дают механистическую опору, но вопрос человеческой эффективности остаётся открытым.
В биологических моделях IAP может менять восприимчивость к энтеральным инфекциям после антибиотиков и к экспериментальному воспалению. Этого недостаточно для утверждения о профилактике диареи путешественников, шигеллёза, СИБР или необходимости добавлять IAP в питание недоношенных. Для таких показаний нужно испытание с точно определённым препаратом, дозой, временем введения, популяцией, клиническим исходом и контролем вреда. Идея доставки ALPI-мРНК в энтероциты с помощью наночастиц ещё более ранняя: в библиографии рукописи нет первичной работы, подтверждающей названные там проценты трансфекции, часы появления белка и профилактику колита. Эти числа и заявленная персонализированная терапия исключены из клинических выводов.
7. Измерение IAP: от активности в пробирке до пациента
Фекальная активность щелочной фосфатазы исследуется как неинвазивный показатель, но не является стандартизованным диагнозом недостаточности IAP. В кале одновременно находятся хозяйские и бактериальные фосфатазы, остатки клеток, изменяющиеся по длине кишечника субстраты и ингибиторы. Спектрофотометрия pNPP показывает скорость реакции в выбранном pH и при выбранной температуре; иммуноанализ ALPI показывает количество узнаваемого белка, которое может не совпадать с активностью. Раздельная оценка изоформ требует валидированного ингибиторного или иммунологического подхода, учёта воды/сухого остатка, времени хранения и воспроизводимости образца. L-фенилаланин полезен как инструмент, но его ингибирование не является магическим «вычитанием всего некишечного» сигнала.
Фиксированные фекальные границы «норма >60–100 ед./г» и «критично <25–30 ед./г» в исходной рукописи не привязаны к методике, калибратору и валидированной популяции. Их нельзя применять как референс или делать по ним диагноз эндотоксемии. Плазменный LPS также сложен для интерпретации: результаты могут зависеть от связывающих белков, липопротеинов и методики. Для воспалительной болезни кишечника и повреждения барьера используют клиническое обследование и установленные методы; IAP может оставаться исследовательским дополнением, если описана аналитическая валидность.
Барьер многоуровнев: слизь и муцины отделяют бактерии от эпителия, секреторный IgA ограничивает контакт, антимикробные пептиды действуют на микробы, плотные контакты регулируют параклеточный поток, а иммунные клетки реагируют на прорыв. IAP меняет химическое состояние части молекул в просвете и на апикальной поверхности. Ни один слой не заменяет остальные, и отдельное увеличение IAP не равно восстановлению всего барьера.
8. Практическая интерпретация и направления исследования
В профессиональной работе полезно задать для каждого утверждения об IAP четыре вопроса. Где находится фермент — на щёточной каёмке, в просвете или после внутривенной инфузии? На каком субстрате реально измерена реакция — pNPP, очищенный липид A, агрегированный LPS или ATP? На каком уровне установлен исход — очищенный белок, культура клеток, мышь или пациент? И совпадает ли измеренный показатель с заявленной пользой — например, клиренс креатинина с выживаемостью, а активность в кале с целостностью барьера? Эти вопросы сохраняют ценность сильной биохимии без преждевременных лечебных выводов.
ALPI связывает пищевой и микробный мир с врождённым иммунитетом через металло-зависимый гидролиз фосфомоноэфиров. Для LPS важны строение липида A, доступность фосфатов и рецепторный контекст TLR4/MD-2; для ATP — совместная работа эктонуклеотидаз и пуринергических рецепторов. Животные модели поддерживают влияние IAP на микробиоту, воспаление и метаболические признаки. У человека пока не подтверждены универсальные фекальные пороги, нутрицевтический протокол «индукции ALPI», лечение язвенного колита ферментом или спасение при сепсис-ассоциированном ОПП. Наиболее полезные будущие исследования должны связывать биохимически подтверждённую активность в правильном компартменте с заранее указанным клиническим исходом и безопасностью.
Метод нарративного обзора и адресной сверки
Исходный корпус — полная исходная рукопись и её 50-позиционная библиография. Подготовлен редакционный нарративный обзор, а не систематический обзор, метаанализ или формальная оценка GRADE. Дата поиска, которым пользовался автор исходной рукописи, неизвестна и здесь не присваивается задним числом. Фактическая адресная сверка первичных публикаций проведена 9 октября 2026 года для трёх конфликтующих клинических утверждений; весь список из 50 работ независимой повторной валидации не проходил.
В публикации STOP-AKI (Pickkers и соавт., 2018) основным исходом был усреднённый за время эндогенный клиренс креатинина за дни 1–7; различие для выбранной дозы recAP 1,6 мг/кг не было статистически значимым (P=0,47). В публикации REVIVAL (Pickkers и соавт., 2024) 28-дневная смертность составила 27,9% в обеих группах; испытание остановили из-за бесперспективности по первичному исходу. Исследование Lukas и соавт. (2010) было открытым неконтролируемым пилотом с участием 21 пациента, получавшего 30 000 ЕД/сут интрадуоденально семь дней.
Механистические данные очищенного фермента, моделей рыб/мышей и человеческие клинические исходы разведены. Числа о Kₘ, сверхбыстрой транскрипционной индукции, фекальных референсах, универсальном эффекте на липид A и нутрицевтических дозах не перенесены как факты без подходящего метода и населения. Серин в каталитическом центре оставлен без номера остатка: исходное Ser102 не подтверждено адресно для выбранной нумерации человеческого ALPI. Первичная проверка отдельных структурных параметров фермента в этом проходе не заявляется.
Частые вопросы
Что делает кишечная щелочная фосфатаза с LPS?
Она может удалять фосфат с доступного липида A, изменяя взаимодействие некоторых форм LPS с TLR4/MD-2. Эффект зависит от строения LPS и условий реакции.
Одинаковы ли IAP и щелочная фосфатаза в анализе крови?
Нет. Общая сывороточная активность включает разные тканевые изоформы и не измеряет непосредственно апикальную ALPI тонкой кишки.
Доказано ли лечение сепсис-ассоциированного ОПП илофотазой альфа?
Нет. STOP-AKI не достигло значимого результата по основному показателю функции почек, а REVIVAL не улучшило 28-дневную выживаемость.
Помогает ли при язвенном колите введение IAP?
Открытое раннее исследование дало предварительный сигнал, но не имело контрольной группы и не доказывает эффективность относительно плацебо.
Можно ли диагностировать «дефицит IAP» по калу?
Фекальная активность изучается, однако стандартизованного референса и доказанного порога для диагноза эндотоксемии нет.
Повышают ли клетчатка, цинк и пробиотики ALPI у человека?
Некоторые механизмы показаны в клетках и животных, но универсальная схема нутрицевтической индукции ALPI с клинической пользой не проверена.
Источники
- Bates JM, Akerlund J, Mittge E, Guillemin K. Intestinal alkaline phosphatase detoxifies lipopolysaccharide and prevents inflammation in zebrafish in response to the gut microbiota. Cell Host Microbe. 2007;2(6):371-382.
- Kaliannan K, Hamarneh SR, Economopoulos KP, et al. Intestinal alkaline phosphatase prevents metabolic syndrome in mice. Proc Natl Acad Sci U S A. 2013;110(17):7003-7008.
- Malo MS, Alam SN, Mostafa G, et al. Intestinal alkaline phosphatase preserves the normal homeostasis of gut microbiota. Gut. 2010;59(11):1476-1484.
- Hamasaki N, et al. Purification and characterization of human intestinal alkaline phosphatase. Clin Chim Acta. 1996;244(1):43-56.
- Le Du MH, Stigbrand T, Taussig MJ, et al. Crystal structure of alkaline phosphatase from human placenta at 1.8 A resolution. J Biol Chem. 2001;276(12):9158-9165.
- Lallès JP. Intestinal alkaline phosphatase: multiple intestinal and systemic functions. Crit Rev Food Sci Nutr. 2014;54(6):820-838.
- Lallès JP. Intestinal alkaline phosphatase: novel functions and protective effects. Nutr Rev. 2014;72(2):82-94.
- Goldberg RF, Austen WG Jr, Zhang X, et al. Intestinal alkaline phosphatase is a gut mucosal defense factor of economic benefit. Am J Surg. 2008;195(4):523-529.
- Chen KT, Malo MS, Moss AK, et al. Identification of specific targets for the gut mucosal defense enzyme intestinal alkaline phosphatase. Am J Physiol Gastrointest Liver Physiol. 2010;299(2):G467-G475.
- Alam SN, Yeliseyev V, Lu R, et al. Intestinal alkaline phosphatase prevents antibiotic-induced susceptibility to enteric pathogens. Ann Surg. 2014;259(4):715-722.
- Hamarneh SR, Mohamed MM, Economopoulos KP, et al. A novel approach to maintain gut mucosal integrity using enteral administration of intestinal alkaline phosphatase. JPEN J Parenter Enteral Nutr. 2014;38(6):708-715.
- Malo MS, Moaven O, Muhammad N, et al. Intestinal alkaline phosphatase promotes gut bacterial growth by dephosphorylating luminal ATP. Am J Physiol Gastrointest Liver Physiol. 2014;306(9):G826-G838.
- Pickkers et al. Effect of Human Recombinant Alkaline Phosphatase on 7-Day Creatinine Clearance in Patients With Sepsis-Associated Acute Kidney Injury: A Randomized Clinical Trial. JAMA. 2018;320:1998–2009.
- Heemskerk S, Masereeuw R, Russel FG, Pickkers P. Selective intracellular accumulation of recombinant alkaline phosphatase protects against renal injury. Crit Care. 2014;18(3):R115.
- Lukas et al. Exogenous alkaline phosphatase for the treatment of patients with moderate to severe ulcerative colitis. Inflammatory Bowel Diseases. 2010;16:1180–1186.
- Tuin A, Poelstra K, de Jager-Krikken A, et al. Role of alkaline phosphatase in colitis: treatment of murine colitis with exogenous alkaline phosphatase. Gut. 2009;58(3):379-387.
- Cani PD, Amar J, Iglesias MA, et al. Metabolic endotoxemia initiates obesity and insulin resistance. Diabetes. 2007;56(7):1761-1772.
- Cani PD, Bibiloni R, Knauf C, et al. Changes in gut microbiota control metabolic endotoxemia-induced inflammation in high-fat diet-induced obesity and diabetes in mice. Diabetes. 2008;57(6):1470-1481.
- Park BS, Song DH, Kim HM, et al. The structural basis of lipopolysaccharide recognition by the TLR4-MD-2 complex. Nature. 2009;459(7244):209-214.
- Raetz CR, Whitfield C. Lipopolysaccharide endotoxins. Annu Rev Biochem. 2002;71:635-700.
- Rietschel ET, Kirikae T, Schade FU, et al. The chemical structure of bacterial endotoxin in relation to bioactivity. Immunobiology. 1993;187(3-5):169-190.
- Poelstra K, Bakker WW, Klok PA, et al. Dephosphorylation of lipopolysaccharide: a novel mechanism of gut barrier protection. Am J Pathol. 1997;151(4):1163-1169.
- Koyama I, Matsunaga T, Harada T, et al. Alkaline phosphatases reduce toxicity of lipopolysaccharides through dephosphorylation. Clin Biochem. 2002;35(6):455-461.
- Bentala H, Verweij WR, Huizinga T, et al. Removal of phosphate groups from lipid A by alkaline phosphatase reduces toxicity while maintaining immunogenicity. Shock. 2002;18(6):561-566.
- Beumer C, Wulferink M, Raaben W, et al. Calf intestinal alkaline phosphatase protects against Salmonella typhimurium infection in mice. Int Immunopharmacol. 2003;3(8):1101-1108.
- Ramasamy S, Nguyen DD, Eston MA, et al. Intestinal alkaline phosphatase has beneficial effects in preventing necrotizing enterocolitis. J Pediatr Surg. 2014;49(11):1621-1627.
- Good M, Siggers RH, Sodhi CP, et al. Amniotic fluid inhibits Toll-like receptor 4 signaling in the fetal intestine and prevents the development of necrotizing enterocolitis. Proc Natl Acad Sci U S A. 2012;109(26):10338-10343.
- Hodin RA, Meng S, Sheikh S, Drury GN. Butyrate induces intestinal alkaline phosphatase expression in human colon cancer cells by transcriptional activation. Surgery. 1996;120(2):259-266.
- Malagelada C, Malo MS, Hodin RA, et al. Impaired intestinal alkaline phosphatase activity in patients with inflammatory bowel disease. Inflamm Bowel Dis. 2010;16(8):1378-1385.
- Alpers DH, Zhang Y, Ahnen DJ. Synthesis and secretion of intestinal alkaline phosphatase in rat small intestine. Am J Physiol. 1995;268(5 Pt 1):E864-E872.
- Eliakim R, DeSchryver-Kecskemeti K, Nogee L, et al. Isolation and characterization of a small intestinal surfactant-like particle containing alkaline phosphatase. Am J Physiol. 1989;257(6 Pt 1):G939-G946.
- Mahmood A, et al. Regulation of intestinal alkaline phosphatase gene expression by dietary fat. Biochim Biophys Acta. 2003;1621(1):31-40.
- Kaliannan K, et al. A host-microbiome interaction mediated by intestinal alkaline phosphatase in metabolic syndrome. Proc Natl Acad Sci U S A. 2015;112(45):13936-13941.
- Ghosh S, et al. Intestinal alkaline phosphatase prevents metabolic endotoxemia and high-fat diet-induced hepatic steatosis. Hepatology. 2017;66(5):1478-1492.
- Economopoulos KP, Ward DV, Bilekova S, et al. The enteroprotective enzyme intestinal alkaline phosphatase mitigates alcoholic liver disease. Ann Surg. 2016;264(6):1097-1104.
- Sanchez de Medina F, et al. Intestinal alkaline phosphatase: a review of its role in mucosal protection and potential therapeutic applications. Nutrients. 2021;13(4):1128.
- Pike AF, Kramer NI, Blaauboer BJ, et al. A novel role for intestinal alkaline phosphatase in zinc and phosphate absorption. J Nutr Biochem. 2013;24(12):2066-2074.
- Ramasamy S, et al. Intestinal alkaline phosphatase preserves gut mucosal barrier function during cardiopulmonary bypass. J Surg Res. 2013;184(1):e27-e33.
- Kuzmich NN, et al. TLR4 Signaling Pathway Modulators as Potential Therapeutics in Sepsis and Autoimmune Diseases. Vaccines (Basel). 2017;5(4):34.
- Deitch EA. Gut-origin sepsis: evolution of a concept. Surgeon. 2012;10(6):350-356.
- Fasano A. All disease begins in the (leaky) gut: role of zonulin-mediated gut permeability in the pathogenesis of chronic inflammatory diseases. Physiol Rev. 2020;100(4):1679-1706.
- Lu P, Sodhi CP, Hackam DJ. Toll-like receptor signaling in intestinal epithelial repair and regeneration. Cell Mol Life Sci. 2018;75(17):3169-3183.
- Hackam DJ, Sodhi CP. Toll-like receptor-mediated intestinal epithelial injury in the pathogenesis of necrotizing enterocolitis. Shock. 2018;49(1):4-11.
- Hamarneh SR, et al. Intestinal alkaline phosphatase attenuates alcohol-induced hepatosteatosis and inflammatory injury. Dig Dis Sci. 2017;62(8):2025-2034.
- Feldman M, et al. The effect of fasting and refeeding on brush border enzymes in human intestine. Gastroenterology. 1982;83(4):871-876.
- Malo MS, et al. Intestinal alkaline phosphatase prevents metabolic endotoxemia and high-fat diet-induced hepatic steatosis in mice. PLoS One. 2015;10(5):e0126376.
- Kaliannan K, et al. Intestinal alkaline phosphatase prevents metabolic syndrome and diabetes in aging mice. Gastroenterology. 2016;150(4):S312.
- Lallès JP, et al. Bioactive food components and intestinal alkaline phosphatase: a review. J Agric Food Chem. 2019;67(15):4144-4158.
- Gao J, et al. Vitamin D receptor regulation of intestinal alkaline phosphatase and mucosal barrier homeostasis. J Biol Chem. 2020;295(38):13214-13227.
- Bilski J, et al. Role of intestinal alkaline phosphatase in inflammatory bowel disease and gut barrier repair. World J Gastroenterol. 2017;23(22):3974-3985.
- Pickkers et al. Phase-3 trial of recombinant human alkaline phosphatase for patients with sepsis-associated acute kidney injury (REVIVAL). Intensive Care Medicine. 2024;50:68–78.
Связанные материалы
- Пищевые волокна и пребиотики: свойства, эффекты и переносимость
- Жиры в питании: качество, замена и омега-6 без мифов
- Цинк в организме: зачем он нужен, как распознать дефицит и почему опасен его избыток
- Витамин D: кости, анализы, добавки и опасность мегадоз
- Пробиотики: штаммы, клинические эффекты и безопасность