
ApoB и LDL-C: число частиц и атеросклеротический риск
Молекулярная биология ApoB-100 и ApoB-48, состав LDL, дискордантность, sdLDL, задержка в интиме и клинические данные. Ограничения анализов, цели терапии и границы доказательств добавок.
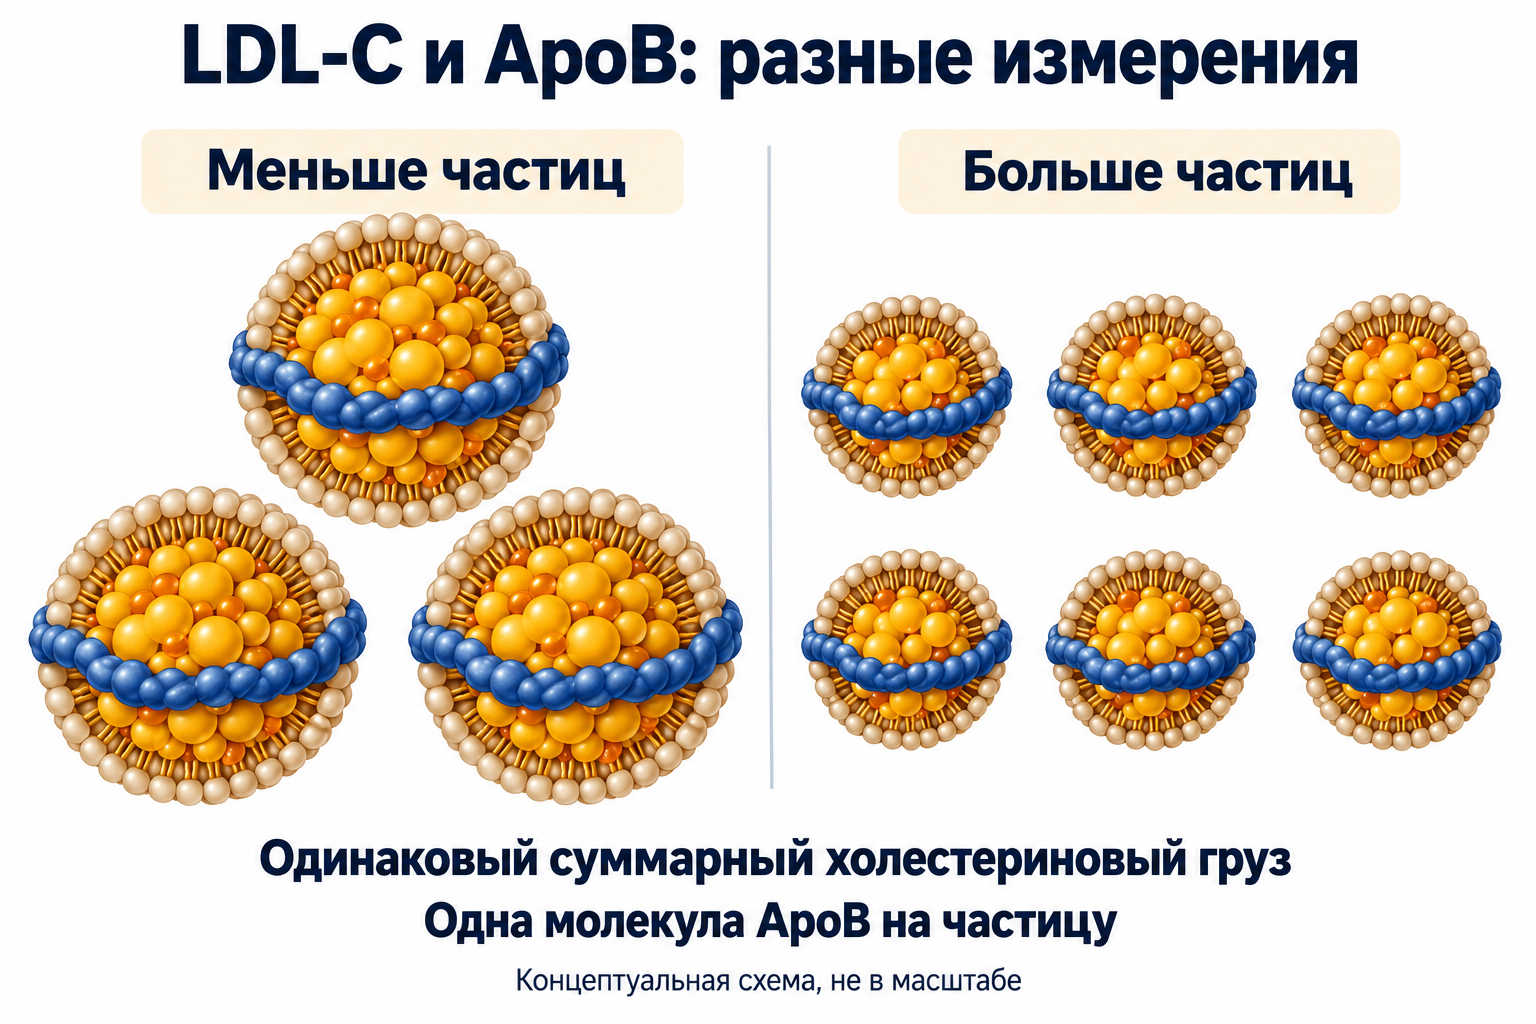
LDL-C и аполипопротеин B описывают разные свойства липопротеинового транспорта. LDL-C — концентрация холестерина, отнесённого к фракции ЛПНП; ApoB — концентрация структурного белка, присутствующего в одной копии на каждой соответствующей частице. При одинаковом LDL-C количество частиц может различаться. Особенно заметна эта дискордантность при гипертриглицеридемии, диабете, инсулинорезистентности и на фоне лечения. Она не отменяет доказательства пользы снижения LDL-C и не делает один анализ полным описанием риска.
Это научный повествовательный обзор: молекулярная биология сопоставляется с аналитическими методами, наблюдательными данными и результатами лекарственных испытаний. Клеточный механизм, изменение лабораторного показателя и предотвращение инфаркта — разные уровни доказательств.
Холестерин и его носители
Эксперименты Аничкова и Халатова, исследования липопротеинов Гофмана, Framingham и открытие LDLR Брауном и Голдштейном заложили взаимодополняющие представления о холестерине и его транспорте. Генетические, эпидемиологические и рандомизированные данные поддерживают причинную роль длительной экспозиции атерогенных липопротеинов. Испытания 4S, WOSCOPS, LIPID, HPS и PROVE-IT подтверждают снижение событий при терапии статинами; оставшийся риск не означает неэффективность LDL-C как лечебной мишени. Утверждение, что 60–70% всех леченных пациентов обязательно переносят повторное событие за пять лет, неверно: долю сохраняющегося относительного риска нельзя приравнивать к доле пациентов с событием.
Липопротеин — частица с гидрофобным ядром триглицеридов и эфиров холестерина, окружённым монослоем фосфолипидов, свободного холестерина и белков. Это не мембранная везикула с липидным бислоем. Кишечные хиломикроны доставляют пищевые липиды; печёночные VLDL после липолиза формируют IDL и LDL. Липопротеины нужны для энергетического обмена, мембран и стероидогенеза, но длительная задержка содержащих ApoB частиц в артериальной интиме способствует заболеванию.
Количество частиц, продолжительность экспозиции, проникновение и удерживание помогают объяснить атерогенез. Их произведение можно использовать как концептуальную схему, но нельзя выдавать за валидированное уравнение индивидуального риска: вероятность события зависит также от возраста, давления, курения, воспаления, диабета, генетики и состояния бляшки.
Ген APOB, редактирование РНК и сборка частиц
Ген APOB расположен в 2p24.1, содержит 29 экзонов; особенно крупный экзон 26 кодирует значительную часть белка. Печень и кишечник — основные места синтеза. Транскрипционные факторы HNF4α и другие участвуют в тканевой регуляции, но количество секретируемого ApoB определяется также доступностью липидов, трансляцией и деградацией белка.
В энтероцитах APOBEC1 катализирует замену цитидина на уридин в мРНК. В традиционной нумерации C6666→U превращает CAA в UAA, создавая остановку вместо Gln2153. Получается ApoB-48 из первых 2152 аминокислот зрелой последовательности: название означает приблизительно 48% длины, а не точную половину массы. A1CF и RBM47 — белки, участвующие в распознавании РНК и организации редактирующего комплекса; их нельзя считать полностью взаимозаменяемыми обязательными кофакторами во всех тканях. Классические работы Powell и Chen (1987), Teng (1993) установили этот механизм. В печени взрослого человека редактирование значительно отличается от кишечного и синтезируется полноразмерный ApoB-100, 4536 аминокислот зрелого белка; нумерация предшественника включает сигнальный пептид.
ApoB-48 входит в хиломикроны и их ремнанты. У него отсутствует C-концевая область ApoB-100, участвующая в связывании LDLR, однако ремнанты удаляются печенью при участии ApoE, LDLR и LRP1. Следовательно, отсутствие ApoB-100 не означает невозможность рецепторного клиренса. Время обращения меняется с размером, питанием и метаболическим состоянием; быстрое удаление в норме не исключает атерогенность накапливающихся ремнантов. Крупные хиломикроны и более мелкие остаточные частицы также различаются по способности попадать в артериальную стенку.
При синтезе ApoB-100 транслокация через Sec61 сопряжена с липидированием микросомальным белком-переносчиком триглицеридов MTP. Его гетеродимер включает субъединицу MTTP и протеин-дисульфид-изомеразу; перенос нейтральных липидов и фосфолипидов позволяет формировать частицы в эндоплазматическом ретикулуме. Недостаточно липидированный ApoB может направляться в ERAD и протеасому; другие пути контроля качества также участвуют в регулировании секреции. Сборка не сводится к количеству транскрипта APOB.
Структура ApoB-100: историческая модель и крио-ЭМ
Пятичастная модель Segrest (2001) описывала чередование амфипатических областей:
N-концевая глобулярная область участвует в сборке; амфипатические β-области взаимодействуют с липидной поверхностью, а другие сегменты обеспечивают приспособление к размерам частицы. Это полезная историческая модель, но её приблизительные границы не следует представлять как атомарно доказанные независимые домены. В традиционной нумерации зрелого белка сайт B около 3359–3369 изучался как протеогликан-связывающая область; вариант Arg3500Gln связан с семейным дефектом ApoB. Cys4326 участвует в ковалентной связи с apo(a) в Lp(a). При сопоставлении структур и генетических вариантов необходимо указывать принятую нумерацию.
Berndsen и Cassidy (2025) получили интегративную структуру ApoB-100 с глобулярным N-концом и протяжённым β-поясом вокруг LDL. В записи PDB 9EA7 указано разрешение 9 Å. Reimund и соавторы (2025) исследовали комплекс ApoB-100–LDLR; для 9BDT указано 5,4 Å. Поэтому исходное утверждение об общем разрешении 3,4 Å и публикациях 2024 года исправлено. Новые данные показывают несколько интерфейсов и распределённые основные участки; связывание нельзя свести исключительно к трём остаткам сайта B и модулям LA4/LA5. Интегративные модели и локальное уточнение не дают одинаковой точности всем остаткам.
Что действительно измеряет ApoB
Одна частица VLDL, IDL, LDL или Lp(a) обычно содержит одну молекулу ApoB-100. Кишечная частица содержит одну молекулу ApoB-48. Это структурный принцип биогенеза, а не доказательство, основанное только на невозможности поместить второй белок на сферу LDL: VLDL гораздо крупнее. Стандартный анализ ApoB измеряет массовую концентрацию белка, служащую практически полезным показателем общего количества ApoB-содержащих частиц; он не считает каждую частицу напрямую, не определяет отдельно LDL-P, размеры, происхождение или число Lp(a).
Если для иллюстрации принять массу ApoB-100 равной 550000 г/моль и пренебречь ApoB-48, связь имеет вид:
Здесь c_m — масса белка в г/л, M — молярная масса в г/моль, n — моль/л, N_A≈6,022×10²³ моль⁻¹, N_V — частицы/л. Для 100 мг/дл=1 г/л:
Исходное значение 10¹⁵ частиц/мл завышено в тысячу раз. Это приблизительный учебный пересчёт, чувствительный к принятой молярной массе, гликозилированию, доле ApoB-48 и особенностям анализа, а не новая лабораторная калибровка.
LDL-C: масса холестерина и аналитические ограничения
Содержание холестерина в частицах меняется с размером и метаболическим ремоделированием. Поэтому одинаковый LDL-C совместим с разным ApoB. Фиксированные числа 500–2700 молекул эфиров и обязательное увеличение частиц в 2–2,5 раза нельзя применять ко всем людям: важны метод, состав, свободный и эстерифицированный холестерин, а общий ApoB включает и другие классы.
В формуле Friedewald (1972) предполагается определённое отношение триглицеридов к холестерину VLDL. В разных единицах:
TC — общий холестерин, TG — триглицериды. При TG≥400 мг/дл (около 4,5 ммоль/л) классическую формулу применять нельзя; при низком LDL-C и повышенных TG она часто недооценивает LDL-C. Ошибка не имеет универсальной величины 15–40%.
Martin–Hopkins (2013) использует адаптивный делитель, выбираемый по TG и non-HDL-C, вместо постоянного 5:
Эта запись относится к мг/дл и реализуется с соответствующей таблицей; нельзя механически переносить тот же делитель в ммоль/л. Новые и расширенные формулы требуют собственной валидации в диапазоне TG. Прямые гомогенные методы используют селективные реагенты и ферментативное определение холестерина; при сложных дислипидемиях могут возникать методозависимые отклонения. Никакой метод LDL-C сам по себе не является измерением количества частиц.
Non-HDL-C=TC−HDL-C включает холестерин LDL, ремнантов и Lp(a), доступен из обычной липидограммы и особенно полезен при повышенных TG. Он тоже отражает липидный груз, поэтому дискордантность с ApoB возможна. «Нормальный» референсный интервал LDL-C не равен индивидуальной лечебной цели.
Малые плотные LDL: размер, состав и метаболизм
LDL неоднородны. Градиентный электрофорез, ультрацентрифугирование, ионная подвижность и ЯМР классифицируют их по разным признакам; обозначения и пороги не полностью взаимозаменяемы. Исторический Pattern A означает преобладание более крупных частиц, Pattern B — более мелких. Часто используемый электрофоретический порог около 25,5 нм нельзя переносить на каждый ЯМР-метод.
| Свойство | Более крупные LDL | Малые плотные LDL |
|---|---|---|
| Часто выделяемые классы | LDL-I/II | LDL-III/IV |
| Иллюстративная плотность | 1,019–1,034 г/мл | 1,034–1,063 г/мл |
| Диаметр | Обычно больше | Обычно меньше; зависит от метода |
| Холестериновый груз | В среднем больше на частицу | В среднем меньше на частицу |
| Метаболический контекст | Не исключает высокий риск | Часто высокие TG, низкий HDL-C, инсулинорезистентность |
| Клиническая интерпретация | Высокий ApoB остаётся значимым | Не заменяет ApoB и общий риск |
Исследования Austin и Krauss связывали малые плотные LDL с коронарными событиями. Однако универсальная независимая прибавка риска в 3–5 раз после учёта ApoB и других факторов не установлена. Размер не превращает крупные LDL в безопасные частицы и не доказывает необходимость рутинного субфракционного анализа.
Конформация ApoB, рецепторное сродство, время циркуляции, окисляемость и взаимодействие с протеогликанами меняются при ремоделировании. Из геометрии следует, что кривизна сферы κ=1/R растёт при уменьшении радиуса, но это не доказывает заданную деформацию сайта B у каждого человека. Универсальные Kd, время полувыведения 4,5–5 суток и ускорение трансцитоза в 2,5–3 раза не подтверждены как клинические константы.
Уравнение Стокса–Эйнштейна характеризует диффузию идеализированной частицы в жидкости:
D — коэффициент диффузии, k_B — постоянная Больцмана, T — абсолютная температура, η — динамическая вязкость, r_H — гидродинамический радиус. При прочих равных меньшая частица диффундирует быстрее. Но рецепторный эндотелиальный транспорт с участием SR-B1 и ALK1 не определяется одной этой формулой. Фиксированное число молекул токоферола и обязательное трёхкратное сокращение лаг-фазы окисления также нельзя переносить из отдельных экспериментов на всех пациентов. Гипергликемия способствует гликированию ApoB и другим изменениям; гликоокисление и AGE объясняют связанные химические процессы, но не определяют клинический риск одним механизмом.
Как инсулинорезистентность способствует ремоделированию
Ослабление антилиполитического действия инсулина в жировой ткани увеличивает поток неэстерифицированных жирных кислот через ATGL и HSL. Портальная доставка из висцеральной ткани — часть общего поступления, а не единственный источник печёночных липидов. Пищевые жиры, липогенез de novo, окисление и экспорт вместе определяют баланс. Инсулин и углеводные сигналы регулируют SREBP-1c и ChREBP; нельзя приписать их активацию только притоку жирных кислот.
Избыток TG может способствовать секреции крупных VLDL1. CETP переносит нейтральные липиды между липопротеинами; LDL и HDL обогащаются TG, а VLDL — эфирами холестерина. Структура CETP содержит гидрофобную полость, но транспорт нельзя описывать как неизменно строго эквимолярный обмен или единственный доказанный непрерывный мост. Печёночная липаза LIPC гидролизует TG и фосфолипиды, способствуя формированию более мелких LDL. Эндотелиальная липаза LIPG преимущественно фосфолипаза, особенно значимая для HDL; её нельзя приравнять к главному TG-гидролизующему звену образования sdLDL.
Ремоделирование HDL может усиливать диссоциацию и катаболизм ApoA-I. Высокие TG, низкий HDL-C и увеличение числа ApoB-частиц часто сочетаются. Однако не каждый такой фенотип имеет одинаковое число частиц, а повышение HDL-C само по себе не является доказанной заменой снижения атерогенной нагрузки.
Дискордантность: что показывают исследования
Дискордантность определяется различными способами: медианами, процентилями, остатками регрессии или лечебными порогами. Их нельзя смешивать. Матрица ниже описывает сравнительную интерпретацию, а не четыре универсальные категории абсолютного риска.
| ApoB относительно LDL-C | Интерпретация |
|---|---|
| Оба ниже выбранного порога | Меньшая измеренная липопротеиновая нагрузка; общий риск остаётся |
| Оба выше | Высокая нагрузка по обоим показателям |
| ApoB выше, LDL-C ниже | Больше частиц, чем ожидается по холестериновому грузу |
| ApoB ниже, LDL-C выше | Меньше частиц, чем ожидается по LDL-C; высокий LDL-C не становится безвредным |
Работы Sniderman по дискордантности, анализ Marston (2022) UK Biobank и леченных пациентов, работа Johannesen (2021) Copenhagen и данные Framingham поддерживают дополнительную информацию ApoB. Наблюдательные модели не устанавливают, что риск «исключительно» определяется ApoB, не доказывают одинаковый риск у всех квадрантов и не позволяют объявить безопасным человека с высоким LDL-C. Цифры 389529, 90197 и приведённые в исходнике HR нельзя без проверки приписывать конкретным подгруппам: они не сохранены как подтверждённые результаты. Библиографическая ссылка PMID 33736829 относилась к другой статье; сохранён DOI работы Johannesen.
Johannesen (2021): 13015 пациентов на статинах, медиана наблюдения 8 лет; высокий ApoB/низкий LDL-C по медианам: HR инфаркта 1,49 (95% ДИ 1,15–1,92). Наблюдательная связь; медианы не лечебные цели.
INTERHEART — международное исследование случай–контроль, а не проспективная когорта. Оно изучало, среди прочего, ApoB/ApoA-I. Популяционная атрибутивная доля около 49% для соответствующего фактора не равна вероятности инфаркта у отдельного человека, не является снижением риска от лечения и не доказывает превосходство одного ApoB во всех условиях. Framingham поддерживает значение долгосрочной липидной экспозиции; конкретная работа Pencina (2019) о траекториях non-HDL-C не должна называться прямым рандомизированным сравнением ApoB-целей.
От задержки частиц до осложнений бляшки
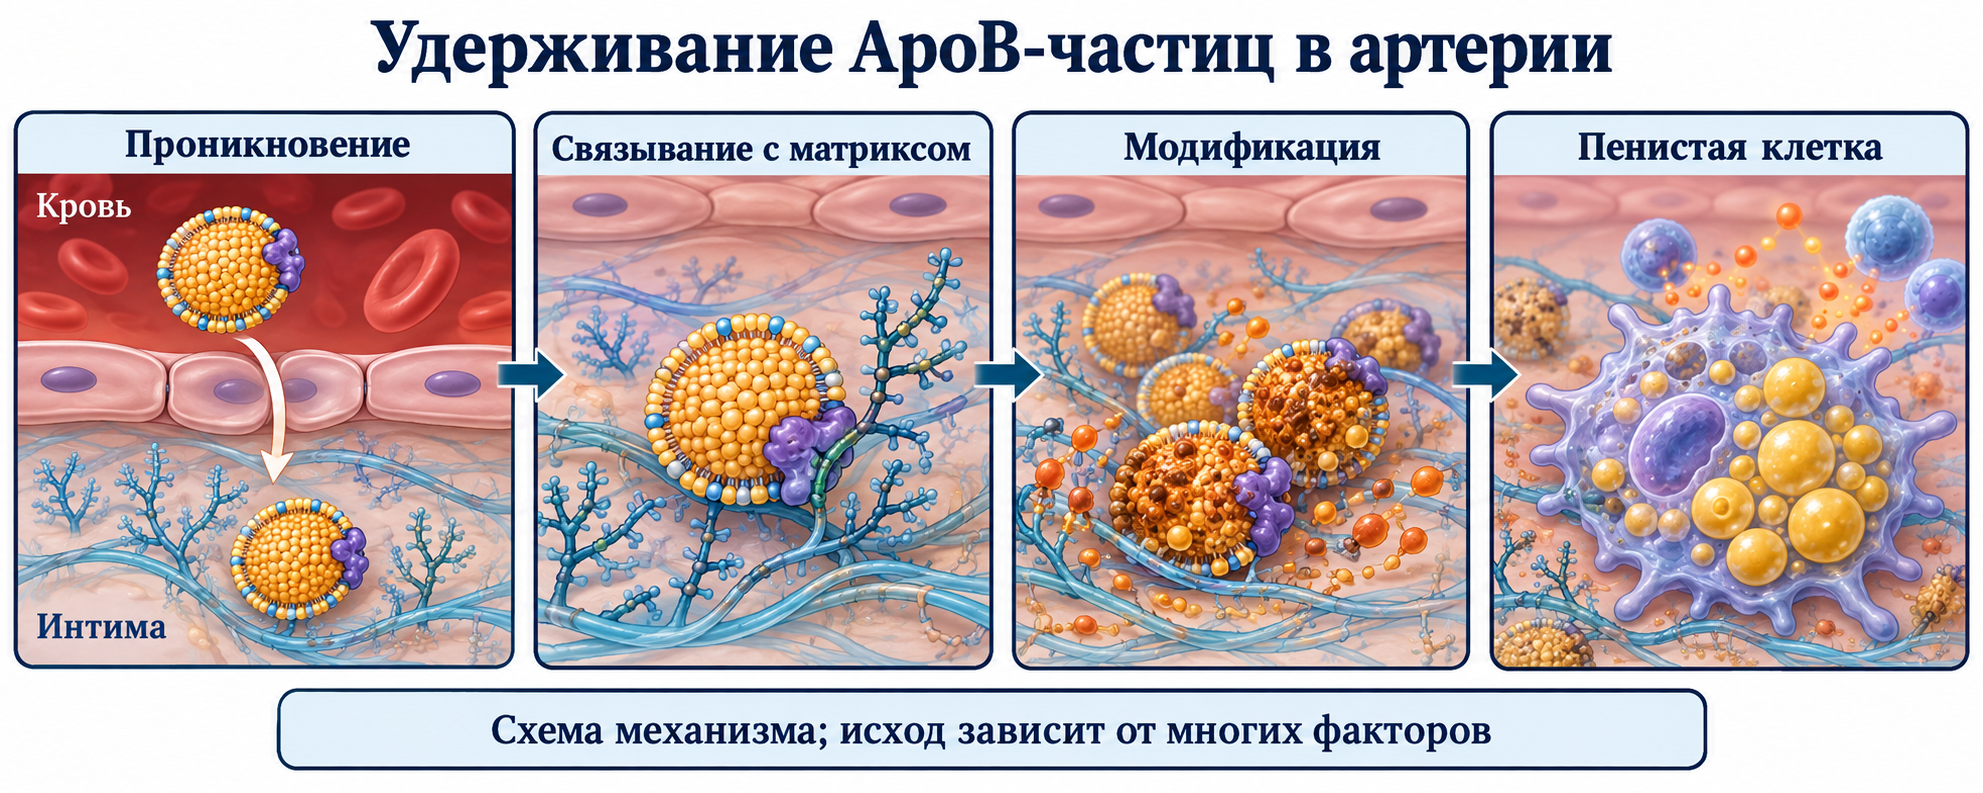
Гипотеза response-to-retention Williams и Tabas связывает начало атерогенеза с удержанием липопротеинов во внеклеточном матриксе интимы. Основные участки ApoB взаимодействуют с отрицательно заряженными сульфатными и карбоксильными группами гликозаминогликанов. Бигликан, версикан, декорин и перлекан различаются по структуре и функциям; матрикс и гемодинамика влияют на задержку. Работа Borén (1998) выявила важный протеогликан-связывающий участок. Изменение связывания в эксперименте и уменьшение атеросклероза в животных моделях нельзя превращать в утверждение о полной отмене заболевания у людей. В этой работе замена всего основного участка нарушала обе функции, тогда как точечная K3363E сохраняла рецепторное связывание при нарушенном связывании протеогликанов; R3500Q показывала обратное разделение. Это конкретный эксперимент, а не доказательство полного отсутствия атеросклероза у человека.
Секреторная кислая сфингомиелиназа расщепляет сфингомиелин с образованием церамида и способствует агрегации LDL; секреторные фосфолипазы A₂ могут образовывать лизофосфолипиды и жирные кислоты. Окисление липидов формирует MDA и 4-HNE, которые модифицируют белки. MPO образует HOCl при наличии H₂O₂ и хлорида; пероксинитрит прежде всего возникает в реакции NO с супероксидом, а не просто как обязательный продукт MPO в присутствии NO.
Макрофагальные CD36 и SR-A1, а также LOX-1 в соответствующих клетках распознают модифицированные липопротеины. Их регуляция отличается от холестерин-зависимого подавления LDLR, но «полное отсутствие любой обратной связи» — чрезмерное упрощение. Поглощение агрегатов и макропиноцитоз, эфиризация холестерина SOAT1/ACAT1 и его отток также определяют образование пенистых клеток. В бляшках липиды накапливают и клетки гладкомышечного происхождения.
Кристаллы холестерина и лизосомное повреждение способны активировать NLRP3, ASC, каспазу-1, созревание IL-1β и IL-18. Воспаление, смерть клеток, недостаточный эффероцитоз и матриксные металлопротеиназы способствуют некротическому ядру и истончению покрышки. Коллагеназы MMP-1/13 и желатиназы MMP-2/9 имеют различную субстратную специфичность. Исторический морфологический порог покрышки 65 мкм не является индивидуальным лабораторным предсказателем. Разрыв или эрозия бляшки может вызвать тромбоз; процесс не неизбежно приводит к трансмуральному инфаркту у каждого человека.
Цели и лекарственная терапия
ESC/EAS сохраняет LDL-C основной лечебной мишенью. ApoB и non-HDL-C помогают дополнительно оценивать нагрузку, особенно при диабете, ожирении, высоких TG и очень низком LDL-C. ApoB не заменяет отдельное измерение Lp(a). Цели выбирают по клиническому риску, а не по универсальному референсному интервалу.
| Категория по ESC/EAS 2019 | LDL-C | Вторичная цель non-HDL-C | Вторичная цель ApoB |
|---|---|---|---|
| Очень высокий риск | <55 мг/дл и снижение ≥50% | <85 мг/дл | <65 мг/дл |
| Высокий риск | <70 мг/дл и снижение ≥50% | <100 мг/дл | <80 мг/дл |
| Умеренный риск | <100 мг/дл | <130 мг/дл | <100 мг/дл |
Для повторного сосудистого события в течение двух лет на максимально переносимой терапии может рассматриваться LDL-C<40 мг/дл; это не отдельная универсальная «экстремальная» категория с обязательным ApoB<55 мг/дл. Возраст сам по себе не определяет умеренный риск. Обновление ESC/EAS 2025 не изменило LDL-C-цели и включило новые данные по терапии; таблица ApoB здесь явно привязана к руководству 2019. AHA/ACC и NLA используют свои подходы: порог усиления терапии и целевая концентрация не всегда одно и то же.
Статины подавляют HMG-CoA-редуктазу и через снижение внутрипечёночного холестерина увеличивают LDLR. Процентное снижение LDL-C может превышать снижение ApoB, но фиксированное отставание 10–15% и объяснение исключительно предпочтительным удалением крупных частиц не универсальны. Эзетимиб ограничивает кишечное поступление холестерина через NPC1L1; IMPROVE-IT установил клиническую пользу добавления к статину после острого коронарного синдрома.
Антитела эволокумаб и алирокумаб препятствуют PCSK9-зависимой деградации LDLR; FOURIER и ODYSSEY OUTCOMES подтверждают уменьшение событий в соответствующих популяциях. Инклисиран — GalNAc-конъюгированная siRNA, подавляющая синтез PCSK9 в печени через RISC. Снижение LDL-C не означает автоматически доказанную идентичную величину эффекта на события для каждого препарата. Изменение Lp(a) на антителах нельзя свести к обычному LDLR-клиренсу: механизм сложнее и снижение обычно умеренное.
Бемпедоевая кислота активируется преимущественно в печени через ACSVL1 и ингибирует ATP-цитратлиазу выше HMG-CoA-редуктазы. Отсутствие значимой активации в скелетных мышцах снижает определённые риски, но не означает абсолютной безопасности. В CLEAR Outcomes 13970 пациентов первичный комбинированный исход наблюдался у 11,7% против 13,3%, HR 0,87; это абсолютная разница 1,6 процентного пункта. Для инфаркта HR 0,77 относится к отдельному исходу. Повышение мочевой кислоты, подагра и желчнокаменная болезнь требуют учёта. Назначение и сочетание средств зависят от диагноза и переносимости.
Питание, добавки и границы переноса механизмов
Вязкие волокна — псиллиум и овсяные/ячменные β-глюканы — влияют на вязкость кишечного содержимого, абсорбцию и обмен желчных кислот. Потеря желчных кислот может увеличить потребность печени в холестерине, связать CYP7A1, FXR/FGF19 и SREBP2–LDLR. Однако волокна не являются доказанными прямыми ингибиторами ASBT; фиксированное увеличение экскреции в 2,5–3,5 раза и единый ApoB-ответ не установлены для каждого продукта. Количество вязких волокон, молекулярная масса, обработка и питание меняют эффект. Понижение LDL-C — промежуточный показатель, а не самостоятельное доказательство профилактики инфаркта конкретной добавкой.
Фитостеролы и станолы уменьшают всасывание холестерина за счёт изменений мицеллярной конкуренции и кишечного транспорта, где участвуют NPC1L1 и ABCG5/8. В исследованиях часто использовалось около 2 г/сут, но это не универсальная лечебная доза и не доказательство снижения событий. Ситостеролемия и неопределённость долгосрочных исходов требуют отдельного рассмотрения. Нельзя утверждать, что фитостеролы полностью устраняют любую компенсаторную абсорбцию на статинах.
Kong (2004) и Cameron (2008) изучали воздействие берберина на стабильность мРНК LDLR и PCSK9, включая клеточные модели. AMPK, ERK и HNF1α объясняют гипотезы, но не устанавливают клиническую эквивалентность статинам. Дигидроберберин имеет ограниченные фармакокинетические данные; пятиразовое всасывание и ApoB-снижение 12–18% нельзя принимать как универсальные эффекты. Более подробно берберин и дигидроберберин рассматриваются с разграничением моделей и клинических результатов. Качество препаратов, взаимодействия и переносимость имеют значение; готовый нутрицевтический протокол на основании этих механизмов не сформирован.
Икосапент этил — рецептурный очищенный этиловый эфир EPA. REDUCE-IT изучал 4 г/сут на фоне статинов у людей высокого риска с TG 135–499 мг/дл и LDL-C 41–100 мг/дл. За медиану 4,9 года первичный исход составил 17,2% против 22,0%, HR 0,75: относительное снижение 25%, абсолютная разница 4,8 процентного пункта. Госпитализация из-за фибрилляции/трепетания предсердий была чаще; серьёзные кровотечения также учитывались. Это не доказательство пользы обычного рыбьего жира для всех и не доказательство полного исчезновения sdLDL. Влияние EPA на TG, окисление жирных кислот, липогенез и воспаление не устанавливает обязательную прямую блокаду DGAT/CETP или переход каждого пациента в Pattern A.
Снижение избытка калорий, замена насыщенных жиров ненасыщенными, пищевые волокна, физическая активность и отказ от курения рассматриваются в общем управлении риском. Избыток сахаросодержащих напитков и фруктозы способен усиливать печёночный липогенез; это не означает, что фруктоза в любой форме и дозе неограниченно превращается в жир. Снижение VLDL на 30–35% за месяц нельзя обещать каждому. Питание с ограниченным временным окном и циркадианные CLOCK/BMAL1/PER интересны для исследований, но схема 16/8 не является доказанным обязательным способом нормализации ApoB или лечения стеатоза через TFEB.
Практическая интерпретация и метод обзора
Начинают с общего клинического риска и липидограммы: TC, HDL-C, TG, LDL-C с указанием метода, non-HDL-C. ApoB особенно полезен, когда холестериновый груз может недооценивать число частиц. Проверяют единицы, вторичные причины дислипидемии, лекарства и условия забора; неожиданное расхождение может потребовать повторного определения. Избыток ApoB при достигнутом LDL-C обсуждают с врачом вместе с риском, переносимостью и доказательствами терапии. Он не автоматически диагностирует sdLDL и не требует универсального сочетания EPA, берберина и псиллиума. Достижение цели уменьшает нагрузку, но не означает «полную компенсацию риска»; сроки повторных анализов зависят от изменения лечения и состояния, а не всегда равны 12 месяцам.
Обзор подготовлен по полному исходному материалу с адресной проверкой спорных единиц, структурных записей и отдельных первичных публикаций 8 октября 2026 года. Получены записи RCSB, абстракт REDUCE-IT, публикация CLEAR Outcomes и официальная информация ESC об обновлении 2025. Часть DOI и многословных поисковых запросов не дала пригодного результата; это ограничение доступа отражено в рабочем журнале. Все библиографические записи не прошли исчерпывающую независимую проверку; неподтверждённые точные коэффициенты и лечебные обещания не использованы как установленные факты. Систематический поиск, собственная оценка GRADE, внешнее рецензирование и клиническая валидация не проводились.
ApoB помогает увидеть число носителей холестерина и разобраться в дискордантности. LDL-C остаётся доказанной лечебной мишенью. Совместная интерпретация показателей, экспозиции и клинического контекста полезнее противопоставления «холестерина» и «частиц» как взаимоисключающих причин.
Частые вопросы
Заменяет ли ApoB LDL-C?
Он дополняет оценку числа частиц; LDL-C остаётся доказанной лечебной мишенью. Решения принимаются с учётом общего риска.
Высокий ApoB при низком LDL-C означает sdLDL?
Это указывает на большее число частиц относительно холестеринового груза. Сам анализ не определяет размеры и не устанавливает конкретный субфракционный диагноз.
Снижение LDL-C исключает риск?
Нет. Оно уменьшает риск, но исходы зависят также от продолжительности экспозиции, давления, курения, диабета и состояния бляшек.
Нужен ли всем берберин или EPA?
Нет. Клеточные механизмы не устанавливают универсальный протокол. Доказательства рецептурного икосапента этила нельзя переносить на любую добавку рыбьего жира.
Источники
- Borén J, Chapman MJ, Krauss RM, Packard CJ, Bentzon JF, Binder CJ, et al. Low-density lipoproteins cause atherosclerotic cardiovascular disease: pathophysiological, genetic, and therapeutic insights: a consensus statement from the European Atherosclerosis Society Consensus Panel. Eur Heart J. 2020;4
- Ference BA, Ginsberg HN, Graham I, Ray KK, Packard CJ, Bruckert E, et al. Low-density lipoproteins cause atherosclerotic cardiovascular disease. 1. Evidence from genetic, epidemiologic, and clinical studies. A consensus statement from the European Atherosclerosis Society Consensus Panel. Eur Heart J
- Sniderman AD, Thanassoulis G, Glavinovic T, Navar AM, Pencina M, Catapano AL, Ference BA. Apolipoprotein B Particles and Cardiovascular Disease: A Narrative Review. JAMA Cardiol. 2019;4(12):1287–1295.
- Marston NA, Giugliano RP, Melloni GEM, Nicolau JC, Chen P, López-Sendón JL, et al. Association of Apolipoprotein B–Containing Lipoproteins and Risk of Myocardial Infarction in Individuals With and Without Atherosclerosis: Distinguishing Between Particle Concentration, Type, and Content. JAMA Cardiol
- Johannesen CDL, Mortensen MB, Langsted A, Nordestgaard BG. Apolipoprotein B and Non-HDL Cholesterol Better Reflect Residual Risk Than LDL Cholesterol in Statin-Treated Patients. J Am Coll Cardiol. 2021;77(11):1439–1450.
- Mach F, Baigent C, Catapano AL, Koskinas KC, Casula M, Badimon L, et al. 2019 ESC/EAS Guidelines for the management of dyslipidaemias: lipid modification to reduce cardiovascular risk. Eur Heart J. 2020;41(1):111–188.
- Williams KJ, Tabas I. The response-to-retention hypothesis of early atherogenesis. Arterioscler Thromb Vasc Biol. 1995;15(5):551–561.
- Tabas I, Williams KJ, Borén J. Subendothelial lipoprotein retention as the initiating process in atherosclerosis: update and therapeutic implications. Circulation. 2007;116(16):1832–1844.
- Yusuf S, Hawken S, Ôunpuu S, Dans T, Avezum A, Lanas F, et al. Effect of potentially modifiable risk factors associated with myocardial infarction in 52 countries (the INTERHEART study): case-control study. Lancet. 2004;364(9438):937–952.
- Friedewald WT, Levy RI, Fredrickson DS. Estimation of the concentration of low-density lipoprotein cholesterol in plasma, without use of the preparative ultracentrifuge. Clin Chem. 1972;18(6):499–502.
- Martin SS, Blaha MJ, Elshazly MB, Toth PP, Kwiterovich PO, Blumenthal RS, Jones SR. Comparison of a novel method vs the Friedewald equation for estimating low-density lipoprotein cholesterol levels from the standard lipid profile. JAMA. 2013;310(19):2061–2068.
- Krauss RM. Dense low-density lipoproteins and coronary artery disease. Am J Cardiol. 1995;75(6):53B–57B.
- Austin MA, Breslow JL, Hennekens CH, Buring JE, Willett WC, Krauss RM. Low-density lipoprotein subclass patterns and risk of myocardial infarction. JAMA. 1988;260(13):1917–1921.
- Powell LM, Wallis SC, Pease RJ, Edwards YH, Knott TJ, Scott J. A novel form of tissue-specific RNA processing produces apolipoprotein-B48 in intestine. Cell. 1987;50(6):831–840.
- Chen SH, Habib G, Yang CY, Gu ZW, Lee BR, Weng SA, et al. Apolipoprotein B-48 is the product of a messenger RNA with an organ-specific in-frame stop codon. Science. 1987;238(4825):363–366.
- Teng B, Burant CF, Davidson NO. Molecular cloning of an apolipoprotein B messenger RNA editing protein. Science. 1993;260(5115):1816–1819.
- Segrest JP, Jones MK, De Loof H, Dashti N. Structure of apolipoprotein B-100 in low density lipoproteins. J Lipid Res. 2001;42(9):1346–1367.
- Elovson J, Jacobs JC, Schumaker VN, Puppione DL. Molecular weights of apolipoprotein B-100 and B-48. Biochemistry. 1985;24(6):1569–1578.
- Sniderman AD, St-Pierre AC, Cantin B, Dagenais GR, Després JP, Lamarche B. Concordance/discordance between apolipoprotein B and LDL-cholesterol as predictors of ischemic heart disease in men. Circulation. 2003;107(4):560–567.
- Pencina KM, Thanassoulis G, Wilkins JT, Pencina MJ, Navar AM, Sniderman AD. Trajectories of Non-HDL Cholesterol Across Midlife and Long-Term Risk of Cardiovascular Disease: A Secondary Analysis of the Framingham Heart Study. JAMA Cardiol. 2019;4(11):1143–1149.
- Mortensen MB, Dzaye O, Bødtker H, Langsted A, Nordestgaard BG. Low-Density Lipoprotein Cholesterol and Non-HDL Cholesterol vs Apolipoprotein B for Risk Assessment in Statin-Treated Patients. J Am Coll Cardiol. 2023;81(9):864–874.
- Skålén K, Gustafsson M, Rydberg EK, Hultén LM, Wiklund O, Innerarity TL, Borén J. Subendothelial retention of atherogenic lipoproteins in en face preparations of rabbit aorta: role of proteoglycans. Arterioscler Thromb Vasc Biol. 2002;22(6):1001–1006.
- Borén J et al. Identification of the principal proteoglycan-binding site in LDL. A single-point mutation in apo-B100 severely affects proteoglycan interaction without affecting LDL receptor binding. J Clin Invest. 1998;101:2658–2664.
- Flood C, Gustafsson M, Richardson PE, Harvey SC, Segrest JP, Borén J. Identification of the proteoglycan binding site in apolipoprotein B48. J Biol Chem. 2002;277(35):32228–32233.
- Schissel SL, Jiang XC, Tweedie-Hardman J, Jeong TS, Camejo EH, Najib J, et al. Secretory sphingomyelinase, a product of the acid sphingomyelinase gene, contributes to arterial wall sphingomyelin hydrolysis and lipoprotein aggregation in atherogenesis. J Biol Chem. 1998;273(5):2738–2746.
- Bhatt DL, Steg PG, Miller M, Brinton EA, Jacobson TA, Ketchum SB, et al. Cardiovascular Risk Reduction with Icosapent Ethyl for Hypertriglyceridemia (REDUCE-IT). N Engl J Med. 2019;380(1):11–22.
- Kong W, Wei J, Abidi P, Lin M, Inaba S, Li C, et al. Berberine is a novel cholesterol-lowering drug working through a unique mechanism distinct from statins. Nat Med. 2004;10(12):1344–1351.
- Cameron J, Ranheim T, Kulseth MA, Leren TP, Berge KE. Berberine decreases PCSK9 expression in HepG2 cells. Atherosclerosis. 2008;201(2):266–273.
- Sabatine MS, Giugliano RP, Keech AC, Honarpour N, Wiviott SD, Murphy SA, et al. Evolocumab and Clinical Outcomes in Patients with Cardiovascular Disease (FOURIER). N Engl J Med. 2017;376(18):1713–1722.
- Ray KK, Nicholls SJ, Li N, Louie MJ, Hou R, Handberg E, et al. Efficacy and Safety of Bempedoic Acid in Patients with Hypercholesterolemia (CLEAR Harmony). N Engl J Med. 2019;380(11):1022–1032.
- Cannon CP, Blazing MA, Giugliano RP, McCagg A, White JA, Theroux P, et al. Ezetimibe Added to Statin Therapy after Acute Coronary Syndromes (IMPROVE-IT). N Engl J Med. 2015;372(25):2387–2397.
- Packard CJ, Boren J, Taskinen MR. Causes and Consequences of Hypertriglyceridemia. Front Endocrinol (Lausanne). 2020;11:252.
- Berndsen ZT, Cassidy CK. The structure of apolipoprotein B100 from human low-density lipoprotein. Nature. 2025;638:836–843.
- Reimund M et al. Structure of apolipoprotein B100 bound to the low-density lipoprotein receptor. Nature. 2025;638:829–835.
- Nissen SE et al. Bempedoic Acid and Cardiovascular Outcomes in Statin-Intolerant Patients. N Engl J Med. 2023;388:1353–1364.
- Mach F et al. 2025 Focused Update of the 2019 ESC/EAS Guidelines for the management of dyslipidaemias. Eur Heart J. 2025.
- RCSB PDB. 9EA7: The Structure of ApoB100 from Human Low-Density Lipoprotein. Experimental record: 9 Å.
- RCSB PDB. 9BDT: Apolipoprotein B 100 bound to LDL receptor and legobody. Experimental record: 5.4 Å.