Akkermansia muciniphila: экология слизи, молекулярные сигналы и метаболическое здоровье
Как Akkermansia перерабатывает гликаны MUC2, участвует в обмене субстратами и взаимодействует с организмом через белки и мембранные липиды. Разбор живых и пастеризованных клеток, четырёх испытаний у людей, результатов 2026 года и границ применения микробиомных анализов.
Akkermansia muciniphila питается ресурсом, который создаёт сам хозяин, — кишечной слизью. Поэтому сообщения об улучшении барьера после её введения кажутся парадоксальными. Но слизь представляет собой постоянно обновляющуюся экосистему. Значение имеют соотношение секреции, микробного расщепления и удаления, состояние эпителия и функции соседних микроорганизмов. Ни обнаружение бактерии, ни высокий процент в анализе кала сами по себе не доказывают здоровье барьера.
Под названием Akkermansia также скрываются разные вмешательства. Живой штамм способен расти и ферментировать субстраты, пастеризованные клетки — нет. Очищенные белки, липиды мембраны и внеклеточные везикулы обладают собственными экспериментальными свойствами. Испытание одного препарата не подтверждает автоматически каждый предложенный механизм, другой штамм или комплекс добавок.
Вид, кислород и смысл показателя численности
Derrien и соавторы описали A. muciniphila в 2004 году, выделив её из человеческих фекалий на среде с муцином. Типовой штамм MucT хранится как ATCC BAA-835 и CIP 107961. Это овальная неподвижная грамотрицательная бактерия семейства Akkermansiaceae в типе Verrucomicrobiota. Частое обнаружение этой линии в кишечнике не делает её единственным возможным представителем всего типа. Размер клетки зависит от условий культивирования и не определяет клиническую полезность.
Опубликованный van Passel и соавторами в 2011 году геном типового штамма содержал 2 664 102 пары оснований, около 55,8% GC и 2176 предсказанных белок-кодирующих генов. Эти величины относятся к конкретному геному. Ферментный репертуар согласуется со специализацией на муцине, но аннотация гена ещё не означает, что фермент очищен, его активность установлена и экспрессия доказана в кишечнике конкретного человека.
Несмотря на привычное определение «анаэроб», Akkermansia переносит и потребляет небольшие количества кислорода. Ouwerkerk и соавторы (2016) показали кислород-зависимые изменения транскрипции, функциональную систему цитохрома bd и увеличение роста или выхода биомассы при контролируемой низкой доступности кислорода. Функциональная комплементация в Escherichia coli помогла установить дыхательную роль системы. Это поддерживает возможность адаптации к градиенту у слизистой, но не устанавливает универсальное человеческое давление кислорода 10–30 мм рт. ст. Гемин может обеспечивать гемовый кофактор, а не служить донором электронов. Цистеин, используемый для восстановления культуральной среды, также нельзя объявлять обязательным физиологическим дыхательным субстратом.
Часто цитируемые 1–4% относятся к относительной представленности последовательностей в отдельных популяциях и образцах. Это не доля кишечной биомассы и не количество живых клеток. Результат зависит от места отбора, выделения ДНК, праймеров, платформы и базы сравнения:
rA=100∑iNiNA.
Здесь r_A — процент прочтений, отнесённых к Akkermansia; N_A — их число, а знаменатель — общее число отнесённых микробных прочтений. Снижение других бактерий может увеличить процент Akkermansia без увеличения её абсолютного количества. Количественная ПЦР требует собственной калибровки; КОЕ отражают жизнеспособные культивируемые клетки в выбранных условиях. Эти показатели невзаимозаменяемы. Кал не показывает непосредственно положение бактерий в слизистой или толщину её слоя. Наличие в младенчестве, пожилом возрасте или при заболевании не задаёт универсальную возрастную норму, а отсутствие сигнала не диагностирует дефицит.
Штаммы и филогруппы
Название вида не описывает одинаковый набор функций. В анализе 75 геномов Kirmiz и соавторов (2019) выделялись AmI, AmII, AmIII и AmIV. Некоторые представители AmII и AmIII имели способность синтезировать витамин B12 de novo. Это не означает, что каждый AmII является эквивалентом витаминной добавки, что AmI составляет свыше 80% в любой популяции или что AmIV встречается исключительно вне человека. Becken и соавторы (2021) выделяли человеческие штаммы AmI, AmII и AmIV и обнаружили различия геномов и фенотипов, включая особенности поверхности.
Средняя нуклеотидная идентичность помогает разграничивать линии, но не ранжирует их от полезных к вредным. Использование олигосахаридов грудного молока также зависит от штамма. Субстрат одного изолята или родственного вида Akkermansia нельзя автоматически приписывать MucT и каждому коммерческому продукту. Капсульные гены, устойчивость к кислороду, питание и продукты метаболизма различаются. При интерпретации исследования важны обозначение штамма, жизнеспособность, подготовка и доставляемое число клеток.
MUC2 — сложный возобновляемый барьер
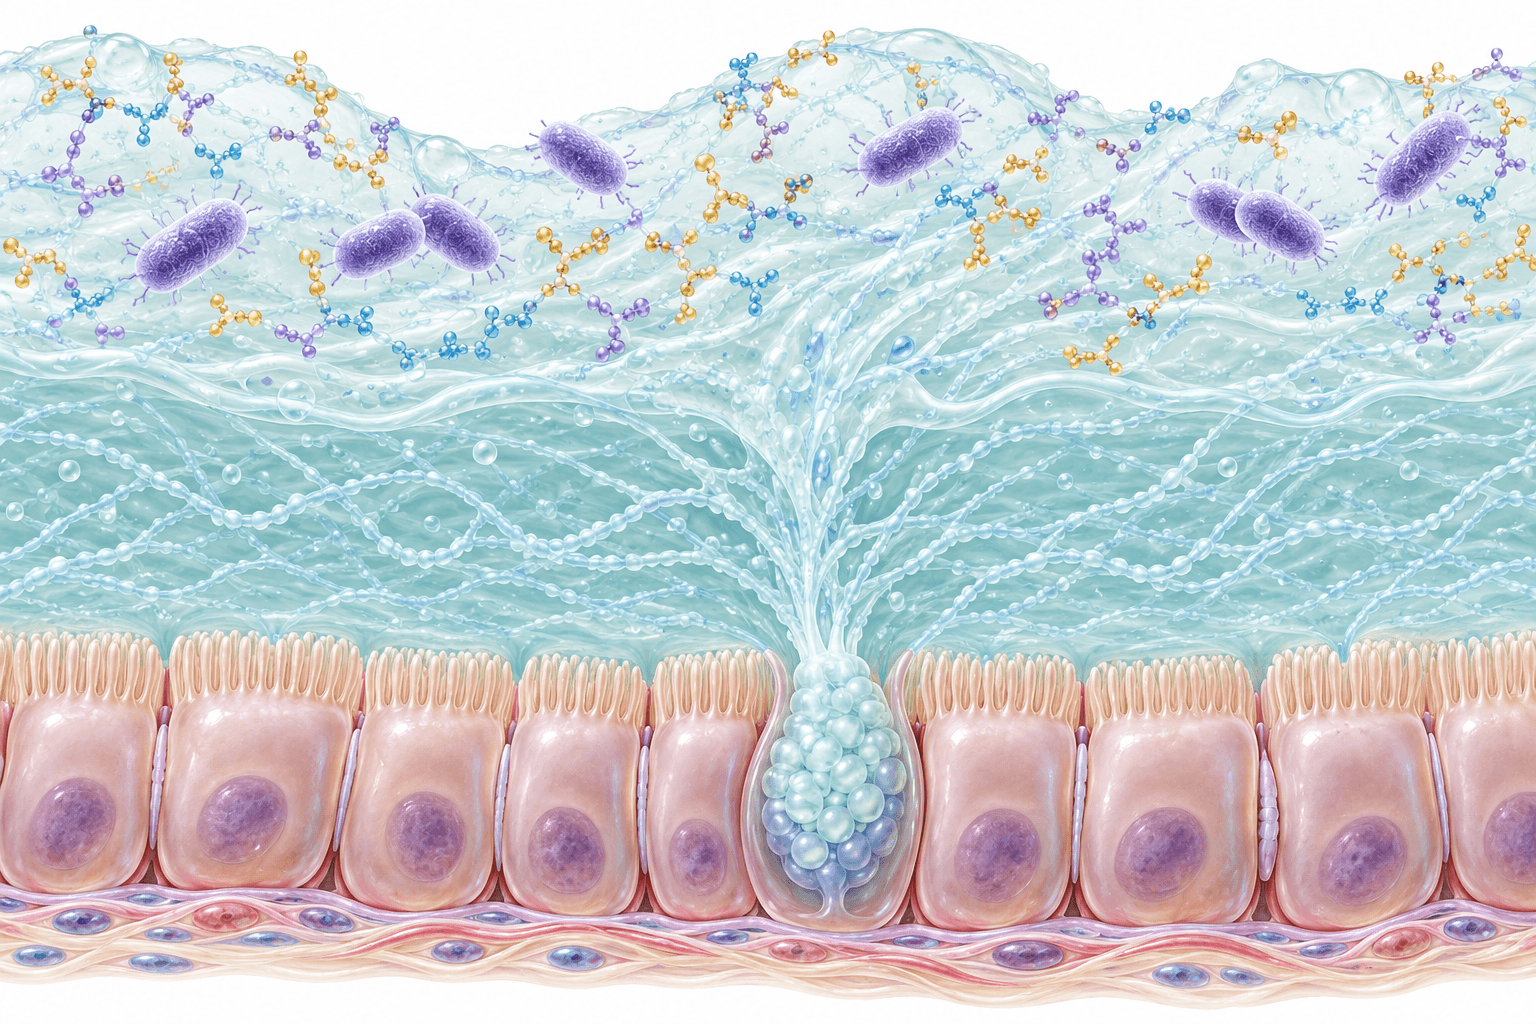
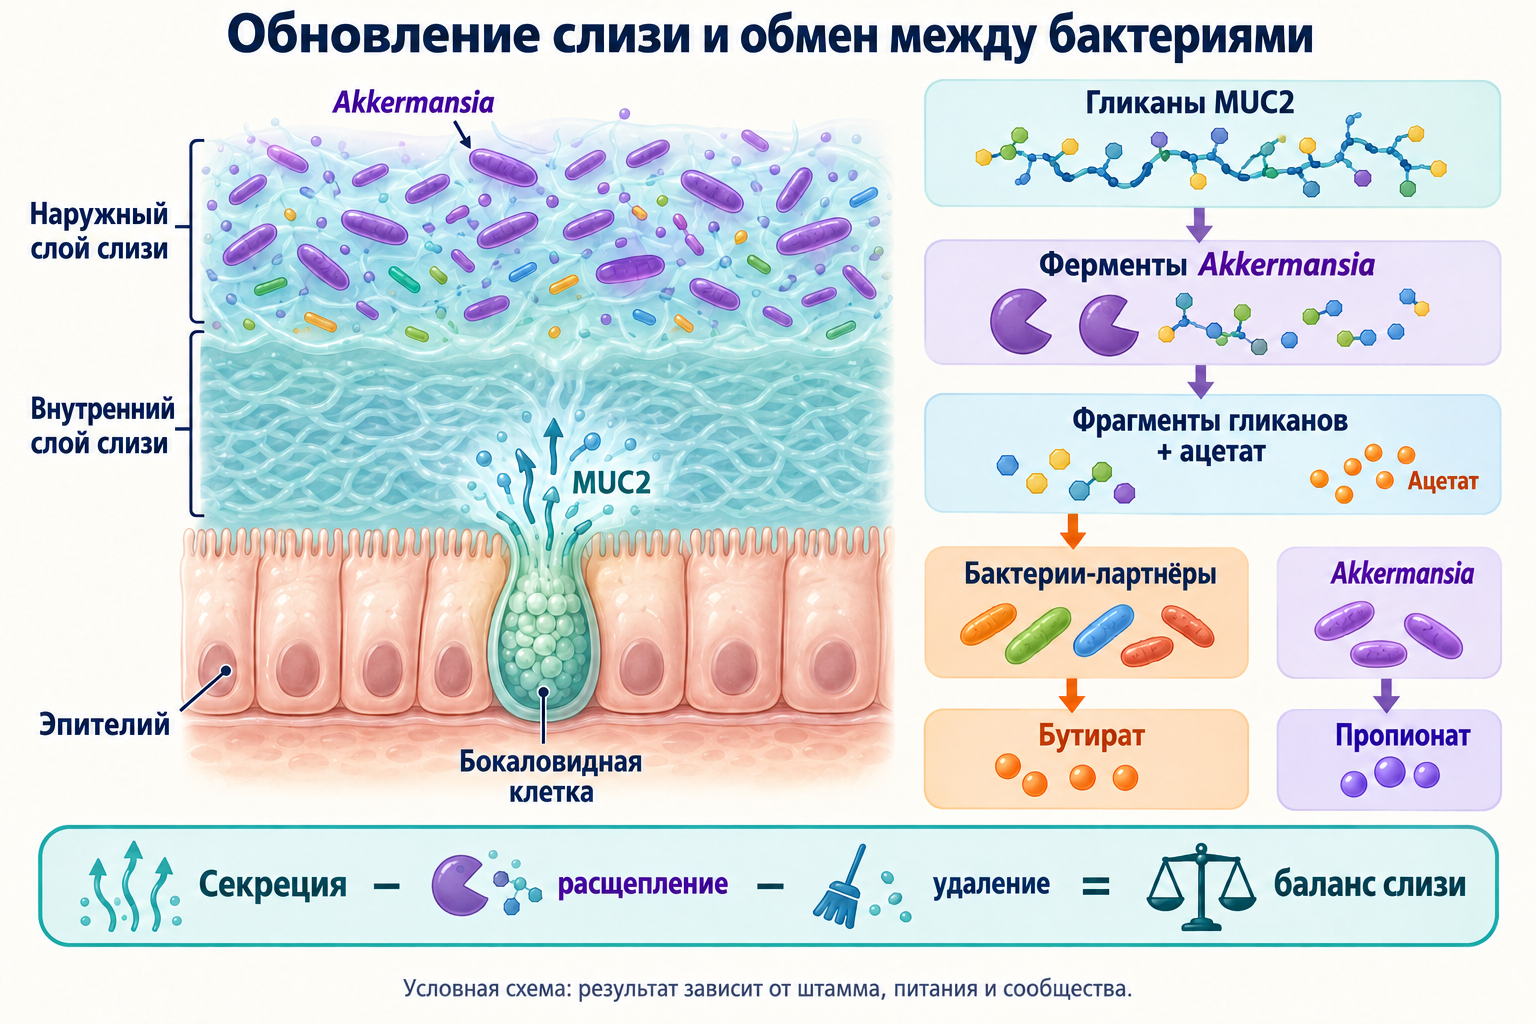
Бокаловидные клетки толстой кишки секретируют гелеобразующий муцин MUC2. Его белковый остов содержит богатые пролином, треонином и серином участки с плотным O-гликозилированием. Начальный N-ацетилгалактозамин, GalNAc, обычно связан с серином или треонином. В ядре 1 находится Galβ1–3GalNAc, в ядре 2 добавляется ветвь GlcNAcβ1–6, ядро 3 начинается с GlcNAcβ1–3GalNAc, а ядро 4 представляет разветвлённый вариант. Удлинённые цепи включают галактозу, GalNAc, GlcNAc, фукозу и сиаловую кислоту; степень сульфатирования варьирует. Глюкозу неправильно перечислять среди основных определяющих моносахаридов этих O-гликанов MUC2.
Дисульфид-зависимая сборка на концах белка и гидратация создают полимерный гель. Условная схема не заменяет атомную структуру всего нативного полимера; утверждение об неизменном N-концевом тримере во всех условиях излишне категорично. Плотный внутренний слой обычно ограничивает доступ бактерий, наружный поддерживает колонизацию и обмен питательными веществами. Johansson и соавторы (2008) показали такую организацию у мышей и контакт бактерий с эпителием и криптами при недостатке Muc2. Толщина зависит от вида, сегмента кишки, гидратации, обработки образца и воспаления. Фиксированные размеры и единый диаметр пор нельзя переносить на всех людей; «ограничивающий доступ бактерий» точнее абсолютной стерильности каждого внутреннего слоя.
Слизь действует вместе с эпителием, антимикробными молекулами, иммунным контролем и межклеточными контактами. Изменение одного компонента не доказывает восстановления всего барьера. Это особенно важно для эндотоксина крови, транскриптов белков контактов и электрического сопротивления; различия этих показателей рассмотрены в статье о кишечной проницаемости и транслокации LPS.
Ферментное расщепление гликопротеина
Akkermansia не обязательно сначала снимает все сахара, а затем режет голый белок. Её системы распознают неоднородный гликопротеин; реакции могут сотрудничать и идти в разных последовательностях. Семейство CAZy характеризует родство каталитических структур, а не одинаковый субстрат или клеточную локализацию.
Shuoker и соавторы (2023) охарактеризовали фукозидазы и сиалидазы, снимающие разнообразные завершения муциновых цепей. В их условиях ни высвобождённая фукоза, ни сиаловая кислота не обеспечивали рост Akkermansia, зато продукты поддерживали обмен с отдельными бутират-продуцирующими клостридиями. Это не отменяет фукозный метаболизм в других средах и штаммах, но опровергает универсальную картину немедленного полного потребления всех освобождённых сахаров одной бактерией.
Bakshani и соавторы (2025) изучили панель из 54 гликозидгидролаз, 11 сульфатаз и одной полисахаридлиазы. Совместная активность позволяла разбирать O-гликаны до структур ядра. Эти 66 белков не составляют весь ферментный набор организма. Amuc_1008 относится к GH31_18 и имеет предполагаемую периплазматическую роль; обработка ядра α-GalNAc зависит от пептидного окружения. Amuc_0216 относится к GH36 и действует в другом контексте структур ядра. Это сеть реакций, а не обязательная для любого гликана последовательность «сиалидаза — фукозидаза — галактозидаза — протеаза».
Некоторые муцин-селективные металлопротеазы M60 распознают гликозилированные пептидные мотивы. Структурные исследования и мутагенез объясняют участие гликана в распознавании. O-гликопептидазу OgpA семейства M11 нельзя без оснований относить к M12 или объявлять ферментом определённого конца человеческого MUC2. Аспартатную протеазу Amuc_1434 также изучали биохимически и в клеточных линиях. Расщепление субстрата в такой модели не доказывает ни неконтролируемого разрушения человеческого барьера, ни лечебного обновления слизи.
Сульфатазы часто используют каталитический центр с производным формилглицина. Путь созревания зависит от системы; обязательное кислород-зависимое окисление цистеина нельзя приписывать каждой бактериальной сульфатазе. Упрощённая суммарная реакция:
R−O−SO3−+H2O⟶R−OH+SO42−+H+.
R обозначает углеводный субстрат; ионизация зависит от pH. Формула не определяет скорость появления сульфата в крови и не доказывает восстановления печёночного PAPS. Сульфат может использоваться другими микробами, включая сульфатредуцирующие. Последствия зависят от локализации, субстратов и обращения организма с продуктами, в том числе сероводородом.
Равновесие обновления и расходования
Полезная концептуальная запись:
dtdM=S−D−E.
M — количество слизи в заданном компартменте; S, D и E — скорости секреции, расщепления и удаления в одинаковых единицах количества за время. Это модель баланса, а не валидированный клинический тест. Усиление расщепления может сочетаться с сохранением слоя, если секреция возрастает достаточно. Но воспаление, недостаточная секреция и лишение сообщества пищевых субстратов могут изменить результат.
Дифференцировка бокаловидных клеток включает программы ATOH1 и KLF4, TFF3 участвует в восстановлении поверхности, RELMβ и другие молекулы влияют на доступ микробов. Нельзя сводить эти процессы к универсально доказанной цепочке Akkermansia–FFAR3–ATOH1 с определённой кратностью роста человеческого MUC2. FFAR2 способен передавать сигналы через Gi/o и Gq/11, FFAR3 — преимущественно через Gi/o. Важны экспрессия рецептора и локальная концентрация. Транскрипт, фенотип мыши и проницаемость человека — разные уровни доказательств.
Короткоцепочечные кислоты и обмен между бактериями
Akkermansia обычно образует ацетат и пропионат; пропорции зависят от среды, штамма, фазы роста и кофакторов. Фиксированная доля ацетата 70–80% не является физиологической константой вида. Сукцинатные пути и доступность B12 влияют на пропионат. Основным непосредственным производителем бутирата бактерию обычно не считают: бутират может возрастать за счёт соседей.
Belzer и соавторы (2017) показали, как расщепление муцина поддерживает отдельных партнёров, включая Anaerostipes caccae, Faecalibacterium prausnitzii и Eubacterium hallii, ныне Anaerobutyricum hallii. Ацетат и доступные продукты гликанов могут обеспечивать синтез бутирата, а корринойд партнёра — менять обмен Akkermansia. Метаболизм 1,2-пропандиола нельзя называть прямым путём к бутирату: он может обеспечивать пропионат через иную сеть реакций.
Одна из терминальных реакций синтеза бутирата:
butyryl−CoA+acetate⟶butyrate+acetyl−CoA.
Это перенос CoA, а не конденсация ацетата с неизменным бутирил-CoA. Обнаружение партнёров не измеряет величину потока у конкретного человека.
Бутират служит топливом колоноцитам, влияет на потребление кислорода, HIF и регуляцию генов через ингибирование гистондеацетилаз. Экспериментальные работы также поддерживают прямое влияние на пролилгидроксилазы HIF и регуляторные T-клетки. Эффект зависит от концентрации и состояния клетки; фиксированная доля ATP колоноцитов не универсальна. Кокультура не доказывает, что приём Akkermansia повысит фекальный бутират, увеличит FOXP3-положительные клетки или вылечит воспаление у человека. Концентрация в кале определяется не только продукцией, но и всасыванием и транзитом.
Три разных молекулярных сигнала
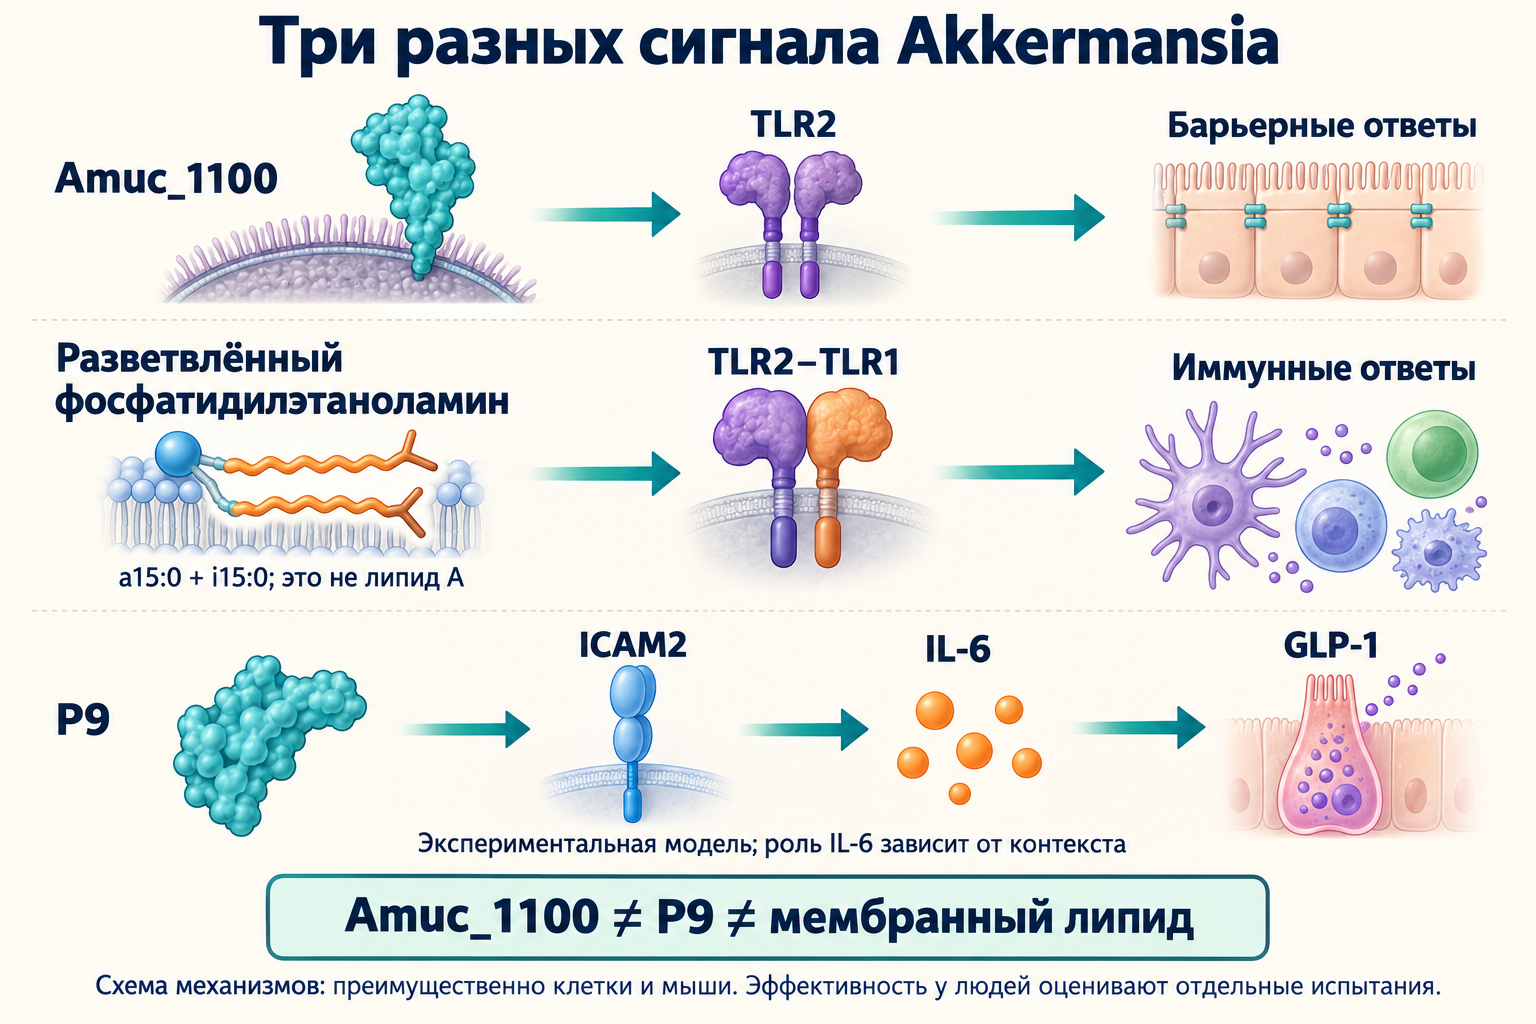
Поверхностные компоненты могут действовать и после потери жизнеспособности. Это объясняет, почему пастеризация не обязательно отменяет биологическую активность, но не сводит все эффекты к одной молекуле.
Amuc_1100 и TLR2. Ottman и соавторы (2017) изучали поверхностные и пилеподобные структуры и TLR2-связанную активность Amuc_1100, включая изменение электрического сопротивления эпителиальной модели. Plovier и соавторы (2017) исследовали пастеризованные клетки и очищенный белок у мышей с метаболическими нарушениями. Это кандидаты механизмов, а не универсальные кратности роста человеческих клаудинов, окклюдина или Reg3.
Amuc_1100 состоит из 317 аминокислот и имеет предсказанный N-концевой мембранный участок. Автоматически объявлять его липидированным липопротеином с доказанным ковалентным диацильным якорем нельзя. Структурные работы 2020 года с растворимыми конструкциями показали смешанную α/β-архитектуру и зависимость олигомеризации от конструкции. Они не определили структуру целой нативной пили в комплексе с человеческим TLR2. Некоторые препараты подвергались протеолизу, поэтому абсолютная устойчивость к пищеварительным протеазам необоснованна. Ответ TLR2 зависит от ткани и воспалительного контекста; активация не равнозначна клиническому противовоспалительному результату.
Разветвлённый фосфатидилэтаноламин и TLR2–TLR1. Bae и соавторы (2022) идентифицировали диацильный фосфатидилэтаноламин с цепями a15:0 и i15:0. Он взаимодействовал с TLR2–TLR1 и давал относительно слабый избирательный иммунный сигнал в эксперименте. Это фосфатидилэтаноламин, а не липид A. Рецепторную пару нельзя автоматически приписать Amuc_1100, а изменение цитокинов — считать лечением любого воспалительного заболевания.
P9, ICAM2 и GLP-1. Yoon и соавторы (2021) описали секретируемый белок P9 массой около 84 кДа с ICAM2-связанным и IL-6-зависимым действием. Он усиливал секрецию GLP-1 и был связан с термогенными и метаболическими изменениями у мышей на жирном рационе. P9 отличается от Amuc_1100. Действие IL-6 зависит от времени и ткани. Физиологическая секреция GLP-1 не эквивалентна экспозиции при введении лекарственного агониста его рецептора; различия раскрыты в материале о GLP-1 и пищевых секретагогах.
LOS, везикулы и липидные сигналы хозяина
Грамотрицательная оболочка не означает, что эндотоксин Akkermansia идентичен эндотоксину E. coli. Garcia-Vello и соавторы (2024) охарактеризовали липоолигосахарид LOS без повторяющейся O-антигенной цепи и с неоднородным липидом A. Ацилирование, разветвление и фосфорилирование влияют на распознавание. Целый LOS и выделенный липид A различались по сигналам; человеческий TLR2 имел существенную роль, а сильную классическую TLR4-активность нельзя было просто предположить. Это не универсальный антагонист TLR4 и не доказательство одинакового тысячекратного снижения активности всех препаратов.
Внеклеточные везикулы переносят компоненты бактерии. Chelakkot и соавторы (2018) исследовали барьерные эффекты в эпителиальных клетках и мышах на жирном рационе, включая окклюдин. Наблюдения в человеческих фекальных образцах были ассоциативными. Они не доказывают надёжного прохождения пероральных везикул через гематоэнцефалический барьер, доставки работающей РНК в нейроны, восстановления BDNF или лечения нейродегенерации. Для каждого утверждения нужны данные об очистке, дозе, пути введения, распределении и ткани-мишени.
Everard и соавторы (2013) наблюдали улучшения у мышей после живой Akkermansia одновременно с увеличением кишечных 2-олеоилглицерола, 2-арахидоноилглицерола и 2-пальмитоилглицерола. Описывать это как доказанное снижение 2-AG ошибочно. Эти молекулы имеют разные рецепторные связи; GPR119-связанный сигнал 2-OG нельзя свести к универсальному конкурентному антагонизму CB1 и CB2. Анандамид — другая молекула. Результаты поддерживают гипотезу кишечной липидной сигнализации, а не гарантированный человеческий каннабиноидный эффект.
Воспаление, инсулин и термогенез
Микробные продукты могут усиливать воспалительную сигнализацию. Распознавание LPS включает LBP, CD14, MD-2 и TLR4; киназы и цитокины влияют на IRS и PI3K–AKT, TBC1D4/AS160 и перенос GLUT4. Но общий путь не доказывает непосредственного восстановления каждого звена Akkermansia у пациента.
Фосфорилирование требует точного указания позиции. Мышиная IRS1 Ser307 соответствует человеческой Ser312, но не всегда является тормозящим переключателем. В опытах Copps и соавторов (2010) предотвращение фосфорилирования Ser307 могло ухудшать инсулинорезистентность. Универсальный тезис «снижение этого фосфорилирования восстанавливает инсулин» неверен. Макрофаги жировой ткани образуют спектр состояний, а M1/M2 — модельное сокращение. CD11c, CD206, аргиназа-1, цитокины и локализация требуют совместной оценки; мышиные маркеры не переносятся неизменно на человека. Наблюдения об адипонектине, AMPK и печёночном липогенезе поддерживают связанные гипотезы, а не обязательное переключение всех макрофагов.
Изменение сообщества может менять пул желчных кислот. Но Akkermansia нельзя автоматически приписывать 7α-дегидроксилирующие системы других производителей вторичных кислот. Кишечный FXR связан с FGF19 человека и FGF15 мыши; печёночные FGFR4 и β-Klotho участвуют в обратной связи CYP7A1. TGR5 сопряжён с Gs и cAMP; в подходящих моделях его действие может влиять на DIO2 и превращение T4 в T3. Это правдоподобные связи, но не доказательство универсального роста полезных кислот или человеческих энергозатрат. P9 и UCP1 у мышей нельзя прямо приравнять к длительному похудению; границы такого переноса раскрыты в статье о бурой жировой ткани и термогенезе. Печёночные изменения в опытах Kim и соавторов (2020) сами по себе не доказывают отдельного желчно-кислотного механизма или излечения человеческого стеатогепатита.
Что показали испытания у людей
Dao и соавторы (2016) исследовали связь исходной численности, микробного богатства и ответа на диету при ожирении. Ассоциация и прогноз ответа отличаются от рандомизированного введения штамма. Диета, лекарства и состояние всего сообщества могут смешивать связи.
Исследование
Участники и вмешательство
Интерпретация
Depommier, 2019
40 включены, 32 завершили; живые или пастеризованные клетки, 10¹⁰ в день, 3 месяца; избыточный вес/ожирение с инсулинорезистентностью
Пилотное улучшение отдельных метаболических показателей; не доказательство универсального лечения ожирения и редкой безопасности
Zhang, 2025
Живой AKK-WST01, 58 людей с диабетом 2 типа, 12 недель, изменение образа жизни в обеих группах
Общие межгрупповые преимущества по весу и HbA1c не установлены; подгруппы с низкой исходной численностью требуют проверки
Mount, 2026
90 взрослых; 24 недели поддержания после 8 недель низкоэнергетической диеты и потери не менее 8% веса
Пастеризованный MucT уменьшал возврат веса; это отдельный сценарий после предварительного похудения
Suenaert, 2026
142 взрослых с метаболическим синдромом; 30 млрд пастеризованных клеток MucT в день, 4 месяца
Основной показатель Matsuda в intention-to-treat значимо не различался; благоприятные поисковые подгруппы не заменяют основной результат
В пилоте 2019 года улучшение 28,62 ± 7,02% относилось к чувствительности к инсулину, p = 0,002, а снижение 34,08 ± 7,12% — к инсулинемии, p = 0,006. Это не автоматически снижение HOMA-IR на 28,62% и площади под кривой глюкозы на 34,08%. Общий холестерин снизился на 8,68 ± 2,38%, p = 0,02. Разница веса −2,27 ± 0,92 кг относительно плацебо имела p = 0,091 и не является установленным статистическим эффектом похудения. Изменения жировой массы и окружности бёдер относительно исходного уровня используют иной компаратор; нельзя соединять их в единую плацебо-контролируемую победу.
В исследовании Mount (2026) возврат веса составлял 1,2 ± 0,7 кг против 3,2 ± 0,4 кг на плацебо, p = 0,012. Изучалось удержание потери после структурированной диеты, а не эквивалентное похудение без неё. Связи с исходным микробиомом пока не создают универсального правила назначения; важны длительность, размер выборки и раскрытые коммерческие связи.
В исследовании Suenaert (2026) основной ITT-анализ Matsuda был отрицательным. Поисковые результаты для печёночной инсулинорезистентности, предиабета, возраста, исходно низкой Akkermansia и GLP-1 формируют гипотезы, но не отменяют основной результат. Значимость в подгруппе не доказывает эффективность для любого человека с похожим анализом кала. Метаболическое здоровье не является одним взаимозаменяемым исходом.
Пастеризованные клетки нежизнеспособны: они не колонизируют, не растут, не ферментируют муцин и не синтезируют SCFA после введения. Действовать могут сохранённые компоненты. Дозу корректно выражать в клетках, а не жизнеспособных КОЕ, если не описана отдельная валидированная методика. Использование 70°C в течение 30 минут в важных экспериментах не устанавливает одинаковую стабильность и безопасность любой промышленной подготовки. Живые клетки, пастеризат, очищенный белок и везикулы невзаимозаменяемы.
Иммунотерапия и воспалительные заболевания
Routy и соавторы (2018) связывали микробиоту с ответом на PD-1-направленную иммунотерапию; переносы сообществ мышам поддерживали причинный вклад определённых конфигураций. В эксперименте Akkermansia связывалась с IL-12-зависимым привлечением CCR9-положительных CXCR3-положительных CD4-клеток. Это не доказательство повышения выживаемости любого онкологического пациента коммерческой добавкой или восстановления ответа после любых антибиотиков.
Derosa и соавторы (2022) исследовали 338 пациентов с распространённым немелкоклеточным раком лёгкого на ингибиторах контрольных точек. Фекальная Akkermansia ассоциировалась с ответом и выживаемостью, но связанная с антибиотиками чрезмерная относительная доминантность выше 4,8% также сопровождалась резистентностью в подгруппе. Это специфичный исследовательский порог, а не оптимальная общая норма. Данные опровергают принцип «чем больше, тем лучше» и отличаются от рандомизированного испытания пробиотика.
При воспалительных заболеваниях кишечника низкая численность в некоторых когортах может отражать воспаление, слизь, диету, лекарства и отбор материала. Это не самостоятельная диагностика и не универсальный дефицит. Desai и соавторы (2016) показали, как нехватка клетчатки в определённом мышином сообществе усиливала расходование слизи и восприимчивость к патогену. Ganesh и соавторы (2013) наблюдали усугубление Salmonella-воспаления в гнотобиотической модели с Akkermansia. Эти контекстные результаты не объявляют бактерию вредной каждому человеку, но исключают безусловную защитную трактовку. Рост крипт или сигнал LGR5 в модели не доказывает заживления язвенного колита у пациента.
Пища, лекарства и «протоколы повышения»
Полифенолы и клетчатка меняют целые сообщества. Roopchand и соавторы (2015) исследовали виноградные полифенолы у мышей на жирном рационе. Работы Anhê с клюквой также были мышиными; при сформировавшемся ожирении часть улучшений наблюдалась без снижения веса. Небольшой человеческий опыт с виноградным порошком изучал краткую пищевую интервенцию, а не универсальное назначение для Akkermansia. Важны смесь веществ, пищевая матрица и исходная диета. Превращение производных эллагитаннинов в уролитины относится к обмену сообщества, а не исключительно Akkermansia. Эллагитаннины граната и EGCG зелёного чая — разные воздействия; данные об одной полифенольной смеси не устанавливают равноценную человеческую дозу или эффект другой.
Инулин, фруктоолигосахариды и резистентный крахмал поддерживают разные ферментаторы. Доступ к эндогенному муцину не означает бесполезности пищевых волокон и не делает низковолокнистую диету оптимальной. Мышиную дозу экстракта нельзя непосредственно переносить в человеческую схему с гарантией определённой кратности роста.
Метформин изменяет микробиоту. Мышиные работы Shin и человеческие наблюдения поддерживают участие Akkermansia, но сам приём лекарства смешивает связь диабета с микробиомом. De la Cuesta-Zuluaga и соавторы (2017) отдельно сравнивали пользователей и непользователей метформина. Это не доказывает, что бактерия обеспечивает все эффекты препарата, и не служит показанием принимать его ради процента в кале.
Голодание и кетогенный рацион не имеют единого эффекта. Мышиные механистические опыты с желчными кислотами, макрофагами и термогенезом не доказывают многократного роста Akkermansia после каждого 16-часового человеческого голодания. Olson и соавторы (2018) изучали противосудорожную роль микробов при кетогенном рационе у мышей с участием Akkermansia и Parabacteroides вместе; это не протокол лечения человеческой слизи. В другой модели Newell и соавторов (2016) исходно повышенная Akkermansia уменьшалась на кетогенной диете. Направление зависит от системы.
Комплекс из экстрактов, клетчатки, голодания, метформина и клеточного препарата не становится клинически валидированным пятиступенчатым протоколом. Каждый компонент имеет несколько мишеней; важны переносимость, заболевание и сопутствующая терапия. Изменение коммерческого отчёта о микробиоме не заменяет HbA1c, удержание веса, симптомы и валидированную активность болезни. Без проверенного правила выбора тест не назначает универсальную дозу.
Регуляторный статус и безопасность
Разрешение нового пищевого ингредиента касается определённого препарата и условий применения, а не лекарственного лечения ожирения, диабета, рака или воспаления. EFSA в 2021 году оценивало пастеризованную A. muciniphila, в 2025 году — расширение на подростков. Регламент ЕС 2026/391 установил возрастные условия: максимум 2,1 × 10¹⁰ клеток в день для 12–<14 лет, 3 × 10¹⁰ для 14–<18 и 3,4 × 10¹⁰ для взрослых. Разрешённая группа исключает детей младше 12 лет, беременных и кормящих. Это регуляторные пределы, а не лечебные дозы и не пороги эффективности; маркировку проверяют по соответствующей юрисдикции.
Короткое испытание без связанных серьёзных событий не устанавливает нулевой риск, пожизненную безопасность или безопасность при тяжёлой иммуносупрессии. Важны жизнеспособность, чистота, производство, идентичность штамма и состояние хозяина. Данные пастеризата не позволяют объявить любой живой продукт безопасным при выраженном повреждении барьера. Стабильность зависит от состава, упаковки, хранения и испытаний; универсальная десятилетняя сохранность не доказана.
Подготовка и границы вывода
Материал подготовлен 8 октября 2026 года по первичным экспериментальным и клиническим публикационным записям, доступным аннотациям и отдельным доступным полнотекстовым фрагментам. Некоторые полные тексты были недоступны. Это повествовательный научный синтез, а не систематический обзор, оценка GRADE или внешнее рецензирование. Отдельно рассмотрены молекулярная активность, причинные опыты на животных, человеческие ассоциации и рандомизированные исходы. Akkermansia участвует в зависящей от контекста экологии слизи; определённые препараты дали как положительные, так и нулевые клинические результаты. Процент в кале и привлекательный рецепторный механизм не задают универсального лечения.
Частые вопросы
Разрушает ли Akkermansia защитную слизь?
Она использует муцин, но слой постоянно обновляется. Итог зависит от секреции, деградации, удаления, питания и состояния эпителия; потребление муцина само по себе не доказывает ни вреда, ни восстановления барьера.
Нужно ли повышать низкий показатель в анализе кала?
Универсального целевого процента и диагноза дефицита нет. Метод, другие бактерии, лекарства и место отбора влияют на результат; анализ кала не показывает напрямую состояние слизистого слоя.
Производит ли она бутират?
Главные прямые продукты — ацетат и пропионат. Образование бутирата возможно у бактерий-партнёров, использующих высвобождённые субстраты; наличие Akkermansia не гарантирует такой поток.
Равнозначны ли живые и пастеризованные клетки?
Нет. Пастеризованные клетки не размножаются, не колонизируют и не ферментируют после приёма. Их компоненты могут действовать, но результат одного препарата не переносится автоматически на другую форму или штамм.
Можно ли считать P9 аналогом препарата GLP-1?
Нет. P9 изучали как отдельный бактериальный белок в клеточных и животных системах. Физиологическая секреция GLP-1 не эквивалентна длительному действию лекарственного агониста рецептора.
Какие результаты получены у людей?
Небольшой пилот 2019 года дал предварительные метаболические результаты. Испытания 2025–2026 годов показывают различия: поддержание веса после диеты улучшилось в одном исследовании, а основные показатели в других не подтвердили общего эффекта. Значимы препарат, популяция и конкретный исход.
Помогает ли добавка при раке или воспалительном заболевании кишечника?
Ассоциации с ответом на иммунотерапию и результаты у мышей не доказывают пользу коммерческой добавки для лечения этих заболеваний. Контекст, антибиотики, штамм и микробное сообщество могут менять направление эффекта.