Уридин және синапстық мембрана синтезі: механизмдер мен клиникалық шектер
UMP-тің CTP, Кеннеди жолы, холин және DHA-мен байланысы; синапс модельдері мен тағамдық қоспа сынақтары нені көрсетеді және дәлелдің шегі қайда.
Нейропластикалылыққа электрлік белсенділік пен гендердің жұмысы ғана жеткіліксіз: өсіп жатқан өсіндіге жаңа мембрана, ал синапсқа липидтер, рецепторлар мен ақуыздардың үйлескен жүйесі қажет. Уридин зерттеушілердің назарын аударды, өйткені оның метаболизмі фосфатидилхолин мен фосфатидилэтаноламин синтезіне қажет CTP нуклеотидінің түзілуімен байланысты. Бұл — негізді биохимиялық байланыс, бірақ нуклеотид қорын толықтыру мен адамның жадын жақсарту арасында дәлелдеудің бірнеше дербес сатысы бар.
Уридин-5′-монофосфат, немесе UMP — рибозаның 5′ көміртегіне фосфат жалғанған уридин, яғни нуклеотид. Бос уридин — бұл фосфат тобы жоқ нуклеозид; UTP құрамында үш фосфат болады. Айырмашылық сіңуге, жасушаішілік реакцияларға және рецепторлық сигналға маңызды. Ауыз арқылы қабылданған UMP-ті дайын жасушадан тыс P2Y агонисі деуге, ал UMP, DHA және дәрумендер қоспасының оң нәтижесін тек уридинге телуге болмайды.
Синапс — мембраналар мен ақуыздар жүйесі
Пресинапстық ұшта нейромедиаторы бар везикулалар орналасады. Олардың мембраналары плазмалық мембранамен қосылып, кейін қайта қалпына келетін циклдерден өтеді; сондықтан липид алмасуы өсуге де, бар байланысты сақтауға да қажет. SNARE кешені мембраналардың қосылуына тікелей қатысады, синапсин-1 везикула қорларын ұйымдастырумен, ал синаптофизин синапстық везикулалардың мембранасымен байланысты. Бұларды бір «экзоцитоз ферменті» ретінде біріктіру дұрыс емес.
Синапстық саңылаудың екінші жағында рецепторлар мен постсинапстық тығыздық орналасады. Қоздырғыш байланыста GluA1/GluA2 бар кешендерді қамтитын AMPA рецепторлары және GluN2B кіруі мүмкін NMDA рецепторлары қаңқалық ақуыздармен бірге ұйымдасады. PSD-95 MAGUK тұқымдасына жатады және негізінен құрылымдық қызмет атқарады; тұқымдас атауы оның бұл жерде белсенді гуанилаткиназа екенін білдірмейді. Қосымша адаптерлер, соның ішінде Shank қатысатын желі рецептор кешендерін тікенектің актин цитоскелетімен байланыстырады. Сызбадағы PSD-95—Shank—актин сызығы әрбір көрші жұптың міндетті тікелей байланысын емес, ұйымдастыру желісін көрсетеді.
Фосфатидилхолин (PC), фосфатидилэтаноламин (PE), фосфатидилсерин (PS), сфингомиелин мен холестерин мембрананың қасиеттеріне әртүрлі үлес қосады. Құрамы жасушалық компартментке, синапс түріне және бөліп алу әдісіне тәуелді; барлық синапстық мембраналарға ортақ пайыздар жаңылыстырады. DHA бірнеше фосфолипид класының ацил тізбектеріне, жиі sn-2 орнына кіруі мүмкін. Бірақ DHA бар липид пен реттелген холестерин–сфингомиелин домені қосқабат ұйымының бөлек элементтері: DHA болуы аймақты автоматты түрде «липидтік рафт» етпейді.
Жаңа мембрана ауданы өсіндінің бағытын немесе қай байланыстың функционалды болатынын өздігінен анықтамайды. Өсу сигналдары, адгезия, ақуыз жеткізу, цитоскелетті қайта құру және нейрондық желі белсенділігі де қажет. Сондықтан PC, PSD-95 немесе тікенек санының артуы қызықты, бірақ әр өлшем жеке сұраққа жауап береді. Ешқайсысы берілістің электрофизиологиялық бағасын және жадтың клиникалық бағасын алмастырмайды.
Уридиннің түсуінен жасушаішілік CTP-ге дейін
Сіңу және мембрана арқылы тасымал
UMP қабылданғаннан кейін оның жолының едәуір бөлігі дефосфорлану және уридин ретінде сіңумен байланысты. Ішек фосфатазалары мен нуклеотидазалары, нуклеозид тасымалы, бауырдағы және басқа тіндердегі алмасу қатысады. Плазма концентрациясы дозадан ғана емес, химиялық түрден, өнім құрамынан, тағамнан және пайдаланылу жылдамдығынан тәуелді. Қандағы уридиннің көбеюі нейрондағы UTP-ті өлшемейді және қанша жаңа синапс пайда болғанын көрсетпейді.
Нуклеозид тасымалдаушылардың екі негізгі тұқымдасы бар. SLC29A1/SLC29A2 кодтайтын ENT1/ENT2 градиент бойынша тепе-теңдік тасымалын атқарады; бағыты концентрациямен өзгеруі мүмкін. CNT1/2/3 SLC28 тобына жатады және катион градиентін пайдалана алады. CNT1 көбіне пиримидин нуклеозидтерін, CNT2 пуриндерді, сонымен қатар уридинді тасымалдайды; CNT3 селективтілігі кеңірек. Xenopus ооциттерінде экспрессияланған рекомбинантты адам тасымалдаушыларымен тәжірибелерде CNT1/2 үшін Na⁺:нуклеозид 1:1, CNT3 үшін 2:1 болған; CNT3 H⁺-пен 1:1 қатынасында да жұмыс істей алады. Бұл — зерттелген ақуыздардың қасиеті, адамның гематоэнцефалдық тосқауылына үлесінің дайын картасы емес.
Гематоэнцефалдық тосқауылды тығыз түйіспелері бар эндотелий жасушаларының бір қабаты түзеді. Трансжасушалық жол алдымен қанға қараған мембрананы, кейін эндотелиоцит цитоплазмасын және тінге қараған екінші мембрананы кесіп өтеді; одан соң жүйке жасушасының өз мембранасы қалады. Маршрутты бір «қан–нейрон» шекарасына қысқартуға немесе дәлелсіз екі бетке бірдей тасымалдаушыларды қоюға болмайды. Уридиннің миға өтуі мен ми нуклеотидтерінің өзгеруі тәжірибелік модельдерде көрсетілген, бірақ әр қоспаның нақты адам фармакокинетикасын бермейді.
Нуклеозидтерді қайта пайдалану және de novo синтезі
Salvage жолында уридин-цитидинкиназалар UCK1/UCK2 уридинді фосфорлайды. CMPK1 мен NME тұқымдасының нуклеозиддифосфаткиназалары кейін UDP және UTP түзілуін қамтамасыз етеді. UMP, UDP және UTP бұл жерде әртүрлі негізді емес, фосфат санын білдіреді. Киназа реакциялары энергетикалық нуклеотидтерді жұмсайды және метаболизммен реттеледі; сырттан түскен уридин энергия жұмсамай мембранаға айналмайды.
Уридин + ATP → UMP + ADP — UCK1/2, EC 2.7.1.48.
UMP + ATP ⇌ UDP + ADP — CMPK1, EC 2.7.4.14.
UDP + ATP ⇌ UTP + ADP — NME/NDPK, EC 2.7.4.6.
Екінші мүмкіндік — пиримидин сақинасын de novo синтездеу. CAD кешені бастапқы реакцияларды атқарады, митохондриялық DHODH дигидрооротатты оротатқа айналдырады, UMPS UMP түзілуіне қатысады. Ересек адамның ми тінінде бұл жолдың ферменттері табылған; жасушалық тәжірибелер пиримидин алмасуын жіктелумен байланыстырады. Сондықтан жетілген ми de novo синтезінен дерлік айырылған және CTP-ті тек айналымдағы уридиннен алады деу қате. Salvage пен de novo маңызы жасуша түріне, күйіне және субстратқа қолжетімділікке байланысты өзгереді. Цитидин де CMP-ке фосфорланып, кейін CDP/CTP бере алады.
CTPS: негізді өзгерту және кері байланыс
CTP синтазалары CTPS1/CTPS2 глутаминнің амид азоты мен ATP энергиясын пайдаланып UTP-ті CTP-ге айналдырады. Бұл кезекті фосфатты жалғау емес: пиримидин негізінің химиясы өзгереді. Жиынтық реакция:
UTP + глутамин + ATP + H₂O → CTP + глутамат + ADP + Pi.
Pi — бейорганикалық фосфат. Глутаминазалық домен азотты босатады, синтазалық домен оны белсендірілген UTP-ті аминдеуге қолданады. CTP кері байланысқа қатысады; GTP глутаминге тәуелді белсенділікті реттеуі мүмкін. Адам CTPS-тері филаменттер түзе алады, олардың қызметі изоформа мен фермент күйіне тәуелді. Сондықтан «белсенді емес димер тек GTP арқылы белсенді тетрамер болады» сызбасы және барлық жағдайға ортақ Ki тым қарапайым.
Құмтышқандарда ауыз арқылы UMP берілгеннен кейін ми уридині, UTP, CTP және CDP-холиннің өзгерісі өлшенген. Бұл модельде бастапқы заттың қолжетімділігі мен метаболизм қоры арасындағы байланысты қолдайды. Бірақ UCK кинетикалық теңдеуіндегі жасушаішілік концентрация орнына плазма не жұлын-ми сұйықтығындағы уридинді қою компартменттерді араластырады. Жасушаішілік UTP артуы сол UTP сыртқа шығып, рецепторды белсендірді дегенді де білдірмейді.
Кеннеди жолы: нуклеотид фосфолипидті қалай жинауға көмектеседі
CDP-холин тармағы
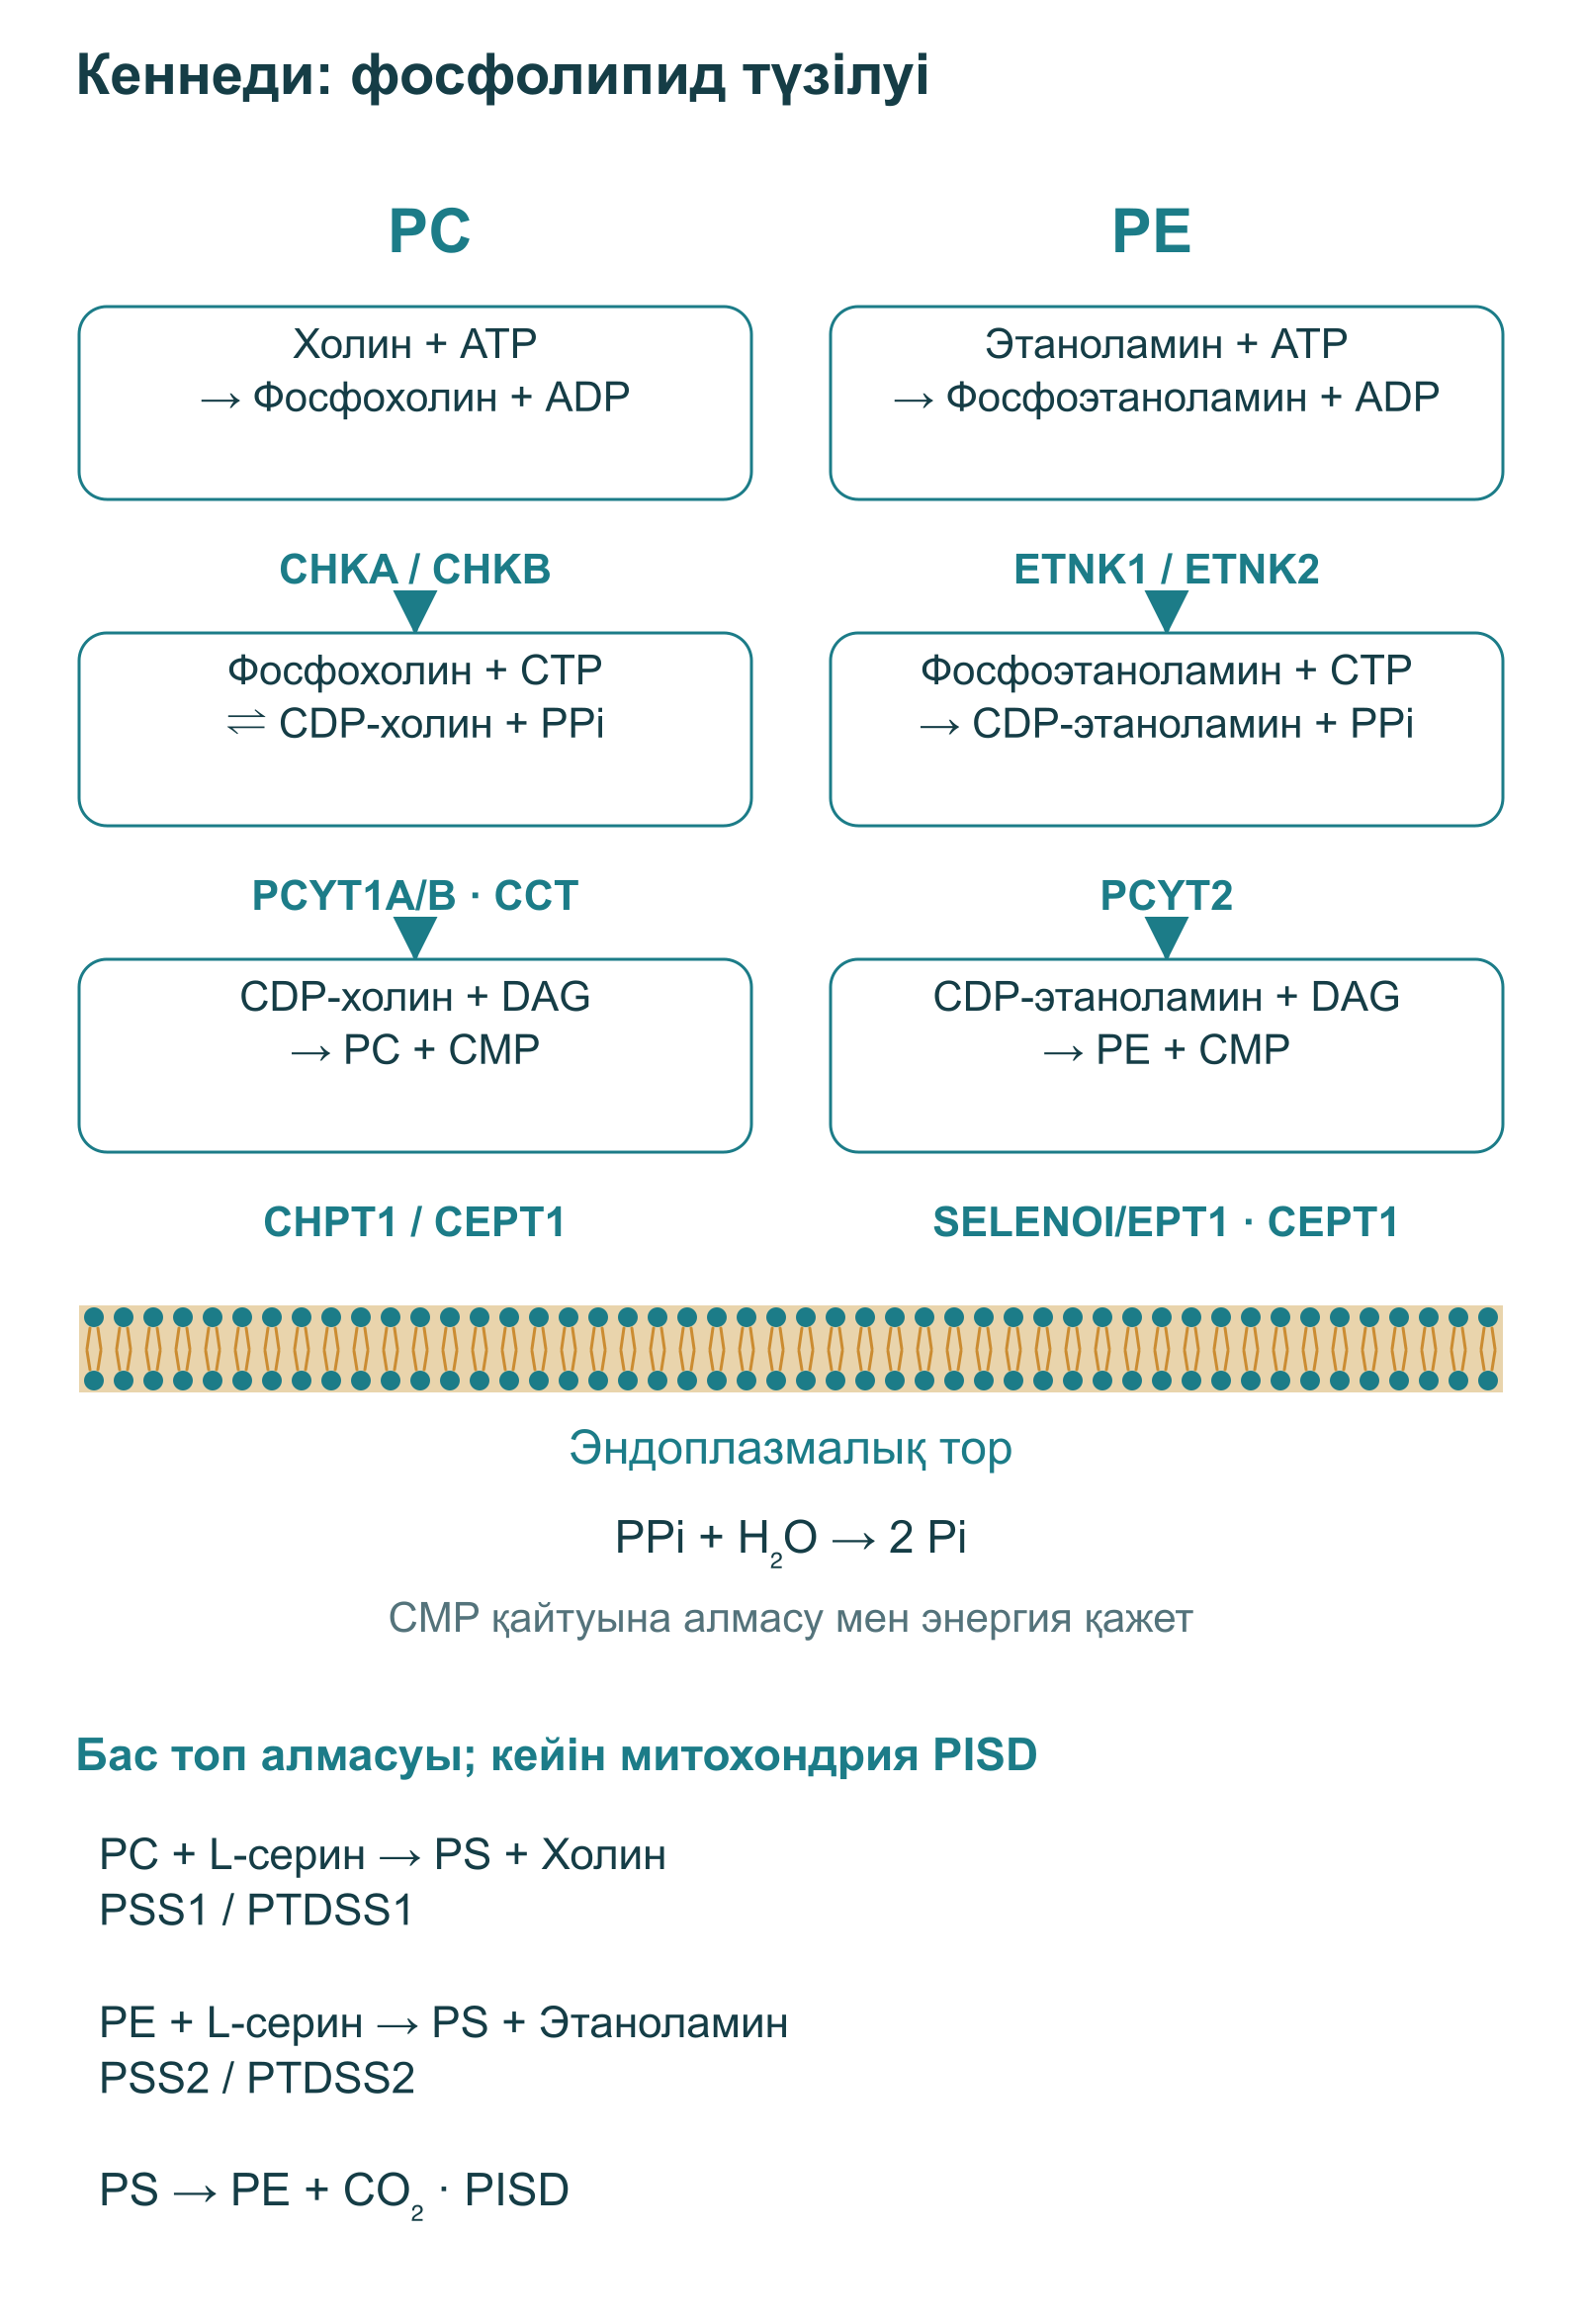
Жасушаға түскен холинді CHKA/CHKB холинкиназалары фосфорлайды. CTP:фосфохолинцитидилилтрансфераза, немесе CCT, CTP-ден цитидилил тобын фосфохолинге тасымалдайды. Түзілген CDP-холин — болашақ PC полярлық басының белсендірілген доноры. Мембраналық фосфотрансферазалар оны диацилглицеролмен, DAG-пен, эндоплазмалық торда және байланысты компартменттерде біріктіреді.
Холин + ATP → фосфохолин + ADP — CHKA/CHKB.
Фосфохолин + CTP ⇌ CDP-холин + PPi — CCT, PCYT1A/PCYT1B, EC 2.7.7.15.
PPi + H₂O → 2 Pi — бейорганикалық пирофосфатаза; ағынды ілгерілететін жеке реакция.
CDP-холин + DAG → PC + CMP — CHPT1 немесе CEPT1.
CTP соңғы фосфолипидтің бөлігі болмайды: оның цитидин бөлігі CMP ретінде шығады. CMP нуклеотид алмасуына қайта орала алады, бірақ оған ферменттік реакциялар мен энергия қажет; оны ақысыз өздігінен қалпына келетін «катализатор» ретінде салуға болмайды. Холинфосфотрансферазаның қазіргі белгісі — CHPT1. Ескі CPT1 қысқартуы карнитинпальмитоилтрансферазамен шатастырылуы мүмкін, сондықтан сызбада қолданылмайды.
Жоғары аффинді CHT1/SLC5A7 холинергиялық ұштар мен ацетилхолин синтезі үшін ерекше маңызды. Фосфолипид алмасуына CTL1/SLC44A1 сияқты басқа тасымал жолдары да қатысады. Бір CHT1 жебесі холиннің барлық ми жасушасына түсуін сипаттамайды. PC синтезден кейін тасымалданады және ацил тізбектері қайта құрылады; DHA бар DAG — ықтимал субстраттың бірі, әрбір жаңа PC үшін міндетті молекула емес.
PE, PS және мембраналық липидтер байланысы
Қатар жүретін CDP-этаноламин тармағы пиримидин қоры өзгергенде PE де өзгеруі мүмкін екенін түсіндіреді. ETNK1/ETNK2 фосфоэтаноламин түзеді, PCYT2 CTP арқылы CDP-этаноламин синтездейді, ал SELENOI/EPT1 не CEPT1 DAG-пен жинауды аяқтайды. Бас тобын белсендіру қағидасы CDP-холинге ұқсас, бірақ фермент реттелуі мен өнім таралуы бірдей емес.
Этаноламин + ATP → фосфоэтаноламин + ADP.
Фосфоэтаноламин + CTP → CDP-этаноламин + PPi.
CDP-этаноламин + DAG → PE + CMP.
Сүтқоректілерде PS полярлық бас тобын алмастыру арқылы түзіледі. PC тармағы PC + L-серин → PS + холин, PSS1/PTDSS1 қатысуымен; PE тармағы PE + L-серин → PS + этаноламин, PSS2/PTDSS2 қатысуымен жазылады. Бұл негізгі субстраттық басымдықтарды білдіреді, барлық жүйелердегі абсолютті ерекшелікті емес. PS митохондрияда PE-ге декарбоксилдене алады: PS → PE + CO₂, PISD ферментімен. Осылай липид кластары байланысады, бірақ PC кез келген мембрананың әмбебап тікелей бастапқы затына айналмайды.
CCT — мембрана күйінің сезгіші
CCT — CDP-холин жолының маңызды реттелетін сатысы. Белсенділігі субстрат қолжетімділігіне де, мембранамен әрекеттесуге де тәуелді: амфипатиялық бөлік қосқабатқа байланысып, каталитикалық орталықтың аутоингибициясын өзгерте алады. Липид құрамы, заряд және қапталу ақаулары осы ауысуға әсер етеді. Құрылымдық жұмыстар мембранаға байланысудың каталитикалық белсенділік пен CTP-ге көрінерлік аффинділікті неге өзгертетінін түсіндіреді; бұл UMP-тен кейін барлық нейронда бірдей көп еселік үдеу болады деген сөз емес.
| CCTα аймағы | Қызметі | Түсіндіру кезінде ескерілетіні |
|---|---|---|
| N-ұштық аймақ | Орналасуды, соның ішінде ядролық таралуды реттейді | CCTα-ны тек цитозоль ақуызы деуге болмайды |
| Каталитикалық аймақ | Фосфохолин мен CTP-ден CDP-холин түзеді | Жылдамдық субстраттар мен реттеуші конформацияға тәуелді |
| Мембранаға байланысатын M домені | Қосқабатпен амфипатиялық байланыс және аутоингибицияны босату | Мембрана қасиеті маңызды; бос DHA мен липидтегі DHA бірдей емес |
| Фосфорланатын C-ұштық аймақ | Мембранаға аффинділік пен реттелуді өзгертеді | Фосфорлану «толық белсенді емес» әмбебап тетігі емес |
Әмбебап аминқышқыл позициялары мен тұрақты Km орнына қанығу қағидасын түсінген пайдалы. Ең қарапайым ферменттік жағдайда v = Vmax × [S] / (Km + [S]), мұнда v — жылдамдық, Vmax — берілген жағдайдағы шекті жылдамдық, [S] — қолжетімді субстрат концентрациясы, Km — жылдамдық Vmax-тың жартысына тең болатын концентрация. Бұл жеке доза есебі емес, түсіндірмелік модель: CCT-де бірнеше субстрат пен мембраналық реттелу бар. [S] көбейгенде жылдамдық экспоненциалды өспей, шекке жақындайды. Шектеуші саты болуы уридин үнемі жалғыз шектеу дегенді білдірмейді.
Уридин, холин және DHA: тәжірибелік үштіктің мағынасы
Үш компонент алмасудың әр жеріне қатысады: уридин пиримидин қорларын, холин PC полярлық басын, DHA липид ацил тізбектерінің бөлігін қамтамасыз етеді. Осыдан бастапқы заттардың қолжетімділігін бірге арттыру идеясы туған. «Вуртман үштігі» — зерттеу тұжырымдамасы мен тәжірибелер сериясы, бекітілген клиникалық стандарт емес. «Осы үшеуінен басқа ферменттердің бәрі қаныққан» деген сөз ми алмасуының әмбебап күйін сипаттамайды.
Холин бар жем, UMP және DHA алған құмтышқандардың төрт апталық тәжірибесінде бірге берілгенде ми PC-і шамамен 45% өскен. Жеке араласулар 13–22% өзгеріс берген; басқа фосфатидтер мен кейбір ақуыздар да өзгерген. Бұл пайыздар нақты түрге, рационға, экспозицияға және тін өлшемдерін қалыптандыру әдісіне жатады. Оларды адамның мембрана қалпына келу пайызы деуге немесе барлық өзгерісті жаңа функционалды синапс синтезіне жатқызуға болмайды.
Басқа жұмыс ересек құмтышқан CA1 апикалдық дендрит тікенектерін өлшеген. DHA 300 мг/кг/тәулік және холин бар жемдегі UMP 0,5% төрт апта берілгенде тығыздық бақылаудан 36% жоғары болған; DHA жалғыз — 19%, UMP жалғыз бұл көрсеткішті елеулі арттырмаған. Бұлар жануар тәжірибесінің дозалары мен жағдайлары, адам режимі емес. Жануар саны аз, гиппокамптың нақты бөлігі таңдалған және тікенек расталған синапспен бірдей емес: жалпылау шектеулі. Ұқсас тәжірибелерде EPA мен DHA липид және ақуыз көрсеткіштерін өзгерткен, арахидон қышқылы сол әсерді қайталамаған; бұл оны «зиянды» немесе миға қажетсіз етпейді.
DHA 22:6 n−3, не 22:6 Δ4,7,10,13,16,19 деп белгіленеді: 22 көміртекті, алты cis-қос байланысы бар тізбек. Конформациялық қозғалғыштығы липид қапталуына, ақуыздармен әрекеттесуге және қосқабат қасиетіне әсер етеді, бірақ бүкіл липидтік ортаға тәуелді. Модельдік мембрананың иілу энергиясы төмендеуі тірі мида AMPA тасымалы немесе ұзақ мерзімді потенциация автоматты күшейді деген сөз емес. Жеке функционалдық өлшемдер қажет.
Синапсин-1, синаптофизин, PSD-95 және глутамат рецепторының суббірліктері байланыстың әр бөлігін сипаттайды. Гомогенаттағы ақуыз өзгерісі синтез, ыдырау, қайта таралу не тін құрамынан туындауы мүмкін. Бірнеше көрсеткіштің сәйкестігі құрылымдық гипотезаны күшейтеді, бірақ иммуноблотты жұмыс істейтін байланыстардың тікелей санағына айналдырмайды. Маман үшін маңызды шек: «жаңа синапстар» уәдесіне бір маркер артуынан күшті дәлел қажет.
Жасушадан тыс нуклеотидтер және өсу сигналдары
UTP-тің екінші рөлі бар: жасушадан тыс кейбір P2Y рецепторларын белсендіреді. Ол үшін жасушаішілік қор нуклеотидтің бөлінуімен байланысуы керек; сыртқы ферменттер концентрациясын қосымша шектейді. Бөліну механизмі мен жергілікті мөлшер жасушаға және жағдайға тәуелді. Кез келген UMP қоспасын нейрон рецепторларына тікелей ағатын UTP ретінде салуға немесе барлық болжанған арна арқылы UTP тасымалын дәлелденген деуге болмайды.
P2Y₂ ATP және UTP арқылы белсендіріледі, P2Y₄-те түрлік айырмашылықтар маңызды. Рекомбинантты жүйелерде ATP егеуқұйрық P2Y₄ агонисі, адам P2Y₄ антагонисі болған; жүйе мен өлшеу уақыты да ықпал етеді. «UTP P2Y₄-те ATP-тен 10–50 есе күшті» деген әмбебап сөйлем түр мен жағдайды көрсетудің орнына жүрмейді. Бұл сызбада UTP сигналы мен рецептор ерекшелігін белгілеу маңыздырақ.
Gq/11-мен байланысқан тармақта PLCβ PIP₂ + H₂O → IP₃ + DAG реакциясын катализдейді. IP₃ эндоплазмалық тордың IP₃ рецепторына әсер етіп, Ca²⁺-ті цитозольге босата алады. DAG пен Ca²⁺ дәстүрлі PKC изоформаларын бірге белсендіреді; басқалары өзгеше реттеледі. Бұл рецептор сигналының тізбегі, ауыз арқылы UMP адамның гиппокампында бүкіл каскадты тудырады деген дәлел емес.
Pooler тәжірибелерінде NGF жүйке өсу факторымен жіктелген PC12 қолданылған. Уридин өсінді өсуі мен тармақталуын арттырған; UTP әсердің бір бөлігін қайталаған, апираза мен P2 рецепторларына әсер ететін заттар басқан. Бұл метаболизммен қатар сыртқы нуклеотид сигналдарының қатысуын қолдайды. Бірақ сурамин, PPADS және Reactive Blue 2 нақты рецептор түрін жалғыз анықтауға жеткілікті селективті емес. Гемихолиний-3 те Кеннедидің бір реакциясын шартсыз таңдамалы өшіретін зат емес: ол холин тасымалына әсер етеді, түсіндіру концентрация мен жүйеге тәуелді.
Arthur тәжірибелері ATPγS, PC12, сезімтал нейрондар және генетикалық тәсілдермен P2Y₂ мен TrkA-ны зерттеген. Жіктелудің күшеюі NGF болғанда P2Y₂ мен NGF/TrkA әрекеттесуіне байланысты болған. Бұл «уридин TrkA мен TrkB-ні нейротрофинсіз белсендіреді» деген жалпы сценарийді растамайды. Дұрыс сызба NGF сигналын шартты күшейтуді, қоспаның NGF не BDNF-ті алмастыруын емес, көрсетеді.
TrkA-дан кейін жасуша өсуі мен тіршілігіне қатысатын Ras—Raf—MEK—ERK және PI3K—Akt тармақтары бар. c-Fos және Egr1 ерте гендері, mTOR, GSK3β, MAP1B/tau микротүтікше ақуыздары және өсу конусының актині пластикалылықтың кең биологиясына жатады. Оларды тізу әрбір саты UMP тәжірибесінде өлшенді немесе клиникалық әсерді тудырады дегенді дәлелдемейді. Сызбада нақты жұмыстар қолдаған байланыстар жалпы өсу контекстінен бөлінген; ойдан шығарылған фосфорланатын қалдық нөмірлері жоқ.
Дофаминдік модельдер: байқау және болжамды механизм
Wang жұмысында кәрі егеуқұйрықтар алты апта 2,5% UMP бар жем алған. Стриатумдағы дофамин бөлінуі микродиализбен өлшенген; күшею калиймен ынталандыру жауабына қатысты. Ол медиатордың бастапқы деңгейінен, рецептор белсенділігінен және психостимулятордан кейінгі адам күйінен өзгеше. Модельдегі бастапқы бөліну өзгермесе де, адамдарда қозу, өзара әрекеттесу немесе басқа жағымсыз әсер жоқ екеніне кепіл емес.
Везикулалардың дамыған мембрана жүйесі медиатор қорына және бөлінуіне ықпал етуі мүмкін, бірақ микродиализ VMAT2 мөлшерін немесе кванттық қорды тікелей өлшемейді. Сондықтан «UMP → VMAT2 көбірек → D₁/D₂ қалыпқа келеді» гипотеза болып қалады; рецептор тығыздығы 15–25% өсті дегенді бастапқы мақала сілтеген жұмыс растамайды. Дофамин рецепторлары әр онжылдықта бірдей пайызбен азаяды деу де адамның жеке шаршауы мен ынтасын түсіндіруге жарамайды.
Басқа жұмыста егеуқұйрық стриатумының бір жағы 6-OHDA арқылы жартылай зақымдалған. UMP пен DHA нейротоксиннен бұрын басталған; қосынды амфетамин туғызған айналуды азайтып, зақымдалған жақтың дофаминдік көрсеткіштерін өзгерткен. Дизайнда алдын алу бөлігі бар, ол үдемелі Паркинсон ауруын толық қайталамайды. Тирозингидроксилаза (TH) белсенділігі немесе ақуызы артуы қара заттағы нейрон саны сақталғанын дәлелдемейді. Осы жұмысты ротенон моделі, I кешенін қалпына келтіру немесе паркинсонизмді клиникалық емдеуге таратуға болмайды.
Тәжірибелердің практикалық құндылығы — мембрана алмасуы мен сигнал беруге қатысты тексеруге болатын сұрақтар қоюда. Олар UMP-ті «дофаминдік сарқылу» үшін тағайындауға, дәріні тоқтатуға немесе стимулятордан өздігінен қалпына келуге негіз емес. Мұндай шағымда дәрілік жүктеме, ұйқы, көңіл күй, заттарды пайдалану және неврологиялық жағдайды анықтау маңызды; биохимиялық гипотеза диагностиканы алмастырмайды.
Альцгеймер ауруы: мембрана бастапқы заттары неге зерттелді
Terry мен Scheff-тің өлімнен кейінгі зерттеулері синапстық көрсеткіш төмендеуін когнитивтік бұзылыспен байланыстырған және ерте сатыда өзгерістер тапқан. Бұл синапстарды қолдау қызығушылығын түсіндіреді, бірақ аурудың бастапқы себебін анықтамайды. Амилоид пен tau патологиясы, қабыну, тамыр факторлары, энергия алмасуы және байланыс жоғалуы әрекеттеседі; синапс санымен корреляция басқа механизмдерді жоққа шығармайды. Бір шағын топтың корреляция коэффициенттері әмбебап себептілік өлшемі емес.
Жеңіл когнитивтік бұзылыс (MCI) — себептері әртүрлі клиникалық синдром, продромалық Альцгеймердің синонимі емес. LipiDiDiet когнитивтік белгілер мен растайтын деректерді біріктірген продромалық ауру критерийлерімен адам таңдаған. Даму ерте байланыс дисфункциясын, тікенек өзгерісін, кейінгі атрофия мен нейрон жоғалуын қамтуы мүмкін, бірақ әр адамға бірдей анықталған ұзақтығы жоқ. Сызба барлық MCI-де CTP тапшылығы бар немесе қоспа жасуша өлімін кері қайтарады деп ұйғармайды.
Зерттелген кешеннің нақты құрамы
Клиникалық бағдарлама Fortasyn Connect бар Souvenaid көпкомпонентті тағамдық қоспасын зерттеген. Уридин — оның бір ғана ингредиенті. Кесте күніне бір рет қолданылған 125 мл зерттеу порциясын көрсетеді; бұл жеке тағайындаулар емес, араласудың сипаттамасы. Химиялық түрлердің мөлшерін, UMP тұзының массасын, холиннің массасын және холин көзінің массасын бір-бірінің орнына қолдануға болмайды.
| Компонент | Порциядағы мөлшер | Биохимиялық контекст |
|---|---|---|
| UMP | 625 мг | Пиримидин бастапқы затының көзі; тікелей UTP агонисі емес |
| DHA | 1200 мг | Мембрана липидтерінің ацил тізбектері |
| EPA | 300 мг | Липид алмасуы және сигнал медиаторларының бастапқы заттары; қоспа әсерінің дәлелденген себебі емес |
| Холин | 400 мг | Фосфохолин және ацетилхолин алмасуы |
| Фосфолипидтер | 106 мг | Тағамдық қоспа компоненттері |
| Фолий қышқылы | 400 мкг | Біркөміртектік алмасу |
| B₁₂ дәрумені | 3 мкг | B₁₂-тәуелді метионинсинтаза |
| B₆ дәрумені | 1 мг | Соның ішінде транссульфурация ферменттері |
| E дәрумені | 40 мг α-TE | Антиоксидант алмасуы; α-TE — α-токоферол баламалары |
| C дәрумені | 80 мг | Суда еритін антиоксидант жүйесі |
| Селен | 60 мкг | Селенопротеиндер, оның ішінде антиоксидант қорғаныс ферменттері |
Соңғы баған нутриенттің ықтимал қызметін түсіндіреді. Дайын қоспа сынағы қай компонент әсерге қажет екенін анықтамайды, холинді цитиколинге не α-GPC-ге алмастырғанда нәтиже қайталанатынын дәлелдемейді. Тамақтануы бұзылған науқасқа энергия мен ақуыз жеткізу — бөлек клиникалық мәселе: нақты зерттеу мақсатына арналған өнім толық нутритивтік бағалауды алмастырмайды.
Сынақтардың оң және теріс нәтижелері
Souvenir I арнайы дәрі қабылдамаған жеңіл Альцгеймері бар 225 науқасты қамтыған. 12 аптадан кейін кейінге қалдырылған сөздік еске түсіру оң болған, бірақ екінші қатарлас бастапқы көрсеткіш, өзгертілген ADAS-cog, артықшылық көрсетпеген. Бұл біркелкі емес нәтиже, жалпы когнитивтік қалпына келудің дәлелі емес.
Souvenir II 259 науқаста 24 апта жүргізілген. NTB жад доменінің айырмашылығы статистикалық мәнді, бірақ шағын; жалпы жиынтық NTB дәл сондай сенімді нәтиже бермеген. Дельта диапазонын қамтитын ЭЭГ байланыс өзгерістері қосымша функционалдық бақылаулар болған. ЭЭГ синапс санын тікелей көрсетпейді, сондықтан «синапстық желі ыдырауының баяулауы дәлелденді» деректен күштірек тұжырым.
S-Connect стандартты дәрі алып жүрген жеңіл не орташа деменциясы бар 527 науқасты 24 апта зерттеген. Бастапқы ADAS-cog артықшылығы табылмаған. Теріс нәтиже осы топтағы қолдануды шектейді, бірақ тиімсіздік тек нейрон өлімінен немесе тірі «нысана» болмауынан дегенді дәлелдемейді. Авторлар кейінгі сатыдағы жеткіліксіз әсерді дәріге қосымша әсер болмауынан ажырату мүмкін еместігін талқылаған.
| Сынақ | Топ және мерзім | Негізгі нәтиже | Қорытынды шегі |
|---|---|---|---|
| Souvenir I | 225; жеңіл Альцгеймер; 12 апта | Кейінге қалдырылған еске түсіру оң; қатарлас бастапқы ADAS-cog артықшылықсыз | Бастапқы когнитивтік нәтижелердің бәрі сәйкес емес |
| Souvenir II | 259; жеңіл Альцгеймер; 24 апта | NTB жады: p = 0,023; шағын әсер | ЭЭГ және ақуыз гипотезалары синаптогенездің тікелей дәлелі емес |
| S-Connect | 527; емдегі жеңіл/орташа деменция; 24 апта | Бастапқы ADAS-cog мәнді артықшылықсыз | Бұл топта емге қосымша әсер расталмаған |
| LipiDiDiet, 24 ай | 311 рандомизацияланған; продромалық ауру | Бес компонентті бастапқы NTB мәнді әсерсіз; кейбір екінші көрсеткіштер оң | Таңдалған екінші көрсеткіш теріс бастапқыны алмастырмайды |
| LipiDiDiet, 36 ай | Сол когортаның жалғасы | NTB, жад, CDR-SB және МРТ айырмашылықтары қолайлы | Ұзарту, бақылаудан шығу және цензуралау сақтықты талап етеді |
LipiDiDiet-тің 24 айлық талдауында бастапқы NTB статистикалық мәнділікке жетпеген. Екінші талдауларда CDR-SB мен гиппокамп атрофиясы айырмашылықтары болған, бірақ деменция диагнозының жиілігі елеулі артықшылық көрсетпеген. Бұл зерттеуді жалғастыруға себеп, деменцияның алдын алу дәлелденді деуге емес.
36 айлық жалғасында аралас модель бес компонентті NTB топаралық айырмашылығын 0,212 Z-бірлік, 95% СА 0,044–0,380, p = 0,014 деп бағалаған. Оның нашарлауын салыстырмалы азайту 60%; CDR-SB үшін 45%, жад үшін 76% болған. Гиппокамп, бүкіл ми және қарынша көлемінің өзгеру қарқынының салыстырмалы айырмашылықтары 33%, 22% және 20%. Бұлар таңдалған көрсеткіш өзгерістері, алдын алынған деменция немесе қалпына келген нейрон пайыздары емес.
311 рандомизацияланғанның 162-сі 36 айды аяқтаған, 81 адамның соңғы дерегі цензуралаудан кейін тиімділік талдауының шарттарына сай болған. Бойлық модель тек осы 81-мен шектелмей, қолжетімді бақылауларды пайдаланған; бірақ ашық өнім не дәрі басталғаннан кейін дерек шығару және қатысушы жоғалту сенімділікке маңызды. Сол когортаны ұзарту тәуелсіз жаңа сынақ емес. Саты мен уақыт айырмашылықтары әмбебап нақты «терапиялық терезе» шекарасын бермейді.
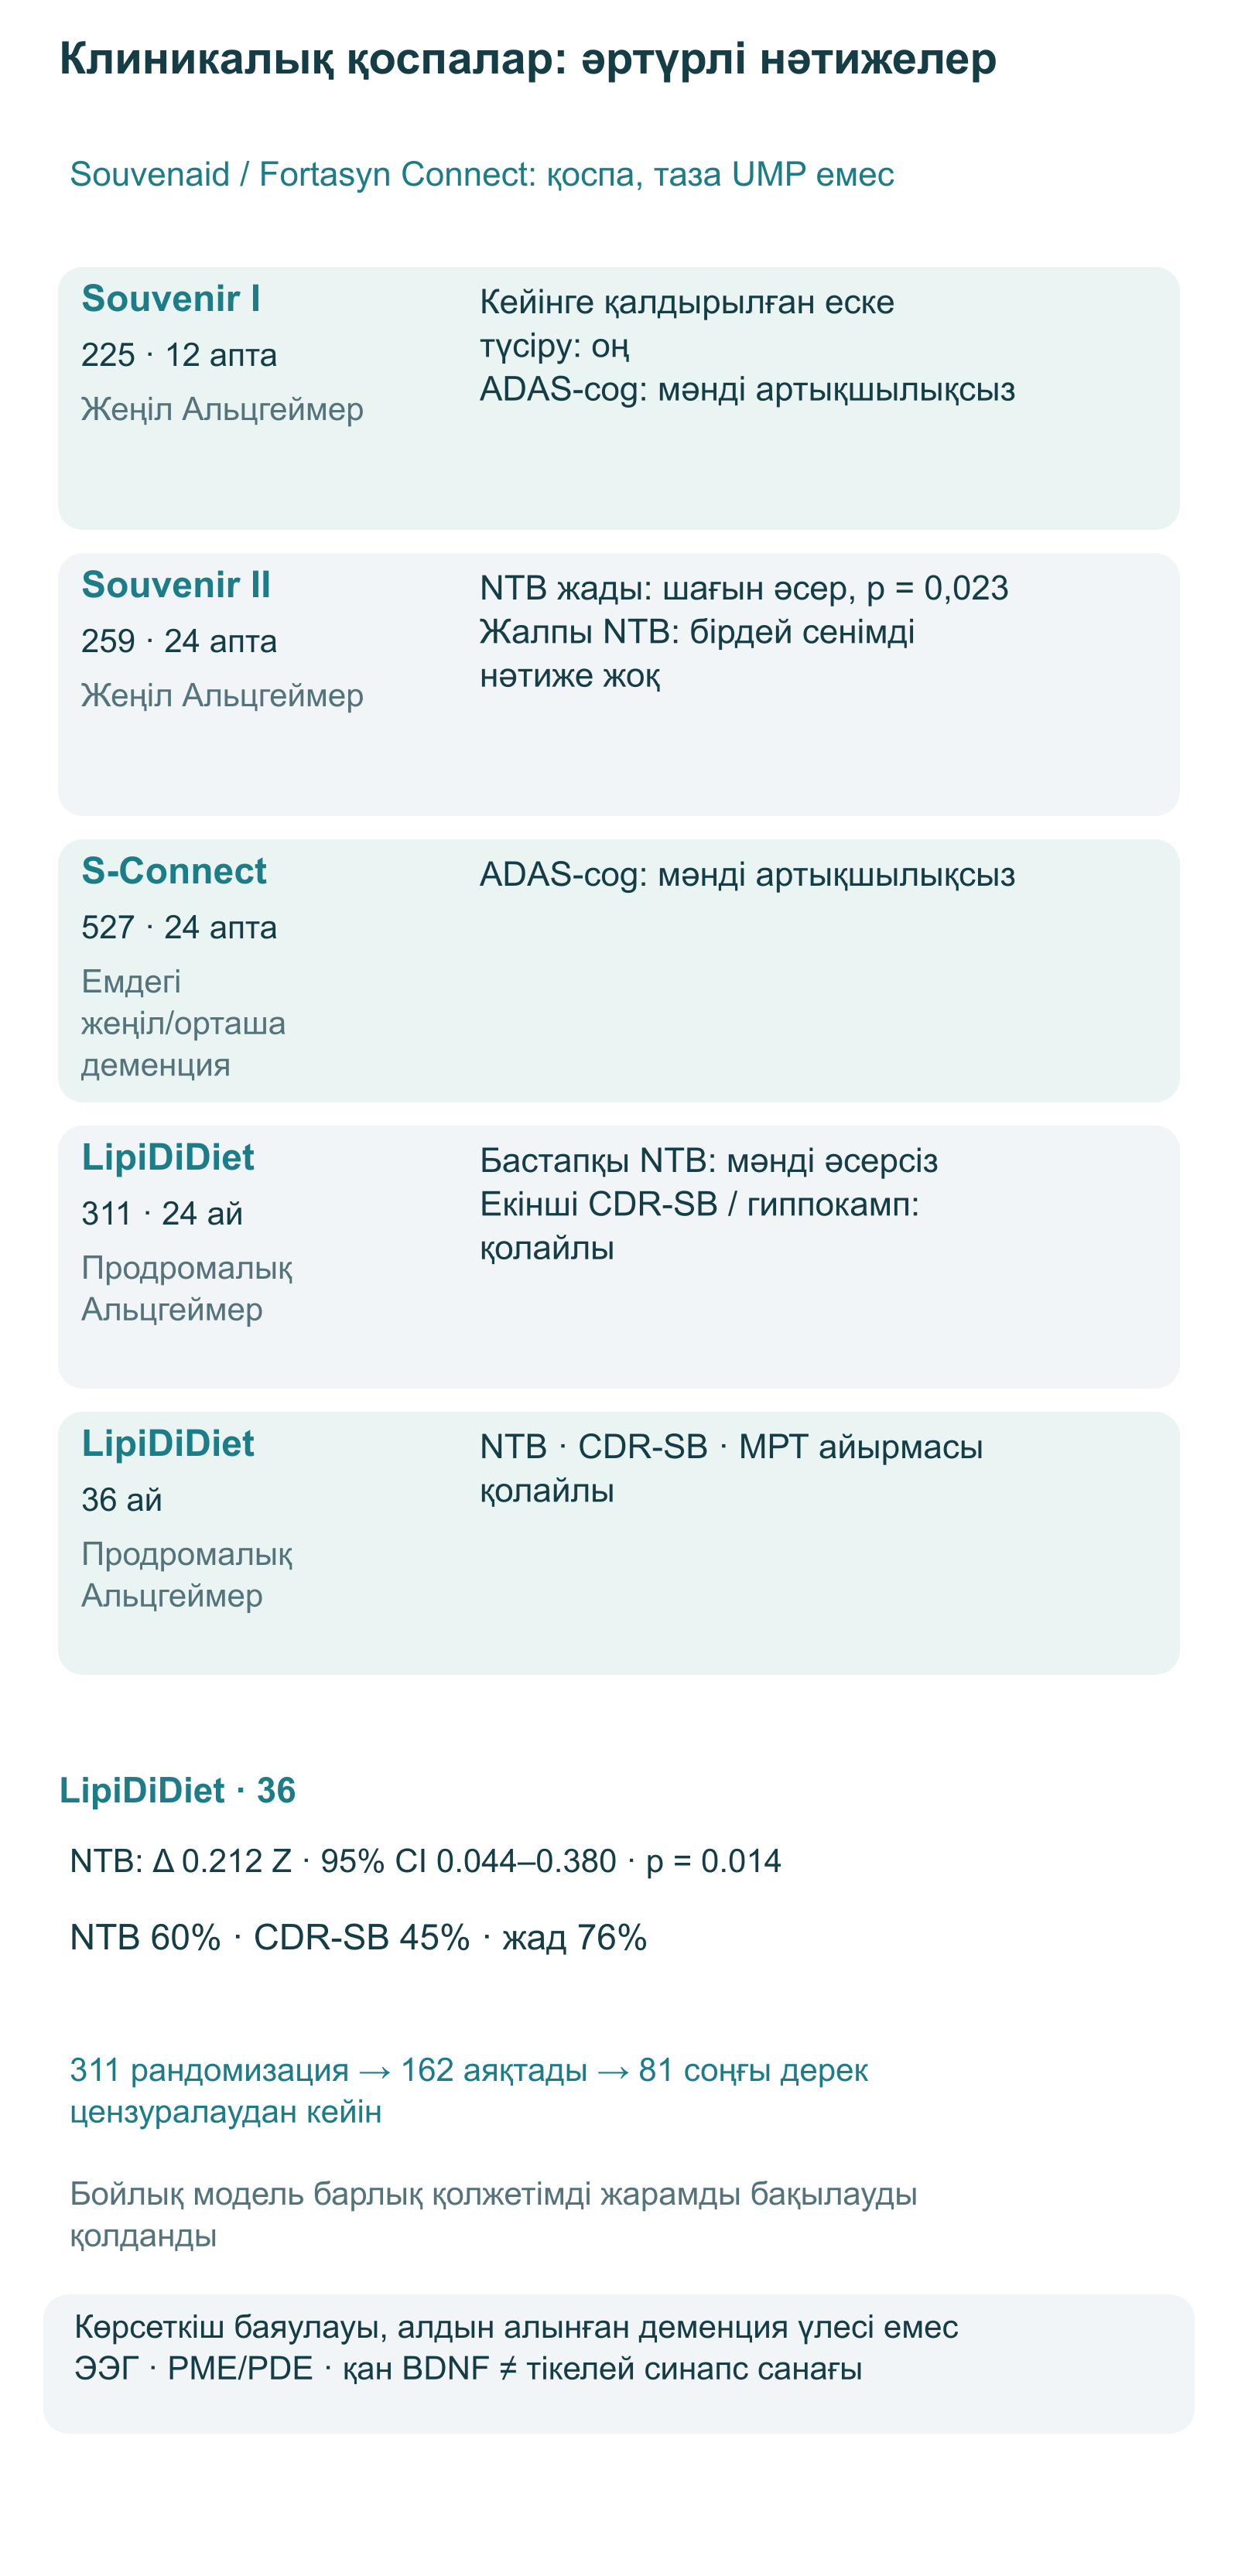
Науқастардағы метаболизм механизміне арналған шағын зерттеу де бар: қоспаның төрт аптасынан кейін магниттік-резонанстық спектроскопия фосфомоноэфир/фосфодиэфир қатынасын, PME/PDE, және холин бар сигналдарды өзгерткен. Бұл липид синтезі мен ыдырауының жанама көрсеткіші, мембрана құрамын не байланыс санын тікелей өлшеу емес. 34 адам енгізіліп, 33-інің дерегі талданған; биологиялық белсенділікке мәлімет береді, бірақ клиникалық тиімділік сынағын алмастырмайды.
Кейінгі басқа нуклеотид қоспалары да таза UMP сынағы емес. Мысалы, физикалық тұрғыдан дербес қарт адамдардың үш топтық зерттеуінде ашытқы өнімі, монофосфатты нуклеотид қоспасы және плацебо салыстырылып, когнитивтік тест, физикалық көрсеткіштер мен BDNF бағаланған. Оң өзгерістер болса да, уридин үлесі басқа ингредиенттерден бөлінбейді. Мақала атауындағы «neurogenesis» сөзіне қарамастан, қандағы BDNF адам миында жаңа нейрон немесе синапс түзілгенін тікелей өлшемейді.
Түрлер, фармакокинетика және дозалау шектері
UMP, бос уридин және триацетилуридин (TAU, uridine triacetate) химиялық және фармакокинетикалық тұрғыдан әртүрлі. TAU-дың үш ацетил тобы липофильдігін арттырады; эстеразалар оларды алып тастап, уридин түзеді. Экспозицияның жоғары болуы когнитивтік тиімділік жоғары дегенді немесе есепсіз түр ауыстыруға болады дегенді білдірмейді.
| Түр және жол | Белгілі дерек | Когнитивтік қолдануға анықталмағаны |
|---|---|---|
| Ауыз арқылы UMP | Тағамдық қоспаларда қолданылған; жолы дефосфорлану және уридин алмасуымен байланысты | Әмбебап 80% абсолютті биожетімділік, бірдей Tmax 60–90 минут және кез келген өнімнің нақты ми экспозициясы |
| Тіл астына UMP | Қоспаларда ұсынылады; атауы шырышты қабаттан сіңуді кепілдемейді | Ауыз арқылыдан артықшылық, Tmax 15–25 минут және 2–3 есе төмен дозаның баламалылығы |
| Ауыз арқылы бос уридин | Фармакокинетикасы зерттелген; жоғары дозада іш өтуі мүмкін | Әмбебап жартылай шығарылу уақыты және жадқа оңтайлы доза |
| Ауыз арқылы TAU | Зерттелген өнімде уридин Cmax/AUC-і эквимолярлы бос уридиннен жоғары | UMP-пен өзара алмастыру және сау миға дәлелденген пайда |
Сау еріктілердегі шағын зерттеуде TAU бар өнім уридин шыңын 1–2 сағатта берген, Cmax пен AUC эквимолярлы уридиннен шамамен төрт есе жоғары болған. Бұл нақты құрам мен зерттеу дозасының параметрлері. Cmax — ең жоғары концентрация, AUC — бақылау кезеңіндегі жиынтық экспозиция, Tmax — шыңға жету уақыты; жартылай шығарылу қисықтың басқа бөлігіне қатысты. Tmax-ты әсер ұзақтығымен шатастыруға болмайды.
Цитиколиннің адамдағы тәжірибесі түрлік ерекшелікті көрсетеді: қабылдағаннан кейін плазма холині мен уридині өскен, цитидин өте төмен қалған. Бұл холиннің кез келген түрі уридинді арттырады деген сөз емес: α-GPC мен фосфатидилхолин құрылымы бөлек. Айналымдағы метаболит өлшемдері цитиколиннен жаңа синапстарды да дәлелдемейді.
Ақыл-ой жүктемесі, созылмалы шаршау, астения немесе «стимулятордан кейін қалпына келу» үшін дәлелденген әмбебап UMP режимі жоқ. Танымал 250–300, 500–700 не 600–1000 мг аралықтары биохимиялық сызбаға сәйкес келгені үшін емдік доза болмайды. Келтірілген когнитивтік сынақтардың нақты тәуліктік UMP экспозициясы дайын көпкомпонентті өнімді сипаттайды. Ол жеке капсула, басқа қосынды не тіл асты жолының тиімділігін анықтамайды.
«Курс кемінде 6–12 ай, әсер тек 8–12 аптадан соң» деген ортақ ереже де бекітілмеген. Зерттеулер аптадан жылға дейін әртүрлі мерзім мен соңғы көрсеткішті қолданған. Мембрана айналымы жеке клиникалық жауап уақытын есептеуге мүмкіндік бермейді. Дәрігерге мұның мәні — лайықты науқаспен нақты зерттелген араласуды талқылау, болжамды липид жылдамдығынан ем құру емес.
Метилдену, бауыр және қауіпсіздік
PEMT және біркөміртектік алмасу
CDP-холиннен бөлек PC PE-ні метилдеу арқылы түзіледі. Бауырдың PEMT жолы ерекше маңызды: PE + 3 SAM → PC + 3 SAH. SAM — S-аденозилметионин, метил доноры; SAH — S-аденозилгомоцистеин, тасымал өнімі. Үш кезекті метилдеу этаноламин басын холинге өзгертеді, май қышқылын қоспайды. Бауырдағы қызметін нейрон PC синтезінің негізгі жолы деп автоматты атауға болмайды.
Метионин циклінде метионин SAM-ға айналады, метил берген соң SAH түзіледі, оның алмасуы гомоцистеинмен байланысты. B₁₂-тәуелді MTR метионинсинтазасы гомоцистеинді метионинге қайта метилдеуге 5-метилтетрагидрофолатты пайдаланады. Бауыр мен бүйректе бетаинге тәуелді BHMT тармағы да бар. Гомоцистеиннің басқа жолы — B₆-ны пиридоксальфосфат ретінде қолданатын CBS және CTH арқылы транссульфурация, цистатионин, кейін цистеин түзілуі. B₆-ны фолат/B₁₂-тәуелді қайта метилдеудің тікелей кофакторы ретінде салуға болмайды.
SAH метилтрансфераза реакцияларын тежеуі мүмкін және оның алмасуы гомоцистеин концентрациясымен байланысты. Бірақ 10–12 мкмоль/л деңгейі фосфолипид синтезін «сөндіретін» дәлелденген шек емес. Гомоцистеиннің нейрон, рецептор және эндотелийге тәжірибелік әсері де ондай клиникалық тетік бермейді. B₁₂ не фолат тапшылығын түзету дербес маңызды, UMP-пен жоғары дозалы дәруменнің міндетті синергиясын растамайды.
Катаболизм және метаболизм шектеулері
Уридин пиримидинге жатады, оның негізі зәр қышқылына апаратын пурин жолымен жүрмейді. Уридинфосфорилаза урацил мен рибозо-1-фосфат түзеді; DPYD, DPYS және UPB1 урацил, дигидроурацил және N-карбамоил-β-аланинді кезекпен өзгертеді. Соңғы жиынтық реакция: N-карбамоил-β-аланин + H₂O → β-аланин + CO₂ + NH₃. Физиологиялық pH-та азот көбіне аммоний түрінде; оның шығарылуы мен β-аланиннің тағдыры бөлек үдерістер. Тимин басқа көміртек өнімін, β-аминоизобутиратты береді; барлық пиримидиннің соңғы метаболиті бірдей емес.
Зәр қышқылының тікелей түзілмеуі подаграсы бар әр адамға қоспаның қауіпсіздігін дәлелдемейді. Өнімге, қатар ауруға және дәріге қатысты клиникалық дерек қажет. «Уытсыз» деу де жоғары метаболит концентрациясы, бауырда пайдаланылудың бұзылуы немесе тұқым қуалайтын катаболизм ақауы маңызды емес деген сөз емес.
Тышқандарға уридинді 400 мг/кг/тәулік 16 апта беру бауыр майының жиналуымен және глюкозаға төзімділіктің бұзылуымен қатар жүрген. Инсулин сигналы, FABP1 және FOXO1 O-GlcNAc-модификациясы қарастырылған; бұл гепатоцит P2Y арқылы әмбебап дәлелденген механизм емес. Жағдай адамдағы тағамдық қоспа сынағынан өзгеше, мг/кг-ды тура аудару адам қаупінің шегін бермейді. Сонымен бірге жағымсыз әсер тек 1–2 г/кг-нан жоғары немесе кез келген 250–1000 мг-ды жылдар бойы қабылдау қауіпсіз деуге болмайды.
Онкология және дәрілік әрекеттесу
Ісік жасушаларының нуклеотид алмасуына тәуелділігі назарды қажет етеді, бірақ кез келген онкологиялық анамнезде уридинге абсолютті тыйымды өздігінен бекітпейді. Фторпиримидиндерде жағдай нақтырақ: уридин триацетаты 5-фторурацил/капецитабин артық дозасында немесе ерте ауыр уыттылығында дәрілік антидот ретінде қолданылады. Шұғыл көрсеткіште уақыт, әдетте енгізу біткеннен кейінгі 96 сағат, шешуші. Мұны медицина тобы жүргізеді, кәдімгі UMP қоспасына көшіруге болмайды.
Уытты метаболитке қарсы әсер уридин өнімін ісік емі кезінде өз бетінше қабылдауды онкологпен талқылау керектігін білдіреді. «Мембрананы қолдау» да, пиримидин мен пуриннің айырмашылығы да дәрілік әрекеттесуді жоймайды. Жүктілік, емізу, балаларда когнитивтік қолдану және ауыр ағзалық жеткіліксіздік үшін жалпы режим ұсынуға дерек жеткіліксіз. Нақты қоспаның жақсы көтерімділігі таза UMP не TAU-дың осы топтардағы толық қауіпсіздік сипаты емес.
Маман бұл білімді қалай қолданады
«Мембранаға арналған стек» таңдаудан емес, клиникалық міндеттен бастау керек. Жад шағымында басталуы мен өзгеруін, күнделікті қызметін, антихолинергиялық не седативтік дәрілерін, ұйқы, көңіл күй және тамақтануды анықтайды. Қажет болса неврологиялық және нейропсихологиялық бағалау жасалады; продромалық Альцгеймер күдігі лайықты диагностикалық контекст талап етеді. Шаршау, ұмытшақтық және MCI өзара алмастырылатын диагноз емес.
Содан кейін нақты өнім зерттелген араласумен салыстырылады. Химиялық түр, UMP мөлшері, тұз не белсенді зат массасы, холин мен май қышқылдары, қосымша дәрумен, жалпы тағам және дәрілер маңызды. Дайын қоспаны, жеке қоспалар жинағын және биожетімділігі жоғары TAU-ды тең деуге болмайды. Компоненттер қабылданып жүрген өнімді қайталауы мүмкін; метаболизмді «күшейту» дерексіз доза арттыруға негіз емес.
| Практикалық сұрақ | Мақала беретін білім | Негіздемейтін қорытынды |
|---|---|---|
| Уридин неге маңызды? | Salvage, CTP және липид алмасуының байланысы | Шағыммен «ми уридин тапшылығы» диагнозын қою |
| Сынақ кімге сәйкес? | Альцгеймердің нақты топтары мен қоспалары | Барлық MCI, шаршау не стимулятор салдарын емдеу |
| Пайданы қалай бағалау? | Лайықты жағдайда клиникалық тест пен қызмет | Сезіну не қандағы BDNF бойынша жаңа синапс санау |
| Қандай талдау керек? | Көрсеткішпен зерттеу, соның ішінде тағам тапшылығы | UMP титрлеуге әмбебап панель |
| Қашан дәрілік сақтық керек? | Ісік емі мен өнім құрамына назар | UMP-ті өздігінен антидот ету |
Гомоцистеин, омега-3 индексі және hs-CRP жеке клиникалық сұрақтарға жауап береді, бірақ уридиндік «синаптогенезді» бақылаудың валидтелген жүйесі емес. Гомоцистеин <7–8 мкмоль/л, омега-3 индексі >8–11% және hs-CRP <1 мг/л мақсаттарын міндетті UMP хаттамасы деуге болмайды. Талдау адамның күйі мен диагностика міндетіне байланысты; бір маркерді қалыпқа келтіру когнитивтік әсер кепілі емес.
Дәрігер мен науқас зерттелген қоспаны талқыласа, күтулер өлшенген нәтижелерге, әсер шамасына және белгісіздігіне қатысты болуы керек. Тамақтану, нақты тапшылықты түзету, ұйқы, қозғалыс және тамыр факторларымен жұмыс дербес міндет болып қалады. Механизмі қисынды қоспа бұл шараларды немесе анықталған ауру емін алмастырмайды.
Уридин алмасуы пластикалылықтың материалдық жағын түсіндіреді: нуклеотид қолжетімділігі липид синтезімен байланысты, сыртқы нуклеотидтер сигналға қатыса алады. Мембрана мен тікенек туралы ең тікелей дерек тәжірибелік жүйелерден; адам сынақтары көбіне нақты көпкомпонентті араласуға қатысты және біркелкі емес. Осы айырмашылық биохимияны механизмді түсіндіруге, зерттеуді дұрыс оқуға және ми қалпына келді деп уәде бермей клиникалық мүмкіндікті талқылауға көмектеседі.
Байланысты тақырыптар: холин, бауыр және нейромедиатор алмасуы, EPA және DHA: алмасу, таңдау және қауіпсіздік.
Жиі қойылатын сұрақтар
Уридин адамда жаңа синапс түзілгенін дәлелдей ме?
Жоқ. Липид, ақуыз және дендрит тікенегін тікелей байқау көбіне жасуша мен жануар модельдерінен. Адам сынақтары негізінен көпкомпонентті қоспаларға қатысты; когнитивтік тест, ЭЭГ және спектроскопия жаңа байланысты тікелей санамайды.
Жеке UMP, холин және DHA клиникалық қоспаны қайталай ма?
Олар липид алмасуының әр бөлігіне қатысады, бірақ өздігінен құрастырылған комбинацияның клиникалық баламалылығы анықталмаған. Өнімде EPA, фосфолипид, дәрумен және селен де болған. Холин түрін немесе UMP-ті TAU-ға ауыстыру араласуды өзгертеді.
UMP, уридин және TAU бірдей ме?
Химиялық түрлері бөлек. UMP-де фосфат бар, бос уридинде жоқ; TAU-да үш ацетил тобы бар, олар алынғанда уридин түзіледі. Фармакокинетика айырмасы өзара алмастыруды не когнитивтік артықшылықты бекітпейді.
Жад немесе стимулятордан қалпына келуге қандай доза керек?
Әмбебап дәлелденген доза жоқ. 625 мг UMP нақты қоспа порциясын сипаттайды; жануар дозасы адам режимі емес. Стимулятордан кейінгі шағым ұйқы, дәрі, заттарды қолдану және психоневрологиялық күйді бағалауды қажет етеді.
LipiDiDiet-тегі «60%» нені білдіреді?
36 айлық талдауда бұл жиынтық NTB нашарлауын салыстырмалы азайту, CDR-SB үшін 45%. Алдын алынған деменция үлесі емес. 24 айлық бастапқы нәтиже теріс, ұзартуда бақылаудан шығу және цензуралау болған.
B₆, B₁₂ және фолаттың жоғары дозасын қосу керек пе?
Анықталған тапшылықты түзетудің жеке көрсеткіші бар; бұл UMP-пен жоғары дозаның міндетті синергиясын дәлелдемейді. B₆ фолат/B₁₂-тәуелді MTR-ға тікелей емес, транссульфурацияға қатысады. UMP титрлеуге әмбебап зертханалық мақсат жоқ.
Ісік емі кезінде уридин қауіпсіз бе?
Өздігінен қабылдауды онкологпен, әсіресе фторпиримидиндермен, талқылау керек. Дәрілік уридин триацетаты нақты уыттылықты шұғыл емдейді; кәдімгі UMP оны алмастырмайды. Онкологиялық анамнездің өзі барлық жағдайға ортақ абсолютті тыйым бермейді.
Гомоцистеин мен омега-3 индексі синаптогенезді бақылай ма?
Олардың бөлек клиникалық маңызы болуы мүмкін, бірақ уридиндік синаптогенезді өлшемейді және UMP бақылауына валидтелген панель емес. Талдау диагностика міндеті мен науқас күйіне байланысты.
Дереккөздер
- Kennedy & Weiss. The function of cytidine coenzymes in the biosynthesis of phospholipides. J Biol Chem (1956).
- Suzuki et al. Structural basis for the specificity, catalysis, and regulation of human uridine-cytidine kinase. Structure (2004).
- Smith et al. The broadly selective human Na+/nucleoside cotransporter (hCNT3) exhibits novel cation-coupled nucleoside transport characteristics. J Biol Chem (2005).
- Smith et al. Cation coupling properties of human concentrative nucleoside transporters hCNT1, hCNT2 and hCNT3. Nucleosides Nucleotides Nucleic Acids (2007).
- Pesini et al. Brain pyrimidine nucleotide synthesis and Alzheimer disease. Aging (2019).
- Lynch et al. Human CTP synthase filament structure reveals the active enzyme conformation. Nat Struct Mol Biol (2017).
- Cansev et al. Oral uridine-5′-monophosphate (UMP) increases brain CDP-choline levels in gerbils. Brain Res (2005).
- Henneberry et al. Cloning, genomic organization, and characterization of a human cholinephosphotransferase. J Biol Chem (2000).
- Lee et al. Structural basis for autoinhibition of CTP:phosphocholine cytidylyltransferase (CCT), the regulatory enzyme in phosphatidylcholine synthesis, by its membrane-binding amphipathic helix. J Biol Chem (2014).
- Structural basis for catalytic mechanism of human phosphatidylserine synthase 1. Cell Discovery (2025).
- Molecular insights into human phosphatidylserine synthase 2 and its regulation of SREBP pathways. Protein Cell (2025).