Силимарин мен силибинин: мембрана, рРНҚ және клиникалық дәлел
Құрам, стереохимия, ішілетін және көктамырлық экспозиция, мембрана, OATP1B3, егеуқұйрық Pol I/рРНҚ, редокс және фиброз. Бастапқы бауыр сынақтары, теріс нәтижелер және өзара әсер.
Құрам, стереохимия, ішілетін және көктамырлық экспозиция, мембрана, OATP1B3, егеуқұйрық Pol I/рРНҚ, редокс және фиброз. Бастапқы бауыр сынақтары, теріс нәтижелер және өзара әсер.
Силимарин — сүтті ошаған жемісінен алынатын қоспа, ал силибинин, оны силибин деп те атайды, негізінен екі флавонолигнан диастереомерінен тұрады. Бұл атаулар өзара алмастырылатын заттарды білдірмейді. Кәдімгі ішілетін экстракт, силибин–фосфатидилхолин кешені және көктамырлық силибинин сукцинаты құрамы, сіңуі, метаболизмі және экспозициясы бойынша ерекшеленеді. Бір түрдің жасушалық тәжірибедегі пайдалы әсері ошаған атауы бар барлық өнімнің тиімділігін дәлелдемейді.
Ғылыми қызығушылықты мембрана липидтерімен және сіңіру тасымалдағыштарымен әрекеттесу, рибосомалық РНҚ синтезінің тәжірибелік күшеюі, редокс-реттелу, қабыну және фиброздық жауаптардың өзгеруі түсіндіреді. Олардың дәлел күші әртүрлі. Мембрана тұрақтануы мен регенерация туралы түсінік қарама-қарсы мембраналық әсерлері бар тәжірибелерді және негізгі нәтижесі теріс клиникалық сынақтарды да қамтуы керек. Мақала химиялық ерекшеліктен жасушалық бөлімдерге, одан адам зерттеулеріне өтіп, зертханалық белсенділікті дәлелденген клиникалық пайдадан ажыратады.
Asteraceae тұқымдасына жататын Silybum marianum (L.) Gaertn. жемістері ботаникалық тұрғыдан тұқымша болып табылады. Экстрактта флавоноид пен фенилпропаноидтан түзілетін флавонолигнандар бар. Таксифолиннің кониферил спиртімен тотығу арқылы қосылуы және кейінгі циклденуі аралас қаңқаны түсіндіреді; биосинтезге өсімдік пероксидазалары қатысады (Lv et al., 2017). Қосылу бағыты региоизомерлерді, кеңістіктік конфигурация диастереомерлерді түзеді. Өсімдік тегі немесе бір химиялық топқа жату бірдей фармакологияны қамтамасыз етпейді.
Силимаринде әдетте силибин A және B, изосилибин A және B, силикристин мен оған ұқсас компоненттер, силидианин және таксифолин бар. Таксифолинде лигнаннан шығатын бөлік жоқ, сондықтан ол флавонолигнан емес. Аз мөлшерлі заттар мен тотығу өнімдері де кездеседі. Коммерциялық өнімнің құрамы шикізатқа, экстракцияға, тазартуға, сақтауға және талдау әдісіне тәуелді. «80 % силимарин» деген белгі аналитикалық анықтаманы қажет етеді: экстракт үлесі, өлшенген флавонолигнандар және стандарт зат арқылы есептелген үлес әрдайым бір шама емес.
Силибин өлшенген флавонолигнандардың елеулі бөлігін, жиі шамамен жартысын құрайды, бірақ силикристин, силидианин және изосилибин үлестері әмбебап тұрақтылар емес. Жалпы пайызды стандарттау бірдей A:B қатынасын, қосымша құрамды немесе ерігіштікті кепілдемейді. Kroll et al. (2007) атаулардың бірізді болмауының салдарын талқылады; Davis-Searles et al. (2005) жеке компоненттерді бөліп, простата обыры жасушаларындағы әсер айырмасын көрсетті. Бұлар затты нақты анықтау қажеттігін дәлелдейді, бауырды емдеу үшін жалпы басымдық рейтингін бермейді.
| Атау | Химиялық немесе фармацевтикалық мағына | Нені дәлелдемейді |
|---|---|---|
| Силимарин | Бірнеше флавонолигнан мен басқа компоненттер экстракты | Бір молекула немесе өзгермейтін қоспа |
| Силибинин / силибин | Әдетте силибин A және B жұбы | Бүкіл экстракт немесе барлық өнімдегі тұрақты қатынас |
| Силибин A және B | Байланысу реті бірдей диастереомерлер | Бірдей метаболизм және биологиялық жауап |
| Изосилибин A және B | Силибинге қатысты региоизомерлер, әрі диастереомер жұбы | Силибин A және B-нің жай балама атаулары |
| Силибин–фосфатидилхолин кешені | Жеткізуді өзгертуге арналған түр | Көктамырлық дәрімен дәлелденген теңдік не әмбебап клиникалық басымдық |
| Көктамырлық силибинин сукцинаты | Инфузияға арналған суда еритін туынды | Дәл сондай экспозиция беретін ішілетін қоспа |
Силибиннің молекулалық формуласы C₂₅H₂₂O₁₀, молярлық массасы шамамен 482,44 г/моль. Құрылымында дигидрофлавонол бөлігі, бензодиоксанды фенилпропаноид бөлігі, метокси тобы және бес гидроксил бар. Гидроксилдердің тек бір бөлігі фенолдық; екіншілік және гидроксиметил спирттеріне фенолдық топпен бірдей радикалға сутек беру қасиетін телуге болмайды.
Жиі қолданылатын нөмірлеуде негізгі A түрі (2R,3R,10R,11R), B түрі (2R,3R,10S,11S) деп белгіленеді. Басқа жүйелер бензодиоксан орталықтарын басқаша нөмірлейді. Жүйесіз стереохимиялық сипаттама екіұшты. Төрт тәуелсіз орталық теориялық 2⁴ = 16 стереоизомерге мүмкіндік береді; бұл кәдімгі экстрактта барлығы бар деген сөз емес. Табиғи жұптың флавоноид орталықтары ортақ, лигнан орталықтары өзгеше. Изосилибиннің байланысу реті басқа болғандықтан, бірдей R/S әріптері екі топта бір құрылымды білдірмейді.
ЯМР, электрондық дөңгелек дихроизм және кристаллографиялық зерттеулер конфигурацияны қолдайды. Цис–транс изомерлену тәжірибелері арнайы химиялық жағдайда өзге конфигурациялар түзілуін көрсетеді (Novotná et al., 2014). A мен B энантиомер емес, диастереомер. Ерігіштік, конформация, конъюгация және белсенділік айырмасы болуы мүмкін. Бірақ A-ны судағы антиоксидант, B-ні тасымалдағыштың немесе ядролық рецептордың күштірек лиганды деп әмбебап жариялау нақты жүйедегі өлшемдерді қажет етеді. Еріткішке тәуелсіз «жартылай орындық пен аксиалдық күй» сызбасы тәжірибелік айырманы түсіндіру үшін міндетті емес.
Хроматографиялық сәйкестік пен мөлшерге тазалық, ыдырау өнімдері және партия деректері қосылуы керек. RP-HPLC немесе LC–MS жалпы экстракт белгісі біріктірген компоненттерді ажыратады. Еру қасиеті, дәрілік түр массасы және нақты силибинин массасы да қажет. Мысалы, фосфолипид кешенінің 200 мг мөлшері автоматты түрде 200 мг силибин емес. Инфузиялық құтыдағы туынды массасы мен силибининге шаққандағы эквивалентті де ажырату керек.
Силибин суда нашар ериді; сіңуді еру, өткізгіштік және жүйелік айналымға дейінгі қарқынды метаболизм шектейді. Ерігіштік пен октанол–су таралу коэффициенті температураға, pH, кристалл түріне және әдіске тәуелді. 0,04 мг/мл-ден төмен нақты ерігіштікті не белгілі log P аралығын бүкіл экстрактқа әмбебап қолдануға болмайды. Көпкомпонентті өсімдік қоспасына жалғыз биофармацевтикалық сан беру түрлердің айырмасын жасырады.
Ішкеннен кейін сіңген заттар ішек пен бауырда өңделеді. Глюкуронидтер мен сульфаттар маңызды айналымдағы түрлер; конъюгацияланбаған еркін флавонолигнандар гидролизден кейін өлшенетін «жалпы» аналиттен өзгеше экспозиция көрсеткіші. Wen et al. (2007) бұл үлестерді бөлек өлшеп, зерттеуінде еркін түрге шамамен 1–3 сағат, конъюгаттарға 3–8 сағат жартылай шығарылу уақытын хабарлады. Бұл барлық өнім, ауру немесе инфузиялық режим үшін әмбебап уақыт емес.
II фазаның екі жалпы реакциясы айырманы көрсетеді:
UDP-GlcA — белсендірілген глюкуронил доноры; PAPS — сульфат доноры, PAP — оның сульфатсыз өнімі. UGT мен SULT фермент топтарын білдіреді, барлық позициялық метаболитті бір изоформа түзетінін дәлелдемейді. Әртүрлі гидроксил конъюгациясы стереоселективті болуы мүмкін. Негізгі конъюгаттарды бірден белсенді емес деуге болмайды: тіндік таралу, деконъюгация мен әсер бөлек зерттеледі.
Конъюгаттардың өтпен шығуы, ішекте гидролиз және қайта сіңу энтерогепатикалық айналымға қатысады. MRP2/ABCC2 және BCRP/ABCG2 сияқты каналикулярлық шығару жүйелері маңызды, бірақ модельдегі тасымалдағыш адамдағы бүкіл дозаның нақты теңгерімін бермейді. Сіңбеген зат, микробтық метаболизм, өтпен қайта келу және несеппен шығу — бөлек жолдар. Әр ішілген дозаның тұрақты 80–85 %-ы өтке бөлінеді деу енгізілген, сіңген және табылған мөлшерді шатастырады. Төмен плазмалық концентрациядан ғана абсолютті биожетімділікті анықтау мүмкін емес: тиісті көктамырлық салыстыру мен аналит анықтамасы керек.
Schrieber et al. (2008, 2011) бауыр аурулары мен сау салыстыру топтары арасында немесе ауру топтарының өзінде экспозиция айырмасын тапты. Бауыр дисфункциясы өсімдік компоненттерінің фармакокинетикасын өзгертеді; «бауырға бағытталған» зақымдалған бауырдың қалыпты клиренсін білдірмейді. Hawke et al. (2010) созылмалы C гепатитінде ішілетін дозаны өсіргенде сызықтық емес кинетиканы көрсетті. Доза не биожетімділік өскенде ықтимал емдік экспозициямен қатар өзара әсер қаупі де өзгереді.
Фосфатидилхолинмен кешендеу силибиннің дисперсиясы мен сіңуін өзгертеді. Полярлық топ пен амфифильді липид ортасының байланысы жеткізуді түсіндіреді, бірақ фосфолипидтің молекуланы толық ораған суреті асқорыту сұйықтығындағы құрылымды дәлелдемейді. Сутектік байланыстар — полярлық әрекеттесу. Липосома — су бөлімі мен биқабаты әртүрлі жүктерді таситын липид көпіршігі; барлық липосомалық дәрі тек сулы өзекте орналасқан емес.
Barzaghi et al. (1990) тоғыз сау адамда 360 мг силибинге тең дозамен силибин–фосфатидилхолин кешенін силимаринмен салыстырды. Бұл түрге тәуелді экспозиция артуын қолдайды. AUC әмбебап 4,6–10 есе өседі, ең жоғары концентрация бір тұрақты еселікпен өзгереді немесе зат шырыштан пиноцитоз бен хиломикрон арқылы шексіз өтеді дегенді дәлелдемейді. AUC, Cmax және Tmax бір аналит, тең доза және бірдей сынама шарттарымен салыстырылуы керек. Жақсы сіңу өздігінен клиникалық нәтиже сынағы емес.
Микрондау, аморфты дисперсия, өздігінен эмульсияланатын жүйе, қатты липид нанобөлшегі, PLGA тәрізді полимер және альбумин нанобөлшегі әртүрлі кедергіні шешеді. Бұлар физика-химиялық, жануарлық және жекелеген адам фармакокинетикалық жұмыстарынан тұрады; барлығы қалыптасқан клиникалық балама емес. Қарапайым еру үлгісі ауданның ұлғаюын түсіндіреді:
M — еріген масса, D — диффузия коэффициенті, A — ашық бөлшек ауданы, h — тиімді диффузиялық қабат қалыңдығы, Cs — қанығу концентрациясы, C — орта концентрациясы. Нойес–Уитни түріндегі өрнек — жеңілдетілген модель. Ұсақ бөлшек A-ны өсіреді, бірақ агрегация, сулану, кристалл күйі, ішек жағдайы және метаболизм жүйелік экспозицияның артуын анықтайды. Бөлшек өлшемі клиникалық пайданың екі еселенуін кепілдемейді.
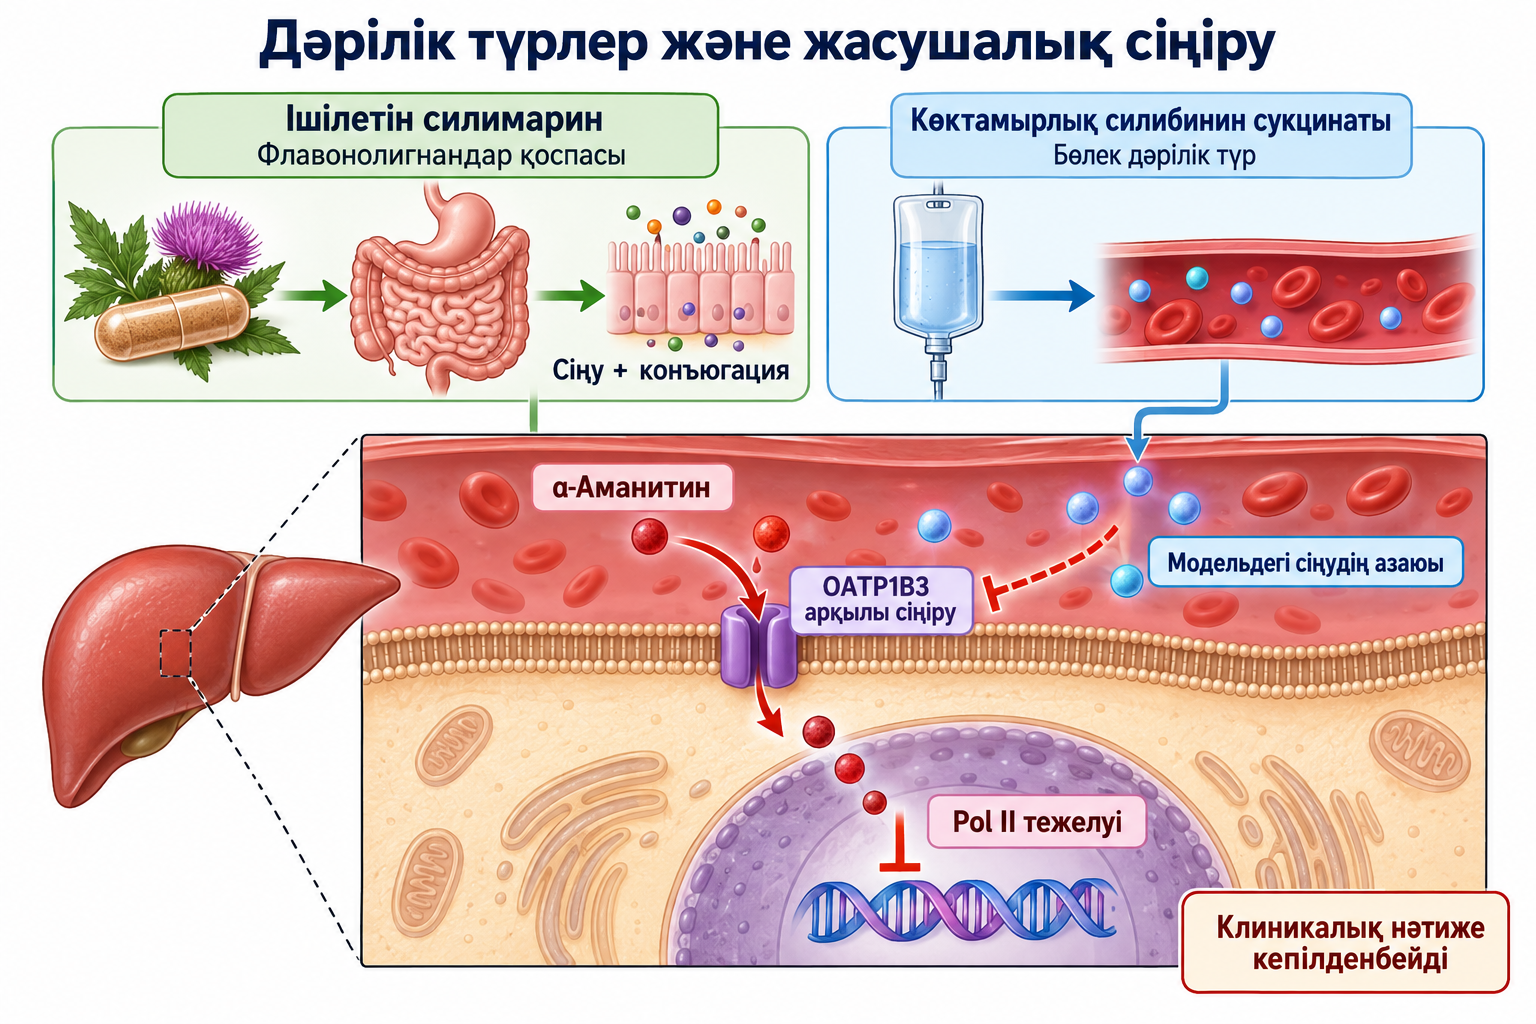
Гепатоциттің қанға қараған синусоидтық және өт өзекшесін құрайтын каналикулярлық беті бар; олардың тасымал жүйелері басқа. Липидтер, кортикалық актин, адгезиялық кешендер және тығыз түйіспелер тұтастықты сақтайды. Мембрана жай пассивті қап емес. Оксидант, өт қышқылы, еріткіш және токсин липид ұйымын, ақуызды және ион градиентін концентрацияға, бөлімге, уақытқа қарай бұзады.
Флавонолигнандар липид–су шекарасына еніп, полярлық бастармен немесе ацил тізбегімен әрекеттеседі. DPH сияқты флуоресцент зонд жергілікті күйді көрсетеді, бірақ анизотропия зондтың таралуы мен айналуына да тәуелді. Флуоресценция өзгеруі барлық мембрананың аз өткізгіш, жақсы реттелген немесе барлық токсинге төзімді болғанын дәлелдемейді.
Parasassi et al. (1984) қоян бауырының микросомалық мембранасында гидрофобты–гидрофильді шекараға ену және ацил тізбек оралуының өзгеруімен үйлесетін шағын зонд өзгерістерін тапты. Бұл жасушаішілік мембрана препараты, адамдағы жұмыс істейтін синусоидтық тосқауылдың тікелей өлшемі емес. Белгілі көміртек арасына нақты ену тереңдігі, липидтердің қабатаралық ауысуының әмбебап азаюы немесе барлық оттек радикалын механикалық тосқауылмен шығару бақылаудан күштірек тұжырымдар.
Бүкіл силимарин мен тазартылған силибининнің мінезі ерекшеленеді. Basiglio et al. (2009) оқшауланған мембрана мен егеуқұйрық гепатоцитін детергенттік және осмостық күйзелісте тексерді. Зерттелген жоғары концентрацияда экстракт бұзылудан қорғады, ал силибинин Triton не осмостық лизисті күшейте алатын және таурохенодезоксихолатқа қарсы азырақ қорғайтын. Бұл кәдімгі ішілетін экспозицияның зиянын дәлелдемейді, бірақ жеке силибинин әрқашан экстракттың мембраналық қорғанысын қайталайды дегенге тікелей қайшы.
Өсірінді ортасына LDH не ALT шығуы нақты жағдайда зақым белгісі. Аз фермент ағуы цитопротекцияны қолдайды, бірақ өт секрециясы, адам бауыр архитектурасы не өмір сүрудің қалпына келгенін көрсетпейді. Сұйықтық пен тұтқырлық байланысқан: «шамадан тыс тұтқырлықты азайту» мен «артық сұйылуға жол бермеу» бір шартсыз әсер емес.
SLCO1B1 және SLCO1B3 кодтайтын OATP1B1/OATP1B3 адам бауырының маңызды синусоидтық сіңіру тасымалдағыштары. Субстраттары эндогендік қосылыстар мен дәрілерді қамтиды. OATP2B1 таралуы мен субстраттары басқа. Физиологиялық орналасу OATP1B3 барлық басқа тіннен немесе ісіктен жоқ деген сөз емес. OATP каналикулярлық ABC шығару тасымалдағышынан өзгеше, АТФ гидролиздейтін сорғы емес.
Тежелу күші тасымалдағышқа, тест субстратына, уақытқа және препаратқа тәуелді. Köck et al. (2013) силимарин үшін OATP1B1, OATP1B3 және OATP2B1-де IC50 тиісінше 1,3, 2,2 және 0,3 мкМ екенін көрсетті. Силибин A/B және силикристин мәндері басқа. Бұл компонент пен әдіске тән тежелу, силибинин атауына бекітілген бір тұрақты аффиндік емес.
IC50 — талдау жағдайында жартылай тежейтін концентрация; ол автоматты диссоциация тұрақтысы немесе in vivo тиімді деңгей емес. Ki тежелу үлгісіне тәуелді. Плазмалық концентрацияда эксперименттік тежегіш тасымалды толық тоқтатпауы мүмкін: бос үлес, ақуызбен байланысу, метаболит және субстрат бәсекесі өзгереді. Модель белгілі OATP аминқышқылымен шешілген байланыс құрылымын немесе әмбебап бекітілген конформацияны дәлелдемейді.
Аматоксин мен фаллотоксин — бөлек топ. Аматоксиндер екі циклді октапептид, фаллоидин сияқты фаллотоксиндер екі циклді гептапептид. Фаллоидин жіпшелі актинмен байланысып, тәжірибелік цитоскелет зақымында маңызды, бірақ ішекте нашар сіңуі оны адамдағы боз арамқұлақтың жүйелік улануының негізгі себебі деуге мүмкіндік бермейді. α-Аманитин сияқты аматоксин жұтылғанда ауыр бауыр зақымын тудырады. Саңырауқұлақтағы токсин мөлшері өзгеретіндіктен, сандық өлім дозасы жеке қабылдауды сенімді бағаламайды.
Letschert et al. (2006) тасымалдағышы бар жасушалар мен алғашқы адам гепатоциттерін қолданды. Тексерілген OATP арасында таңбаланған аманитин туындысын OATP1B3 тасымалдады; Km шамамен 3,7 ± 0,6 мкМ болды. Силибинин дигемисукцинаты және басқа заттар сіңуді тежеді. Таңбалы субстрат пен шарттар маңызды: бұл бауырлық сіңу механизмін қолдайды, сол панельде OATP1B1 аманитинді тасымалдағанын не бір тасымалдағыш бүкіл улануды түсіндіретінін көрсетпейді.
Жасушаға жеткен α-аманитин РНҚ-полимераза II-ні тежеп, ақпараттық РНҚ транскрипциясы мен кейінгі ақуыз өндіруді бұзады. Негізгі тізбек — сіңу, одан кейін жасушаішілік уыттылық. Сіңуді тежеу Pol II-мен байланысқан токсинді ығыстыру, химиялық бейтараптау не некрозданған жасушаны қайтару емес. Бүйрекпен шығару мен энтерогепатикалық айналым маңызды; бүйрек зақымы улануды қиындатады. Бір ену жолын жабу барлық қан токсинінің тез қауіпсіз шығуын кепілдемейді.
Модельді таңдау маңызды. Алғашқы гепатоцит пен кейбір өзгертілген жүйелер қажет тасымалдағышты кәдімгі гепатома желісінен жақсы көрсетеді. Түрлерді салыстырған 2020 жылғы жұмыс HepG2 жүйесінің қажетті тасымалдағышы аз болса жеткілікті сезімтал болмайтынын тапты. Жарамсыз модельдегі теріс нәтиже де, жоғары экспозициядағы оң нәтиже де осы шектеумен түсіндіріледі.
Кортикалық актин мен актомиозин каналикулярлық полюсті ұстайды, түйіспе ақуызы өтті қанға қараған ортадан бөледі. Тотығу не токсин актинді, мембрана бекінуін және жасуша кальцийін өзгертеді. Кальпаин цитоскелет пен адгезиялық ақуызды ыдыратады; фосфорлану мен энергияның өзгеруі жиырылуды бұзады. Мембрана томпаюы автоматты түрде жасушадан тыс везикула емес. Ол апоптозда да, қайтымды күйзелісте де кездеседі; көрінісі өлім механизмін бірден анықтамайды.
Силимаринмен тәжірибелік ағу не томпаюдың азаюы кең цитопротекторлық жауаппен үйлеседі. Бірақ аз зақым эзрин–радиксин–моэзин бекінуін тікелей күшейту, PLC-ні таңдаулы тежеу, барлық IP3-тәуелді кальций шығаруды тоқтату немесе миозин жеңіл тізбегінің фосфорлануын арнайы қалпына келтіруді дәлелдемейді. Бұлар жеке молекулалық гипотезалар. Мембрана, кальций, протеаза мен түйіспе байланысы биологиялық түсінік береді; клиникалық холестаздың алдын алу сызбадан артық өлшемді қажет етеді.
Machicao және Sonnenbichler (1977) егеуқұйрық бауырының оқшау ядросын, ядрошығын және РНҚ-полимераза препараттарын зерттеді. Силибин РНҚ, әсіресе рибосомалық РНҚ синтезін және Pol I-ге сәйкес A полимераза белсенділігін өсірді; сол жүйеде B/Pol II ынталанбады. Кинетика жылдамдық параметрі өсіп, Km өзгермегенін көрсетті. Бұл тарихи маңызды нәтиже, адам Pol I-індегі байланыс қалтасының құрылымдық дәлелі емес.
Михаэлис–Ментен қатынасы кинетикалық сөзді түсіндіреді:
v — реакция жылдамдығы, S — нақты субстрат концентрациясы, Vmax — модельдің шекті жылдамдығы, Km — Vmax жартысына сәйкес концентрация. Km тұрақты кезде Vmax өсуі сол жағдайда катализдің өзгеруін қолдайды. Ол аллостериялық қалдықты анықтамайды, фермент мөлшерінің барлық өзгерісін ажыратпайды және клиникалық регенерация жылдамдығын бермейді. Транскрипция көпкомпонентті болғандықтан, теңдеу тірі ядрошықтың толық моделі емес, түсіндіру құралы.
Sonnenbichler және Zetl (1984) құрсақ ішіне енгізгеннен кейін егеуқұйрық бауырын in vivo зерттеді. Ядролық РНҚ синтезі өсіп, сегіз сағатта шамамен 60 % ең жоғары өсім байқалды; жаңа рРНҚ жетілген рибосомаға қосылды. Түр, жол және уақыт осы нәтижеге жатады. Бұл кәдімгі ішілетін қоспа адам рибосомасын екі еселейді немесе бауыр массасын тұрақты пайызға тез қалпына келтіреді деген дәлел емес.
Сүтқоректіде Pol I болашақ 18S, 5.8S және 28S рРНҚ бар алғышартты транскрипциялайды. Адамның алғашқы транскрипті әдетте 47S; ерте өңдеу 45S пен кейінгі аралықтарды түзеді. Ескі әдебиет 45S атауын қолдануы мүмкін. Pol II ақуыз кодтайтын аРНҚ мен түрлі кодтамайтын РНҚ-ны, Pol III тРНҚ және 5S рРНҚ-ны түзеді. 5S Pol I алғышартынан кесіліп алынатын бөлік емес.
UBF, промотор таңдауының SL1/TIF-IB кешені және RRN3/TIF-IA Pol I транскрипциясына қатысады. UBF рДНҚ құрылымын реттейді; SL1-де TBP мен Pol I-ге қатысты TAF бар; RRN3 бастауға қабілетті Pol I-ді әкелуге көмектеседі. Реттелу түр мен әдіс бойынша өзгереді. Бұл аппараттың сызбасы тарихи тәжірибеге түсінік береді, силибинин UBF-ті CK2 арқылы тікелей фосфорлайды, SL1-ді әкеледі немесе барлық белсенді емес рДНҚ қайталауын эухроматинге айналдырады дегенді көрсетпейді. Мұндай дәрілік әсер классикалық жұмыстарда анықталмаған.
Жалпы өңделу тізбегі:
Кіші ядрошықтық РНП метилдену мен псевдоуридинденуді бағыттайды; фибрилларин мен дискерин — фермент мысалдары. Кесу және қысқарту сыртқы/ішкі транскрипцияланған аралықтарды жояды. 18S кіші 40S суббірлікке, 28S, 5.8S және бөлек синтезделген 5S рибосомалық ақуыздармен үлкен 60S-ке кіреді. Экспорт пен соңғы жетілу жұмыс істейтін бөлшекті береді. Седиментация коэффициенттері арифметикалық қосылмайды: тұтас эукариот рибосомасы 100S емес, 80S.
Гепатоцит зақымдалған ақуызды алмастыру және альбумин, ұю факторлары, метаболикалық фермент пен тасымалдағыш шығару үшін трансляцияны қажет етеді. Рибосома биогенезі қалпына келудің қисынды бөлігі. Бірақ тірі жасуша, энергия, аминқышқылдары, дұрыс өсу сигналы, тамыр мен өт тұтастығы және жалғасқан зақымды тоқтату да керек. Таңбалы уридиннің РНҚ-ға көп қосылуы BSEP, MDR3/ABCB4 не MRP2 жұмысын, қалыпты порталық қысым не науқас өмірін дәлелдемейді.
Ішінара гепатэктомия тәжірибелері ДНҚ синтезі мен регенерацияны зерттеді. Sonnenbichler et al. (1986) резекцияланған егеуқұйрық бауырында күшею, тексерілген қатерлі жасуша модельдерінде жауап жоқтығын тапты. Бұл адам бауырының регенерация уақытын әмбебап 25–40 % қысқартуды негіздемейді. Жануардың операциялық қалпына келуі, токсиндік жарақат және созылмалы фиброз — бөлек жағдайлар.
Белгілі гепатома не басқа қатерлі желіде ынталану болмауы әр ісік клоны ынталанбайды дегеннен тар. Рибосома биогенезі, Myc, PI3K/Akt/mTOR және жасуша циклі регенерацияда да, обырда да маңызды; барлық ісік бірдей ең жоғары Pol I жылдамдығында бекітілмеген. Бір талдаудың шегі барлық генотип пен дозаға онкологиялық қауіпсіздік механизмі болмайды.
Өзге зерттеулер обыр модельдерінде цикл тоқтауы, циклин/CDK тежегіші және EGFR, STAT3 не Wnt өзгерісін көрсеткен. Бұлар антипролиферациялық белсенділікті зерттеуді қолдайды, адамның обырдан емделуін кепілдемейді. Оқшау препаратта Pol II ынталанбауы мутагендік, тератогендік және ұзақ ісік қаупі жоқтығын да дәлелдемейді. Оларға өз токсикологиялық және клиникалық дәлелі керек.
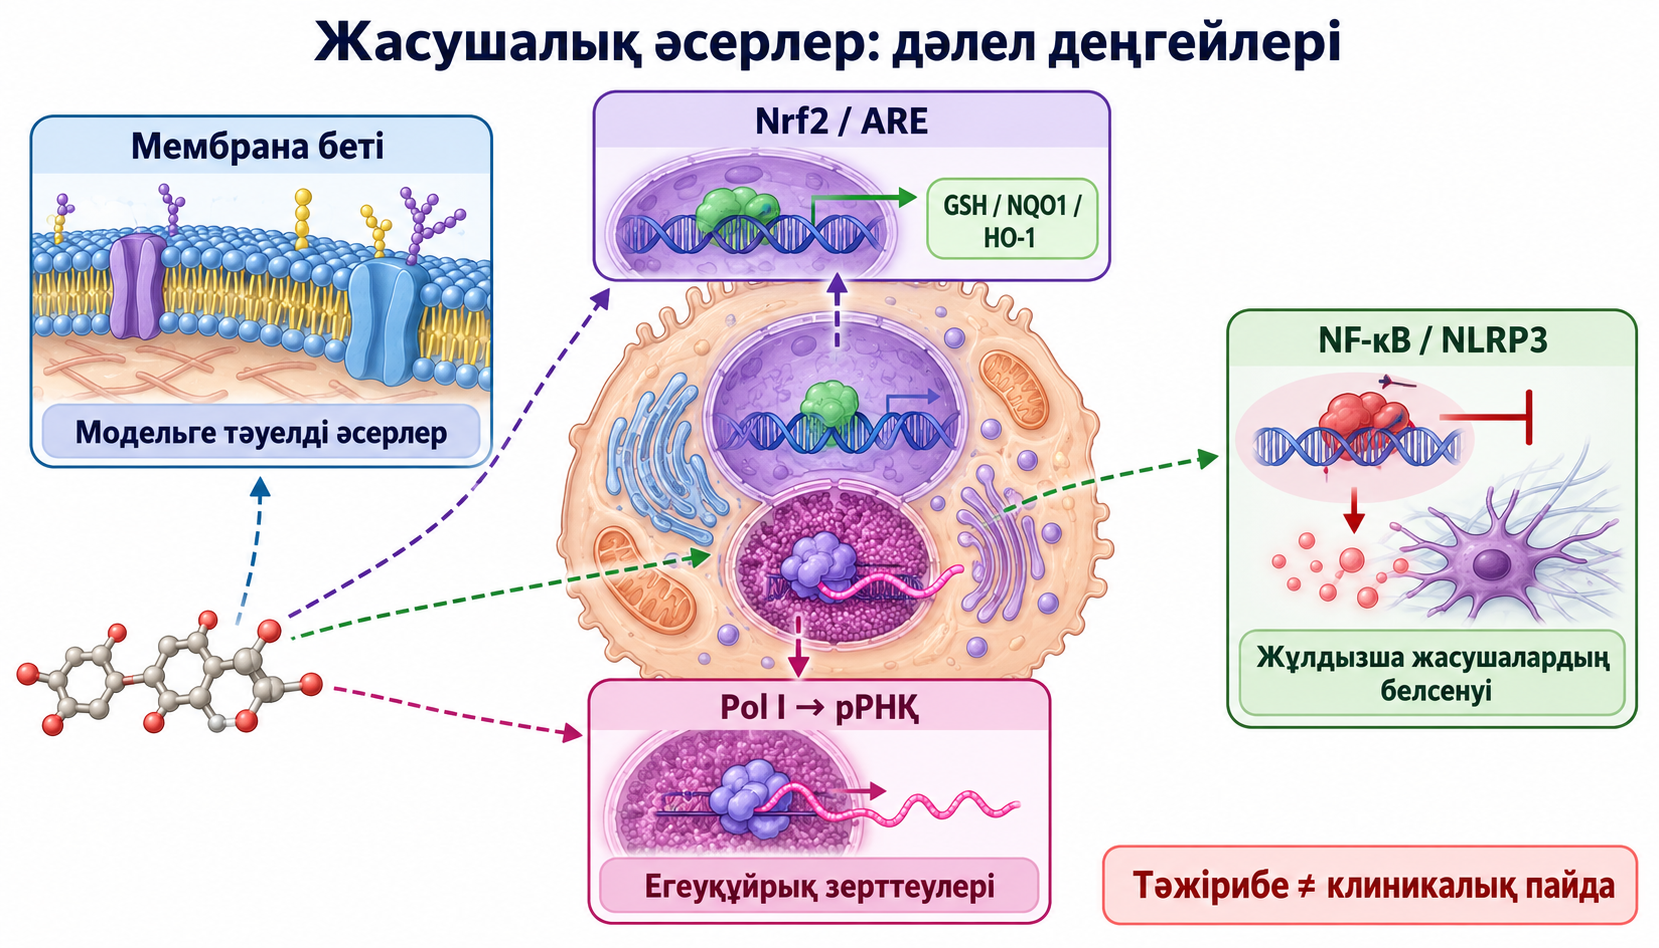
Гидроксилді ароматты құрылым химиялық және биологиялық жүйеде радикал ұстауды қолдайды. Фенолдық топ сутек атомын беріп, құрылым мен ортаға тәуелді тұрақты феноксил радикалын түзе алады:
Электрон, одан кейін протон тасымалы — басқа ықтимал жол:
Ar — ароматты топ, нүкте — жұптаспаған электрон. Бұлар барлық метаболит пен радикалдың толық сандық есебі емес, тұжырымдық реакциялар. Гидроксил, супероксид, липид алкоксил/пероксил радикалдары және сутек пероксиді не гипохлорлы қышқыл сияқты радикал емес оксиданттардың кинетикасы бөлек. Сутек пероксиді оксидант болғанымен еркін радикал емес. Бір субстраттың IC50 мәні басқа реакцияның жылдамдық тұрақтысына тең емес.
Липид пероксидтенуі басталу, тізбек таралуы және аяқталудан тұрады. Липид радикалын ұстап қалу қолайлы ортада таралуды азайтады. MDA, 4-HNE, конъюгацияланған диен және бояғышпен өлшенген белсенді оттек әртүрлі ерекшелікпен ақпарат береді. Бір сигналдың азаюы қадамды анықтамайды және клиникалық регенерацияны дәлелдемейді. Мембранада еркін, ақуызға байланысқан және конъюгацияланған концентрация маңызды; жоғары пробирка деңгейі кәдімгі ішілетін экспозицияға сәйкес болмауы мүмкін.
Keap1 Cul3 бар убиквитин-лигаза жүйесінің субстрат адаптері ретінде Nrf2 ыдырауын қолдайды. Тотығу немесе электрофиль әсер реттелуді өзгертіп, Nrf2 жиналуына және ядро ішінде кіші Maf ақуыздарымен антиоксиданттық жауап элементтерінде әрекет етуіне мүмкіндік береді. Жол күйзелісті тану, транскрипция және ақуыз өндіруді біріктіреді. Сызбада аты жазылуы радикалды тікелей бейтараптамайды.
Nrf2-мен байланысты нысандарға GCLC/GCLM, NQO1 және HMOX1/HO-1 кіреді; олар глутатион қолжетімділігі мен редокс-басқаруға әсер етеді. GPX4 глутатионмен фосфолипид гидропероксидін тотықсыздандырады; SOD пен каталаза өзге қадамдарды атқарады. Барлығы бірдей конъюгациялаушы «II фаза ферменті» емес. Keap1 Cys151, Cys273 не Cys288-ді дәрінің тікелей өзгертуі жол ақуызының өзгеруінен нақтырақ тұжырым; қалдыққа тән дәлел керек.
Клиникаға дейінгі силибинин түрлерінде Nrf2/ARE өзгерген, соның ішінде 2022 жылғы силибинин–альбумин нанобөлшегінің жедел бауыр жарақаты жұмысы. Бұл модельге тән қорғаныс, ішілетін экстракт адам GSH-ын әмбебап 30–60 % арттырады не ферроптозды тоқтатады деген дәлел емес. Түр, жарақат моделі және экспозиция бірге көрсетіледі (Ding et al., 2022).
GPX4 реакциясы қалыптасқан функцияны көрсетеді:
PLOOH — фосфолипид гидропероксиді, PLOH — қалпына келген спирт, GSH — тотықсызданған глутатион, GSSG — дисульфид. Мембрана липидінің реакциясы, глутатион синтезі және өзге антиоксидант үдерістер GPX4, ферроптоз және липид пероксидтері материалында ажыратылған. GPX4 маркерінің сақталуы нақты науқаста ферроптоз негізгі өлім түрі болғанын автоматты дәлелдемейді.
HO-1 гемді ыдыратып, биливердин, көміртек монооксиді және темір түзеді. Биливердин/билирубин мен CO сигналдық не қорғаныс әсер береді, бірақ бөлінген темір бақылауды қажет етеді. Темір артық ортада HO-1 артуы үнемі қорғамайды. Тұрақты Nrf2 белсенуі кейбір қатерлі жасушаны да қолдауы мүмкін; «антиоксидант» жауаптың мәні ортаға тәуелді.
Ауыспалы металдардың лабильді қоры тотығуды күшейтеді. Ферритин мен трансферрин темірді басқарады, бірақ патологияда барлық реактивті жасуша темірін жоймайды. Екі реакция ықтимал циклді түсіндіреді:
Біріншісі — Фентон реакциясы, екіншісі қолайлы жағдайда екі валентті темірді қайта түзеді. Оттекті топпен координация қолжетімділік пен редокс-қасиетті өзгертеді; pH, лиганд концентрациясы, бәсекелес және тотығу күйі маңызды. 1:1 не 1:2 кешен суреті бүкіл бауыр темірін қайтымсыз тоқтатуды немесе темір шығаратын клиникалық емді алмастыруды дәлелдемейді.
Hutchinson et al. (2010) толық емделген HFE C282Y гомозиготалы он адамда айқаспалы тамақ сынағын жүргізді. Тамақпен силибин қабылдау тамақтан кейінгі сарысу темір жауабын азайтты. Бұл аз топта сіңуге әсерді ұсынады, денеде жиналған темірдің шығуын, фиброз алдын алуды не өлім азаюын көрсетпейді. Темір жетіспеуі мен артықтығы бөлек: «сидеропениялық артықтық» оларды шатастырады. Трансфузиялық артықтықтағы қосымша силимарин жұмыстары стандарт хелацияны да қамтиды, оны экстрактпен ауыстыруға дәлел емес.
Купфер жасушалары — бауырдың тұрақты макрофагтары; кірген моноцит, нейтрофил, гепатоцит және жұлдызша жасуша да жарақатқа қатысады. LPS және зақым сигналдары туа біткен иммундық жолдарды белсендіреді. TLR-ге қатысты канондық тізбекте MyD88/IRAK/TRAF арқылы IKK, IκB фосфорлануы/ыдырауы және p50/p65 сияқты NF-κB ядролық белсенділігі жүреді. Бұл жол түсіндірмесі, барлық стимул бір тармақпен ғана өтетініне дәлел емес.
Manna et al. (1999) жасуша модельдерінде силимарин TNF-индукцияланған NF-κB жауаптарын, IκB өзгерісін және репортер транскрипциясын азайтқанын тапты. Бұл қабынуға қарсы механизмді зерттеуге негіз, бірақ Купфер жасушасының әмбебап IKK IC50-ын, белгілі киназа қалтасын басуды не адамдағы барлық TNF, IL-1β және IL-6 азаюын көрсетпейді. p65 фосфорлануы немесе соңғы геннің төмендеуі әртүрлі алдыңғы әсерден болуы мүмкін.
Қабыну көрсеткішін басу бүкіл бауыр туа біткен иммунитетін пайдалы басумен тең емес. Макрофаг қалдықты тазартады, патогеннен қорғайды, қабынудың аяқталуына қатысады. Мәселе барлық белсенділікті өшіру емес, қолжетімді экспозицияда жарақат жауабын қолайсыз әсерсіз жақсарту.
Екі сигнал моделі NLRP3 пен pro-IL-1β-ны арттыратын дайындықты ASC және прокаспаза-1-мен белсену/жиналудан ажыратады. Калий шығуы, митохондрия бұзылысы және басқа күйзеліс жағдайы стимулға қарай қатысады. Белсенді каспаза-1 IL-1β/IL-18-ді өңдеп, газдермин-D-тәуелді мембрана өткізгіштігіне үлес қосады. Әр бауыр жарақаты пироптоз емес, аз цитокин газдермин тесігінің тікелей тежелуін дәлелдемейді.
Zhang et al. (2017) майлы рациондағы тышқан мен өсірілген гепатоцитті зерттеді. Силибиннің инфламмасома жиналуын азайтуы NAD⁺/SIRT2 реттелуімен, микротүтік ацетилденуімен және эндоплазмалық ретикулум күйзелісінің азаюымен байланысты болды. Бұл маңызды жануар/жасуша механизмі. Оны силибинин NLRP3 пирин доменіне тікелей байланысып, адам Купфер жасушасында ASC байланысын тоқтатады деген расталмаған тұжырыммен алмастыруға болмайды. ROS, митохондриялық ДНҚ не потенциал байланысы да бір нақты дәрілік нысанды анықтамайды.
Фосфолипидтен арахидон қышқылының босатылуы циклооксигеназа және липоксигеназа жолдарын қоректендіреді. 5-LOX лейкотриен, COX простаноид синтезіне қатысады. Силимарин/силибин тәжірибелері 5-LOX жауабы мен COX-2 экспрессиясын қоса өзгерістерді хабарлаған. Фермент тежелуі, транскрипция азаюы және субстрат азаюы — бөлек механизмдер (Gupta et al., 2000).
Бір модель бауыр LTB4-інің әмбебап 70 %-дан көп азаюын бермейді. COX-1 тек қорғаныс, COX-2 тек зиян емес; простаноид қызметі тін мен уақытқа байланысты. Жасушалық қабынуға қарсы бейне ҚҚСП тәрізді клиникалық тиімділік пен асқорыту қан кетуі/ойық жарасының кепілді жоқтығын көрсетпейді.
Тыныш жұлдызша жасуша ретиноидты липид тамшысында сақтайды. Жалғасқан зақымда миофибробластқа ұқсап, α-тегіс бұлшықет актинін және I/III коллагенді матриксті өсіреді. TGF-β–Smad2/3–Smad4 маңызды фиброздық жол; PDGF көбею мен көшуге қатысады. Матрикс айналымы MMP, TIMP, жасуша күйі және жарақатқа тәуелді. Фиброз өзгермелі және кері қайтуы мүмкін; әр жарақат міндетті цирроз емес.
Trappoliere et al. (2009) адам жұлдызша жасушасының өсіріндісінде PDGF-тәуелді көбею/көшу және TGF-β-мен байланысты коллаген синтезі сияқты қабыну/фиброз жауаптарын өзгертті. Бұл биологиялық қисындылық. Аз Smad ALK5 каталитикалық орнының тікелей тежелуін, өзгерген TIMP/MMP адамдағы қалыптасқан тыртықтың ерігенін дәлелдемейді. Адам фиброзы алдын ала белгіленген гистология не расталған өлшеммен клиникалық бағаланады.
C гепатиті енгізу жолының маңызын көрсетеді. Ahmed-Belkacem et al. (2010) биохимиялық және тәжірибелік жүйеде силибининге қатысты заттар HCV РНҚ-тәуелді РНҚ-полимеразасы NS5B-ні тежейтінін хабарлады. Басқа жұмыстар вирустың кіруін, мембрана қосылуын, жасушааралық таралуын және липидтік қадамдарды зерттеді (Wagoner et al., 2010). Түр, репликон және инфекция модельдерінің айырмасы NS5B-нің жалғыз қарапайым әмбебап аллостериялық қалтасын бекітуге мүмкіндік бермейді.
HCV енуіне CD81, SR-BI және тығыз түйіспе ақуыздары қатысады. Инфекция не қосылу сынағын азайту осы рецепторлардың әрқайсысына тікелей бәсекелес байланыс барын дәлелдемейді. Оқшау NS5B-ге әсерлі концентрацияны ішілетін дозаға тура айналдыруға болмайды: ерігіштік, ақуыз байланысы, конъюгация мен жасушаға жеткізу араласады.
Ferenci et al. (2008) пегинтерферон/рибавиринге жауап бермеген адамдарда көктамырлық силибининді зерттеді. Инфузия кезінде вирус РНҚ-сы төмендеді. Бұл тұрақты вирусологиялық сауығу, ұзақ өмір сүру немесе кәдімгі ішілетін экстракттың жетістігі емес. Трансплантация жағдайлары мен шағын серия барлық реципиенттің алдын алуының рандомизацияланған дәлелі болмайды. Тарихи бақылау механизм үшін маңызды, расталған вирусқа қарсы емді жалпы алмастырмайды.
Fried et al. (2012) созылмалы HCV және сәтсіз бұрынғы интерферон емі бар 154 адамды 24 аптаға силимарин 420 мг не 700 мг күніне үш рет немесе плацебоға бөлді. Негізгі ALT нәтижесінде маңызды басымдық және сенімді вирус РНҚ азаюы болмады. Доза бір қабылдауға, бүкіл тәулікке емес. Теріс ішілетін сынақ барлық көктамырлық бақылауды жоққа шығармайды, бірақ жолдардың вирусқа қарсы тиімділігін тең санауды шектейді.
Көктамырлық силибинин сукцинаты кей клиникалық ортада арнайы токсикологиялық орын алады және ошаған капсуласынан фармакологиялық бөлек. Белгілі препарат сипаттамасында тәулігіне 20 мг силибинин/кг эквиваленті төрт екі сағаттық инфузияға бөлініп, сұйықтық балансы бақыланатыны жазылған. Басқа маманданған протоколдар жүктеме дозасынан кейін үздіксіз инфузия қолданған. Бұл қадағаланатын дәрі қолданудың сипаттамасы, өзін емдеу немесе барлық бауыр ауруына әмбебап схема емес.
Enjalbert et al. (2002) тарихи хабарларды ретроспективті талдады. Сирек қауіпті улануда мұндай дәлел қолдануды қолдауы мүмкін, бірақ уақыт, бірге берілген ем, ауырлық және жариялау айырмасына сезімтал. Тарихи топтың өлімін салыстыру дәрі әсерін рандомизация сияқты оқшауламайды. Ерте инфузия өлімді үнемі 5 %-дан төмен түсіреді, трансплантацияны жояды не әр өлім дозасын құтқарады деген дәлелден артық.
Асқорыту белгілері кешігіп, бауыр жеткіліксіздігі алдында жалған жақсару болуы мүмкін. Шұғыл токсикология, бауыр/бүйрек, ұю және клиникалық күйді бақылау керек. Сұйықтық пен электролит, таңдалған деконтаминация, өзге қосымша ем және трансплантация бағасы — бөлек шаралар. «Күшейтілген диурез» автоматты қауіпсіз токсин шығару емес; сұйықтық пен бүйрекке жеке шешім қажет. N-ацетилцистеин бұл жерде қосымша клиникалық мәселе, NAC пен ішілетін силимариннің бір антидот екеніне дәлел емес.
Метаболикалық дисфункциямен байланысты стеатоздық ауру мен стеатогепатит липид жиналуын, метаболикалық күйзеліс, қабыну және кейде үдемелі фиброзды қамтиды. Ескі сынақтар NAFLD/NASH атауы мен критерийін қолданды. Қайта бағалаусыз барлық қатысушы жаңа анықтамаға толық сай деуге болмайды. ALT, стеатоз, инсулинге төзімділік, фиброз және клиникалық оқиға — бөлек өлшем.
Loguercio et al. (2012) силибин–фосфатидилхолин–E витамині қоспасын 12 ай зерттеді. Ем алған 179 NAFLD қатысушысының 36-сында HCV болды; 41 шығып, 138-і протокол бойынша талданды. Фермент, HOMA және кей гистология жақсарған. Шығу мен бастапқы гистологиялық теңсіздік түсіндіруді қиындатады. Бірнеше ингредиент силибиннің жеке әсерін анықтамайды және барлық MASH үшін жалпы III фаза тұжырымын бермейді. Қоспа нәтижесін тек ошаған компоненті бар басқа түрге көшіруге болмайды.
Ашқарындағы тиісті индекс:
Бөлім көрсетілген глюкоза бірлігіне арналған; мг/дл қолданатын басқа нұсқада басқа бөлім бар. HOMA-IR өзгерісі сынама мен әдіске тәуелді жанама бағалау, фиброздың қайту дәлелі емес. Айырма HOMA-IR, TyG және QUICKI материалында берілген.
Chan et al. (2017) биопсиямен расталған NASH бар 99 адамды 48 аптаға силимарин 700 мг күніне үш рет не плацебоға бөлді. NAS кемінде 30 % төмендеуінің негізгі нүктесі 32,7 % және 26,0 % болды, маңызды айырма жоқ (P = 0,467). Фиброздың гистологиялық жақсаруы екінші нәтиже ретінде 22,4 % және 6,0 % болды (P = 0,023). Бұл зерттелуге лайық, бірақ теріс негізгі нәтижені ауруды өзгерту көрсетіліміне айналдырмайды.
Navarro et al. (2019) 78 адамды 420 мг не 700 мг күніне үш рет немесе плацебоға бөлді. Алдын ала белгіленген гистологиялық жауап 19 %, 15 % және 12 % болды (P = 0,79), негізгі пайда жоқ. Орталық бағалау көптеген қатысушы гистологиялық кіру критерийіне сай емес екенін анықтады. Монотерапия сынақтары қоспадан түр және дизайн жағынан өзгеше; жалпы пайда не жалпы теңдік қорытындысы дұрыс емес.
Этанол алкогольдегидрогеназа және альдегиддегидрогеназа арқылы ацетальдегид түзеп, NADH/NAD⁺ тепе-теңдігін өзгертеді; CYP2E1 тотығу күйзелісін арттырады. Тәжірибеде глутатион сақтау не пероксидтенуді азайту осы зақым биологиясына қатысты. Бұл силибинин артық NADH-ты сенімді қайта тотықтырады, жалғасқан алкогольді бейтараптайды немесе ауыр алкоголь гепатитін емдейді дегенді көрсетпейді.
Ferenci et al. (1989) циррозы бар 170 адамды силимарин не плацебоға бөлді. Төрт жылдық өмір сүру 58 ± 9 % және 39 ± 9 %, ± стандарт қате, P = 0,036 болды. Тарихи жағдай мен топша нәтижесі қазіргі барлық этиология/сатыға таралуды шектейді.
Parés et al. (1998) алкоголь циррозы бар 200 адамды бөлгенде өмір сүру мен клиникалық ағым пайдасын таппады. Бұл ертеректегі оң нәтижемен бірге қаралуы керек. Ферменттер порталық қысым, бауыр клиренсі не ұзақ синтез функциясын тура өлшемейді. Әртүрлі зерттеу трансплантация не цирроз өлімінің азаюын кепілдемейді.
Парацетамол уыттылығында NAPQI түзілуі, глутатион азаюы және токсикалық экспозицияда митохондрия жарақаты бар. Жануар не жасушада силимарин қорғанысы шұғыл артық доза емінің тиімді баламасы емес. Жол, уақыт, токсин дозасы және түр нәтижені өзгертеді. Алдын ала емделген жануар артық дозадан кейін келген науқасқа тең емес.
Туберкулез дәрілік жарақаты да әртүрлі. Luangchosiri et al. (2015) 55 адамдық шағын сынақта алдын алу сигналын тапты. Басқа алдын алу және емдеу жұмыстарында пайда тұрақты емес; жарақатты болдырмау бар жарақатты емдеуден өзгеше. DILI анықтамасы, уақыт және қосымша ем айырмасы бар. Барлық туберкулез схемасына силимарин қосып, тәуекелді кепілді үш есе азайту немесе микробқа қарсы тиімділікті сақтау негізделмейді (Marjani et al., 2016; емдеу сынағы, 2019).
Ladas et al. (2010) жедел лимфобластты лейкоз және гепатоуыттылығы бар 50 балада пилоттық рандомизация жасады. 28-күні ALT, AST не билирубин маңызды өзгеше емес. 56-күні ошағанмен AST төмен (P = 0,05), ALT маңызсыз үрдіс (P = 0,07) болды. Химиотерапия дозасын азайту сан жағынан сирек, бірақ маңызды емес. Бұл ізденістік дерек, обыр нәтижесінің жақсаруы не мамансыз химиотерапияны өзгерту негізі емес.
| Жұмыс / жағдай | Түр және дизайн | Негізгі түсіндіру |
|---|---|---|
| Enjalbert 2002, аматоксин | Тарихи емдердің ретроспективті талдауы | Сирек шұғыл қолдану/зерттеуге негіз, рандомизациялық өлім әсері емес |
| Ferenci 1989, цирроз | Ішілетін рандомизация, 170 адам | Бір тарихи сынақтағы өмір сүру сигналы |
| Parés 1998, алкоголь циррозы | Рандомизация, 200 адам | Өмір сүру/ағым пайдасы жоқ |
| Loguercio 2012, NAFLD | Фосфатидилхолин/E витаминімен қоспа; 179 емделген, 138 протоколдық | Кей өлшем жақсарған; қоспа мен шығу шектейді |
| Fried 2012, HCV | 420 не 700 мг күніне үш рет, 154 адам | Теріс негізгі ALT, сенімді вирусқа қарсы пайда жоқ |
| Chan 2017, NASH | Ішілетін силимарин, 99 адам | Теріс негізгі NAS, екінші фиброз сигналы |
| Navarro 2019, NASH | Ішілетін силимарин, 78 адам | Негізгі гистологиялық пайда жоқ; кіру критерийі шектеуі |
| Ladas 2010, бала лейкозы | Ішілетін пилот, 50 бала | Кей кеш фермент өзгерісі, химиотерапия нәтижесінің расталған пайдасы емес |
Көп ішілетін зерттеу қолайлы төзімділік, кейде асқорыту белгісі, қышыну және шағын реакцияны хабарлаған. Аллергия, Asteraceae сезімталдығы болуы мүмкін. Өнім сәйкестігі, ластану және қосымша ингредиент маңызды. Жануардағы жоғары LD50 не аз төзімділік сынағы әмбебап тератогендік/мутагендік жоқтығын бермейді. Жүктілік, емізу, бала және ауыр бауыр дисфункциясына сау ересектен емес, өз дерегі қажет.
Жоғары экспозициялы түр мен эксперименттік үлкен доза кәдімгі ішілетін қауіпсіздікті автоматты алмайды. Еркін/конъюгат концентрация, байланыспаған үлес және порталық деңгей өзгеруі мүмкін. Үлкен дозада уақытша билирубин/фермент өзгерісі «бауырды қорғайтын» талдауды өзгерте алмайды деген сөз емес екенін көрсетеді.
Силибин компоненті CYP2C9 арқылы варфарин метаболизмін in vitro тежейді (Brantley et al., 2010). CYP3A және UGT тежелуі де зерттелген. Концентрация, субстрат және түр маңызды; микросома IC50-ы кепілді клиникалық әсер емес. Бір өнімдегі орташа төмен экспозиция барлық жақсы сіңетін өнім не сезімтал адам әсерін жоққа шығармайды.
UGT1A1 билирубин мен SN-38 глюкуронидтенуіне қатысады. SN-38 — иринотеканның белсенді метаболиті; оның тағдыры бастапқы иринотеканнан ажыратылады. Van Erp et al. (2005) обыр пациентінің шағын фармакокинетикалық жұмысында нақты ошаған режимі иринотеканға маңызды әсер бермегенін тапты. Бұл фермент тежелуінен таратуға шек, барлық түрдің өзара әсерсіз сертификаты емес.
P-гликопротеин/ABCB1 нәтижесі де жүйе мен субстратқа тәуелді. Gurley et al. (2006) сау адамдарда тексерген түр дигоксин кинетикасын маңызды өзгертпеді. Сондықтан дигоксин биожетімділігі өсуін әмбебап факт деу қате. Бауыр OATP тежелуі, әсіресе экспозиция артқанда, өзге ықтимал механизм. OATP арқылы билирубин конъюгатын қайта сіңіру мен UGT конъюгациясы бөлек және билирубин үлестерін түрлі өзгертеді.
Варфарин сияқты емдік аралығы тар дәріде белгісіз шамадағы ықтимал әсердің өзі маңызды. Бағалау нақты өнім, жол, доза, басқа дәрі және бақылауды анықтайды. Бұл барлық өнім барлық ферментті тежейді немесе қалыпты дозада еш әсер мүмкін емес дегеннен пайдалы.
Әдебиетте тәулігіне бірнеше жүз мг экстракт, жоғары ішілетін режим, фосфолипид кешені және салмаққа сай көктамырлық мөлшер бар. Олар нақты араласу, бір стандарт алдын алу схемасына біріктірілмейді және әмбебап коэффициентпен түрлер арасында ауыстырылмайды. Экстракттың жалпы массасы, талданған флавонолигнан, силибинин эквиваленті және туынды массасы әртүрлі.
| Шама немесе нәтиже | Пайдалы мән | Маңызды шек |
|---|---|---|
| Құрам / HPLC | Компонент сәйкестігі мен мөлшері | Стандарт жалпы үлес барлық экстрактты бірдей етпейді |
| Еркін не жалпы плазма аналиты | Әртүрлі экспозиция анықтамасы | Гидролизден кейінгі жалпы мөлшер конъюгациясыз концентрация емес |
| AUC / Cmax / Tmax | Түрге тән фармакокинетика | Көп экспозиция клиникалық пайда дәлелі емес |
| ALT / AST | Зақымның биохимиялық көрсеткіші | Төмен фермент автоматты синтез/өмір қалпына келуі емес |
| Альбумин / INR және күй | Синтез функциясы мен ауырлық бағасының бөлігі | Ауру және өзге факторға тәуелді, ALT-ке тең емес |
| NAS / фиброз / қаттылық | Бөлек белсенділік не құрылым өлшемі | Екінші өзгеріс не қаттылық автоматты өлім әсері емес |
| Инфузиядағы HCV RNA | Сол жол/экспозицияның вирусқа қарсы белсенділігі | Қысқа төмендеу тұрақты сауығу не ішілетін өнім дәлелі емес |
| Өлім / трансплантация | Науқасқа маңызды нәтиже | Тарихи салыстыру мен сирек серияда себептілік сақ түсіндіріледі |
Химиялық сәйкестік, дәрілік түр, эксперименттік орта және соңғы нәтиже бірге қаралады. Мембранамен әрекет, РНҚ синтезі және редокс-сигнал — зерттеуге тұрарлық механизм. Олар теріс рандомизациялық нәтижені жоймайды және әмбебап гепатопротекция рецепті болмайды.
Бұл баяндаулық ғылыми синтез 2026 жылғы 8 қазанда дайындалды. Нысаналы бастапқы жарияланым тексеруі зат сәйкестігі, мембрана тәжірибесі, OATP, егеуқұйрықтағы классикалық РНҚ, фармакокинетика, адам бауыр сынағы және өзара әсерді қамтыды. Қолжетімді журнал/PubMed аңдатпалары нақты популяция, араласу және басты нәтижені растауға қолданылды; кей ашық толық мәтін мен өнім құжаты қосымша контекст берді. Дерек қолжетімділігі әртүрлі; аңдатпа тексеру барлық талдау, қосымша және партия сипаттамасының толық аудиті емес.
Бұл жүйелі іздеу не GRADE бағасы емес. Тәуелсіз сыртқы сараптау және мақаланың клиникалық валидациясы жүргізілген жоқ. Жалпы биохимия тікелей тексерілген дәрілік әрекеттен ажыратылады, жануар, жасуша, бақылаулық және рандомизациялық дәлел түрі көрсетіледі. Дозалар зерттеу не маманданған дәрілік жағдайды сипаттайды, әмбебап ем протоколын бермейді. Суреттегі молекулалық мотивтер тұжырымдық, экспериментте анықталған байланыс құрылымының картасы емес.
Жоқ. Экстракт бірнеше заттан тұрады; силибинин әдетте A/B жұбы. Туынды мен жеткізу түрі де бөлек.
Жоқ. Бұл кинетикалық нәтиже, өзара әсерді де өзгертеді. Клиникалық нәтижеге жеке сынақ керек.
Классикалық дәлел тәжірибелік және егеуқұйрыққа тән. Көп рРНҚ өзі функция не өмір сүруді бермейді.
Жоқ. Көктамырлық туынды — бөлек маманданған дәрі. Шұғыл токсикология керек; капсула тең антидот емес.