
Гиперурикемия, фруктоза және ксантиноксидоредуктаза: механизмдер мен дәлелдер
Пурин ыдырауы, KHK-C, ATP және Pi, XOR, тамырлық және бүйректік гипотезалар. Feig, CARES, FAST, ALL-HEART нәтижелері және симптомсыз уратты емдеудің шектері.
Ураттың жоғарылауы нені білдіреді
Несеп қышқылы — адамдағы пурин ыдырауының соңғы өнімі. Қанның pH шамамен 7,4 болғанда ол негізінен урат анионы түрінде болады. Подагра ұстамалары жоқ кезде оның жоғары концентрациясын симптомсыз гиперурикемия деп атайды. Симптомсыздық клиникалық көріністі сипаттайды, бірақ кристалдардың жоқтығын дәлелдемейді: шөгінділер алғашқы ұстамаға дейін пайда болуы мүмкін. Еріген урат, натрий моноураты кристалдары және урат түзетін ферменттің белсенділігі — әртүрлі биологиялық әсерлер.
Физиологиялық жағдайда натрий моноуратының шамамен 6,8 мг/дл қанығу деңгейі 404 мкмоль/л шамасына сәйкес келеді. Бұл температура мен ортаға тәуелді физика-химиялық шама, тамыр уыттылығының нақты шегі емес. Зертханалық аралықтар әртүрлі; әйелдерге шамамен 360 мкмоль/л, ерлерге 420 мкмоль/л жоғарғы шектер жиі қолданылады. Рандомизацияланған сынақтар 300–360 мкмоль/л әмбебап «тамырға қауіпсіз» деңгейді анықтаған жоқ. Подаграны емдеудегі мақсат подаграсы жоқ адамды емдеуге автоматты негіз болмайды (FitzGerald et al., 2020).
Фруктоза бауырдың энергия алмасуын пурин ыдырауымен байланыстыра алады. Жасушалық және жануарлық тәжірибелер тотығу стрессі, тамырлардың қайта құрылуы және гипертензияның ықтимал механизмдерін қолдайды. Бірақ эпидемиологиялық байланыс урат гипертензияның, созылмалы бүйрек ауруының немесе стеатоздың барлық түрін туғызатынын дәлелдемейді. Дәлел деңгейлерін ажырату қажет.
Уриказаның жоғалуы және эволюциялық болжамдар
Көптеген сүтқоректілерде уратоксидаза, яғни уриказа, уратты 5-гидроксиизоуратқа айналдыруды бастайды; келесі реакциялар жақсырақ еритін аллантоин береді. Адамды қоса алғанда, адамтәрізді маймылдар функционалдық уриказадан айырылған. Ежелгі ақуыздарды қайта құрастыру белсенділіктің бір ғана күрт өзгерісінен гөрі біртіндеп төмендеуін көрсетеді. Адамның UOX псевдогенінде 33 және 187 орындарда тоқтау кодондары және сплайсингтің акцепторлық сайтының зақымы бар. Әртүрлі маймыл тармақтарында инактивация тарихы бөлек, сондықтан бірдей мутация тізбегін барлық гоминоидқа телуге болмайды (Oda et al., 2002; Kratzer et al., 2014).
Ұсынылған селекциялық артықшылықтарға плазманың антиоксиданттық әсері, натрий аз кезде қысымды сақтау және маусымдық жемістерден май жинау жатады. Нилдің үнемшіл генотип тұжырымдамасы мен Джонсонның фруктоза–урат гипотезасы тексерілетін сұрақтарды қалыптастырады, бірақ тарихи сұрыпталу себебін анықтамайды. Адамның тік жүруімен тікелей байланыс әсіресе белгісіз: эволюциялық уақыт пен қайта құрастырылған ақуыздар тәжірибесі оны дәлелдемейді. Бұдан ежелгі тұз мөлшерін, ата-баба бойын немесе міндетті заманауи ем сызбасын шығаруға болмайды.
Пурин ыдырауы және XOR құрылысы
Пурин нуклеотидтері PRPP және басқа алғышарттардан de novo түзіледі немесе HPRT, APRT арқылы қайта пайдаланылады. AMP ыдырауы екі тармақты. AMP-дезаминаза IMP түзеді, одан 5′-нуклеотидаза инозин жасайды. Басқа тармақта AMP аденозинге дефосфорланады, ал аденозиндезаминаза оны инозинге айналдырады. Пуриннуклеозидфосфорилаза гипоксантин мен рибоза-1-фосфат береді. Гуанозиннен гуанин, гуаниндезаминаза арқылы ксантин түзіледі. Ксантиноксидоредуктаза (XOR) гипоксантин → ксантин → несеп қышқылы сатыларын катализдейді.
PDB 1FIQ құрылымы адамның ақуызы емес, сиыр сүтінің ксантиноксидазасы. XOR — шамамен 290 кДа гомодимер. Әр мономерде екі [2Fe–2S] орталығы бар N-соңғы домен, FAD байланыстыратын орталық домен және молибден кофакторының үлкен C-соңғы домені болады. Молибденді молибдоптерин дитиолені, оксо-, гидроксо- және сульфидтік лигандтар үйлестіреді. Электрондар молибденнен темір–күкірт орталықтары арқылы FAD-қа өтеді. Потенциалдар, қашықтықтар және қалдық нөмірлері нақты ақуыз бен тәжірибе жағдайына қатысты болуы тиіс (Enroth et al., 2000).
Хош иісті және зарядталған қалдықтар белсенді орталықта пуринді бағыттайды. Белсендірілген Mo–OH тобы субстрат көміртегіне шабуыл жасайды; сульфидтік лигандқа гидридтің қатар берілуі Mo(VI)-ны Mo(IV)-ке тотықсыздандырады. Өнім босап шыққаннан кейін электрондар соңғы акцепторға беріледі. Ксантиндегидрогеназа (XDH) көбіне NAD⁺, ал ксантиноксидаза (XO) оттегін пайдаланады. Зерттелген сиыр ферментіндегі Cys535 және Cys992 қатысатын тиол тотығуы конформацияны қайтымды өзгерте алады. Шектеулі протеолиз қайтымсыз ауысу береді. Бұл кез келген тіндік стресс бірдей ауысуды туғызады немесе XDH оттегімен әрекеттеспейді дегенді білдірмейді (Nishino et al., 2008).
Диссоциацияланбаған несеп қышқылымен жазылған жиынтық реакциялар:
XO супероксид те, сутек пероксидін де түзеді. Олардың үлесі оттегіне, pH пен ферменттің редокс-күйіне тәуелді; тұрақты пайыз барлық тінге жарамайды. XOR тежелуі уратты да, ферменттік тотықтырғыштарды да азайтады, сондықтан аллопуринол әсері бұл себептерді әрдайым ажыратпайды.
Фруктоза, KHK-C және бауыр энергиясы
Фруктоза энтероцитке негізінен апикалдық GLUT5 арқылы кіреді; базолатералдық GLUT2 моносахаридтердің шығуына қатысады. GLUT2 бауыр тасымалы үшін де маңызды. Ішек пассивті түтік емес: тышқандардағы изотоптық тәжірибелер аз мөлшердегі фруктозаның жіңішке ішекте глюкоза мен органикалық қышқылдарға едәуір айналатынын көрсетті. Жылдам түсу осы мүмкіндіктен асып, бауыр мен тоқ ішекке жеткізуді арттыра алады. Доза мен жағдайға тәуелсіз 70–85% әмбебап бауырлық сіңіру негізделмеген (Jang et al., 2018).
KHK генінің 3-экзонының өзара айрықша сплайсингі A және C изоформаларын береді. Бауырда, ішекте, бүйректе айқын KHK-C кең таралған KHK-A-ға қарағанда фруктозаға жоғарырақ жақындық көрсетеді. Тәжірибелік Km шамамен 0,8 және 8 ммоль/л бұл айырманы көрсетеді, тағам уыттылығы шегін емес. Тышқандарда KHK-A жойылуы фруктозаның зиянды әсерін күшейтті, ал екі изоформаның жойылуы зерттелген метаболизмдік фенотиптен қорғады. Бұл адамдағы барлық ауруды KHK-C селективті тежелуі алдын алады деген дәлел емес (Diggle et al., 2009; Ishimoto et al., 2012).
Альдолаза B фруктоза-1-фосфатты (F1P) дигидроксиацетонфосфат пен глицеральдегидке бөледі; триокиназа кейін глицеральдегидті фосфорлайды. Бұл жол гликолиздің PFK-1 реттейтін сатысын айналып өтеді. Жылдам фосфорлану фосфорланған аралық өнімдердің жиналуынан ATP мен бос бейорганикалық фосфатты, Pi, уақытша азайта алады. Алайда ATP KHK субстратының өзі, сондықтан жылдамдық мүлде бақылаусыз емес. Азайу ауқымы дозаға, түсу жылдамдығына және бауыр қызметіне тәуелді; 15 минутта ATP 40–60% төмендеуі әр жеміске қалыпты жауап емес.
Аденилаткиназа AMP түзу есебінен ATP сақтауға көмектеседі. Pi тежелуінің әлсіреуі және AMP қолжетімділігі AMPD2 дезаминдеуін арттыра алады:
Келесі сатылар инозин, гипоксантин, ксантин және урат береді. Бұл бұрын түзілген нуклеотидтердің ыдырауы, пуриннің de novo синтезі емес. Фруктоза жүктемесінен кейінгі уақытша урат жоғарылауы тұрақты гиперурикемияға тең емес.
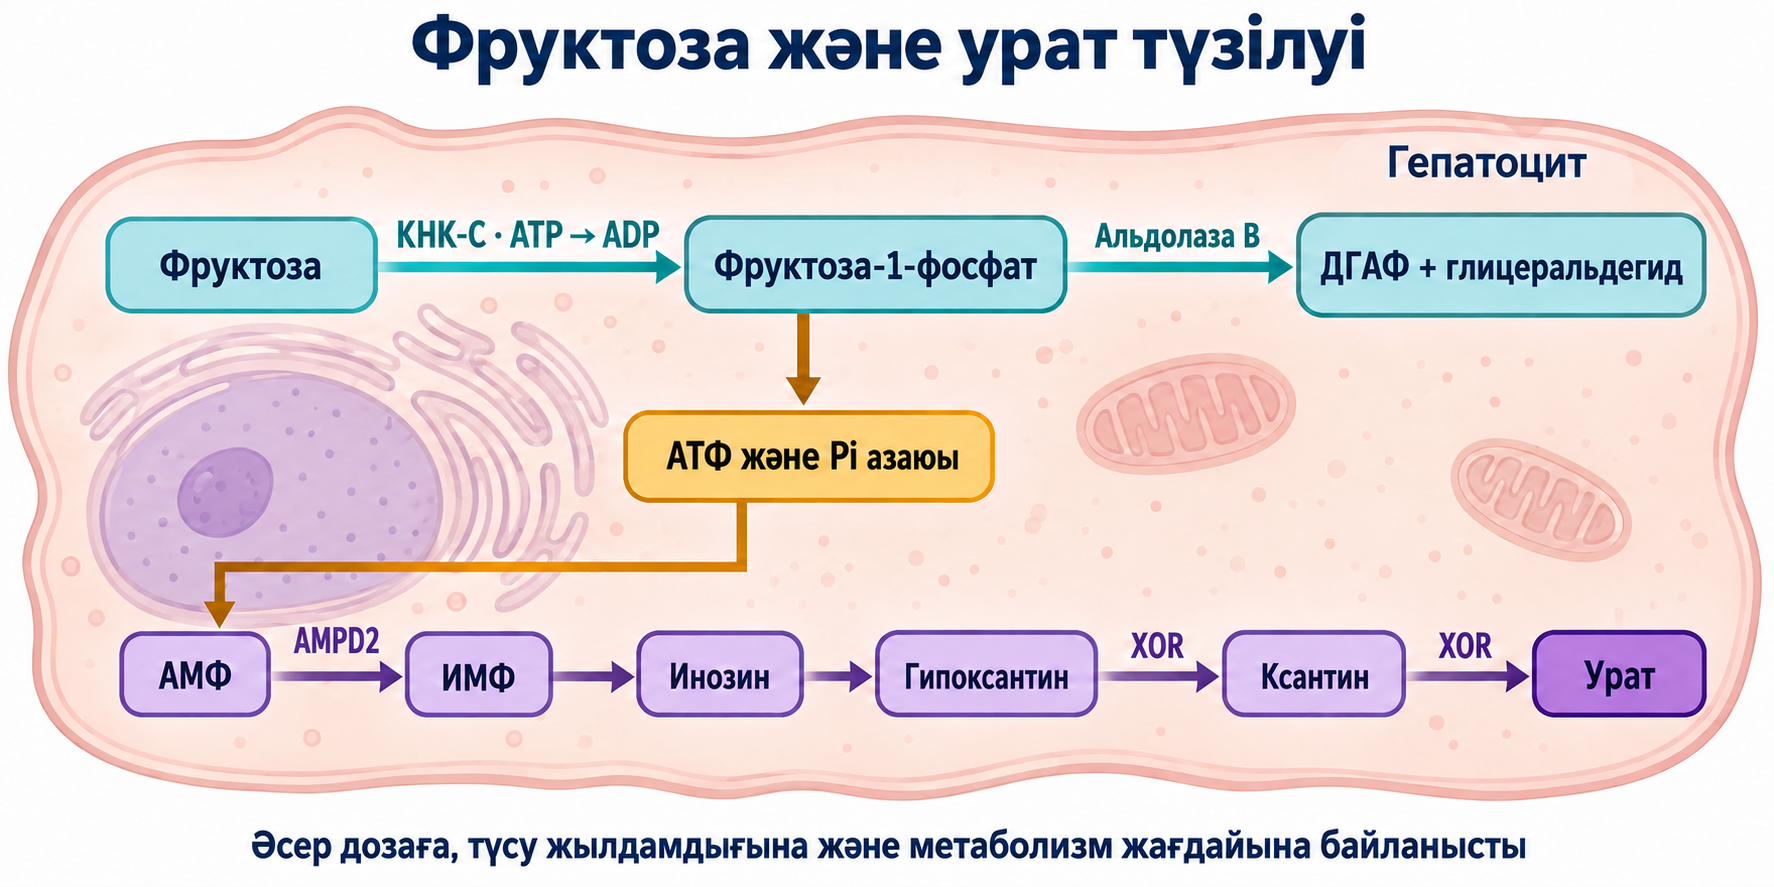
Жасушалық және жануарлық модельдерде жасуша ішіндегі урат митохондриялық тотықтырғыштармен, аконитаза белсенділігінің азаюымен және цитрат жиналуымен байланысты. SLC25A1 арқылы экспорт пен ATP-цитратлиаза липогенезге ацетил-КоА береді:
Ацетил-КоА-карбоксилаза CPT1 тежейтін малонил-КоА түзеді; ChREBP және SREBP-1c FASN, SCD1 сияқты липогендік гендерді реттейді. Бұлар ықтимал өзара әсерлесетін жолдар, ураты жоғары әр адамда Кребс циклі немесе β-тотығу толық тоқтайтынының дәлелі емес (Lanaspa et al., 2012). CPT1 рөлі май қышқылдарының митохондрияға тасымалы туралы материалда түсіндіріледі.
Еріген урат, кристалдар және тамырлық редокс-орта
Натрий моноураты кристалдары NLRP3 инфламмасомасын, каспаза-1 және IL-1β жетілуін белсендіріп, подаграда қабыну туғызады (Martinon et al., 2006). Бұл анықталған механизмді еріген уратқа автоматты түрде қолдануға болмайды.
Плазма ураты антиоксидант бола алады, ал жасушада жиналуы кейбір жүйелерде прооксиданттық әсермен байланысты. Талдаудың жалпы антиоксиданттық сыйымдылығы адамның барлық тамырлық қорғанысын өлшемейді. Бүйректе URAT1 апикалдық қайта сіңіруді қамтамасыз етеді, GLUT9 маңызды тасымал бөлігі, OAT4 органикалық анион алмасуына, ABCG2 секрецияға қатысады. Тамыр жасушаларындағы экспрессия мен қызмет модельге, жасуша түріне байланысты; бүйректегі қызмет әр эндотелийде бірдей рөлді дәлелдемейді. Пробенецидтің әсері де барлық тасымалдағыштың селективті тежелуін көрсетпейді.
Тәжірибелік болжамдарға NADPH-оксидазалар мен митохондриялық реактивті оттегі түрлері кіреді. Ферментті дәл атау маңызды: p47phox-тәуелді жиналу NOX2-ге тән, ал NOX4 әдетте осы цитозолдық белсендіргіштерді қажет етпей, негізінен H2O2 бөледі (Martyn et al., 2006). Өзге көздерден келген супероксид NO-мен әрекеттеседі:
Пероксинитрит және басқа тотықтырғыштар тетрагидробиоптерин, BH4, жүйесін зақымдайды. BH4-тің BH2-ге қатысты азаюы eNOS жұмысын ажыратады: электрон тасымалы қалыпты NO синтезін қамтамасыз етпей, супероксидті арттыра алады. Бұл жалпы тамырлық редокс-биология, гиперурикемияның арнайы диагностикалық белгісі емес. Супероксиддисмутаза және супероксидті жою бәсекелес жою жолдарын түсіндіреді.
Gersch et al. (2008) несеп қышқылының NO-мен химиялық реакциясынан 6-аминоурацил түзілетінін көрсетті. Бұл химиялық мүмкіндікті анықтайды, бірақ адам тамырындағы NO тапшылығына сандық үлесі белгісіз. «BH4 + пероксинитрит → BH2» толық теңестірілген жалғыз реакция емес. Иық артериясының ағынға тәуелді кеңеюі (FMD) өткізгіш тамырдың ағын өзгерісіне жауабын өлшейді; әмбебап 7% шегі урат уыттылығын немесе eNOS ажырауын анықтамайды.
Бүйректің екі фазалы моделі және шектеулері
Mazzali et al. (2001, 2002) егеуқұйрық уриказасын оксон қышқылымен тежеді. Ураттың орташа жоғарылауы қысым мен бүйрек артериолаларының өзгерісіне ілесті, міндетті кристалдық зақымсыз. Ерте функционалдық фазаға NO азаюы және ренин–ангиотензин жүйесінің белсенуі, кейінгі құрылымдық фазаға шумақ алдындағы тамырлардың қайта құрылуы, интерстициялық қабыну және тұзға сезімталдық ұсынылды.
Тамырдың тегіс бұлшықет жасушаларында PDGF, MAPK/ERK, COX-2 және MCP-1/CCL2 пролиферациялық, қабынулық сигналдар ретінде зерттелді. Бүйрек тамырларының тарылуы мен түтікшелік тасымалдың өзгеруі қысымдық натрийурезді нашарлатуы мүмкін: бірдей натрий жүктемесін шығару үшін жоғарырақ қысым керек. NHE3, ENaC және жергілікті ренин–ангиотензин сигналдары маңызды, бірақ тепе-теңдік тек жүйелік қысымның шумаққа берілуіне келмейді. Автореттелу мен нефронның әр бөлігі де қатысады.
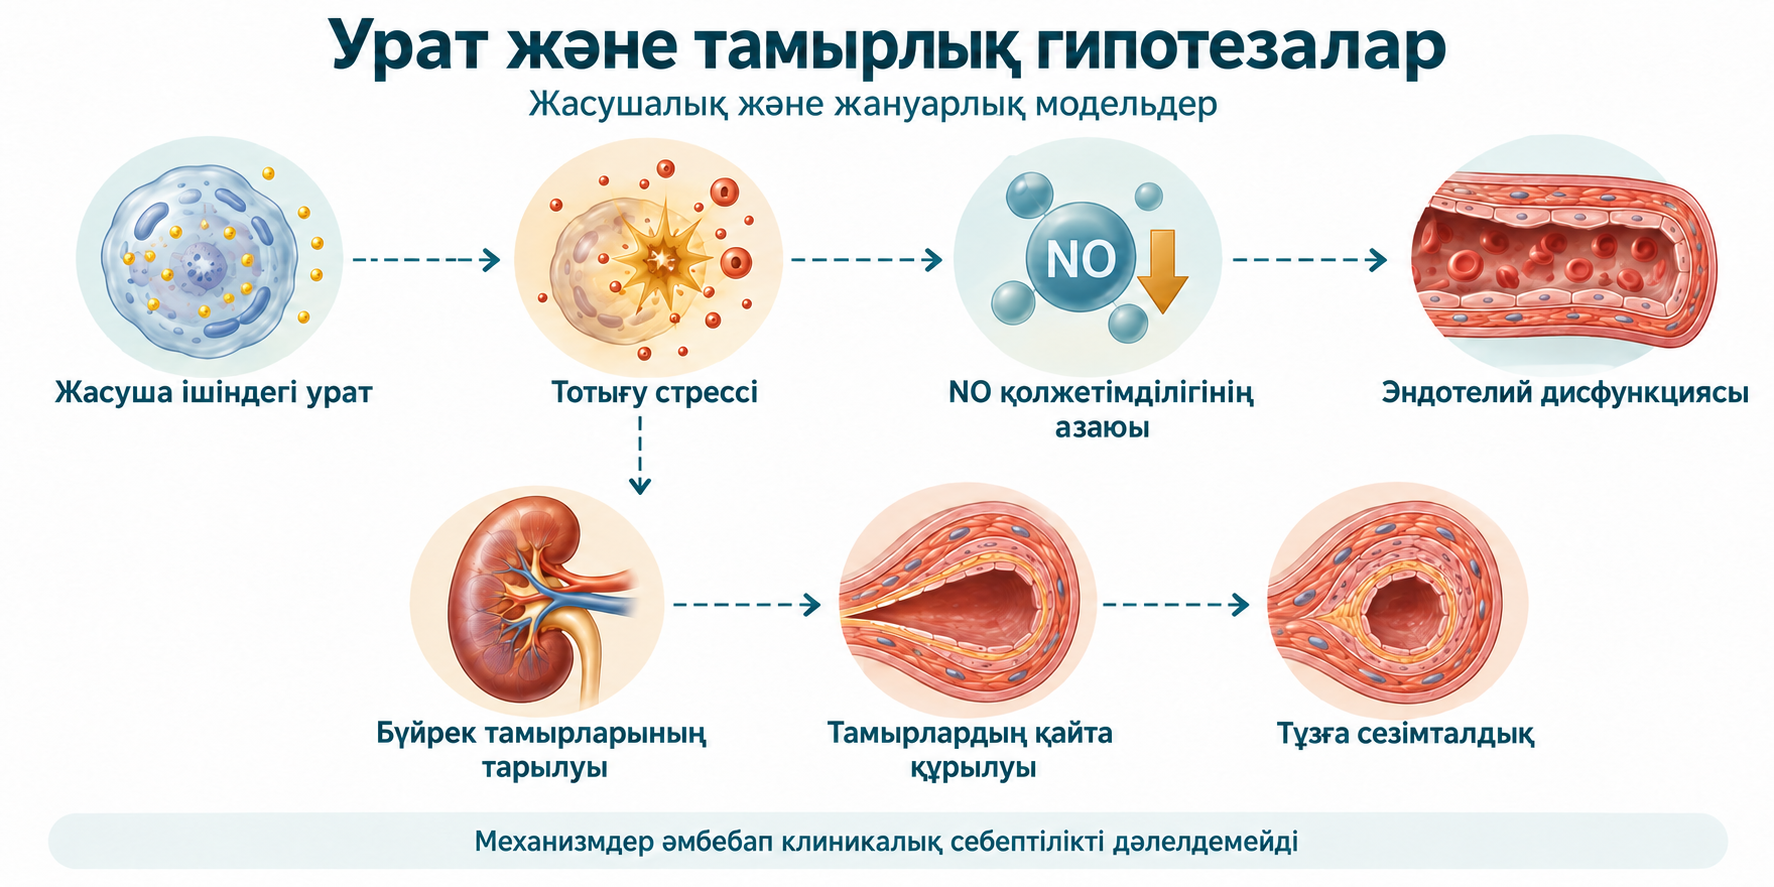
Бұл — зерттеу моделі, барлық науқастың дәлелденген сатылары емес. Ол міндетті ауысуды, абсолютті қайтымсыздықты немесе подаграсы жоқ барлық адамға урат төмендететін дәрі қажет тар емдеу терезесін дәлелдемейді. Ересектер сынағының бейтарап нәтижесін бүйрек фиброзымен түсіндіруге болмайды, егер фиброз өлшенбесе.
Адам зерттеулері не көрсетті
Жоғары урат бақылаулық зерттеулерде болашақ гипертензиямен, бүйрек ауруымен және жүрек-қантамыр оқиғаларымен байланысты. NHANES, PAMELA, PIUMA ассоциациялар береді; белгілі факторларға түзету қалдық араласуды немесе кері себептілікті жоймайды. Бүйрек шығару қызметінің нашарлауы уратты өзі көтереді. Осы когорталардан әр мг/дл-ге әмбебап өлім өсімін немесе әр адамға міндетті eGFR төмендеуін шығаруға болмайды.
Feig et al. (2008) айқаспалы сынағында жаңа гипертензиясы және ураты ≥6 мг/дл болатын 11–17 жастағы 30 жасөспірім болды. Аллопуринолдың төрт апталық 200 мг күніне екі рет қолданылуы қысымды азайтты. Клиникалық және амбулаториялық өлшемдер 20/30 қатысушыда қалыпқа келді, плацебода 1/30. Жиі келтірілетін 19/22, яғни 86%, ураты <5 мг/дл-ге жеткен кіші топқа қатысты, барлық рандомизацияланған қатысушыға емес. Шағын қысқа сынақ ұзақ мерзімді оқиғаларды бағаламады.
Soletsky және Feig (2012) семіздігі және гипертензия алдындағы жағдайы бар жасөспірімдерде аллопуринол, пробенецид пен плацебоны салыстырды. Урат төмендетілген біріктірілген топтарда клиникалық систолалық және диастолалық қысым 10,2 және 9,0 мм сын. бағ. төмендеді; плацебода 1,7 және 1,6 өсті. Бұл таңдалған популяцияда себептік үлесті қолдайды, бірақ осы дәрілерді барлық гипертензияға стандарт етпейді.
| Сынақ | Нақты салыстыру | Негізгі нәтиже | Түсіндіру шегі |
|---|---|---|---|
| CARES, 2018; 6190 қатысушы | Подагра және анықталған жүрек-қантамыр ауруында фебуксостат пен аллопуринол | Құрама нәтиже HR 1,03; жүрек-қантамыр өлімі HR 1,34, 95% СА 1,03–1,73 | Екі дәрінің қауіпсіздігі; ем тоқтатуы мен бақылаудан шығуы көп |
| FAST, 2020; 6128 қатысушы | ≥60 жаста, подаграсы бар, аллопуринол қабылдайтын және қосымша қауіп факторы бар адамдар | Ем кезіндегі HR 0,85, 95% СА 0,70–1,03; кем еместік үшін p<0,0001 | Іріктеу мен талдау бөлек; CARES-ті барлығына жоққа шығармайды |
| ALL-HEART, 2022; талдауда 5721 | Подаграсыз ишемиялық жүрек ауруында аллопуринол қосу және әдеттегі көмек | Инфаркт, инсульт не жүрек-қантамыр өлімі HR 1,04, 95% СА 0,89–1,21; p=0,65 | Екіншілік профилактика пайдасы көрсетілмеді |
FAST жақында болған инфарктты, инсультті, ауыр жүрек жеткіліксіздігін және ауыр бүйрек бұзылуын алып тастады. CARES-пен салыстырғанда бұл маңызды. CKD-FIX және PERL (2020) де зерттелген топтарда аллопуринолдың күтілген бүйрек қорғанысын көрсетпеді. Бұл деректер тек сарысулық уратқа сүйенген әмбебап профилактикалық тағайындауды қолдамайды.
Тасымал генетикасы: анықталған және болжанған
SLC2A9 GLUT9-ды кодтайды және 4-хромосоманың қысқа иінінде орналасқан. rs16890979, rs12498742, rs734553 уратпен байланысты; rs16890979 — кодтайтын миссенс нұсқа, тек 7-интрон нұсқасы емес. Әсер популяция мен жынысқа тәуелді; ассоциация әр аллельдің жеке жүрек-қантамыр қаупін дәлелдемейді. GLUT9 қызметінің жоғалуы 2-типті бүйректік гипоурикемияға және қарқынды жаттығудан кейінгі асқынуларға әкелуі мүмкін (Vitart et al., 2008; Matsuo et al., 2008).
ABCG2 — ішек пен бүйрек экскрециясына қатысатын ATP-тәуелді экспортер. rs2231142 Q141K ақуыз қызметін азайтып, подагра қаупімен байланысты. Бұл ішектегі шығару толық тоқтайды немесе резистентті гипертензияны дәл туғызады деген сөз емес. Бүйректен тыс экскреция азайса, бүйрек жүктемесі артуы мүмкін (Woodward et al., 2009).
URAT1/SLC22A12 қайта сіңіруге қатысады; қызмет жоғалтатын W258X 1-типті бүйректік гипоурикемия туғызады. rs893006 ассоциациялары адамның «аса қайта сіңіруші» фенотипін анықтамайды. KHK, AMPD2 реттелуі қызықты, бірақ келтірілген тәжірибелер AMPD2 фосфат қалтасының жиі кездесетін аллельдері фруктозаға міндетті аса сезімталдық туғызатынын қолдамайды. Бұл тамақ пен дәрі таңдаудың дайын генетикалық алгоритмі емес.
Тамақтану, нутрицевтиктер және дәрі әсері
Сахароза глюкоза мен фруктоза береді; HFCS, агава шәрбаты да фруктозаға бай болуы мүмкін. Тәтті сусын мен артық қосылған қантты азайту жылдам қант жүктемесін төмендетіп, энергия теңгеріміне көмектеседі. Талшығы бар бүтін жеміс үлкен еркін фруктоза жүктемесіне тең емес. Сусынды алып тастағанда урат түзілуі бәрінде 25–40% азаятыны дәлелденбеген.
Алкоголь урат түзілуін арттырып, шығарылуын азайта алады. Этанол тотығуы NADH/NAD⁺ қатынасын көтеріп, лактат жиналуына ықпал етеді; органикалық аниондар бүйректің урат алмасуына әсер етеді. Ацетатты белсендіру ATP жұмсайды:
Сыра қосымша пурин береді. Әсер мөлшер мен клиникалық жағдайға тәуелді; «метаболизмдік у» деген эмоциялық атау дәлел қоспайды.
| Зат | Ғылыми белгі | Анықталмағаны |
|---|---|---|
| C дәрумені | Кей сынақтар мен метаталдауда ураттың аздап төмендеуі; бүйрек шығару қатысуы мүмкін | URAT1/GLUT9 әмбебап тікелей тежелуі, гипертензияның алдын алу немесе подаграға стандарт доза |
| Шие және антоциандар | Шағын тәжірибелер; Zhang et al. (2012): қайталама подагра ұстамасының азаюымен бақылаулық байланыс, OR 0,65 | Тамырлық «метаболизмдік өршулерді» емдеу, дәріге теңдік немесе оқиға профилактикасы |
| Кверцетин | Shi, Williamson (2016): 22 ер адам, 500 мг/тәулік, төрт апта; өзгеріс −26,5 мкмоль/л | Қысым пайдасы, әмбебап тиімділік, ұзақ қауіпсіздік немесе дәріні алмастыру |
| Лютеолин және кемпферол | Зертханада XOR тежелуі | Клиникалық тиімді доза; IC50 ферментке, субстрат пен әдіске тәуелді |
Choi et al. (2009) симптомсыз гиперурикемияны емес, подагра қаупін зерттеді. C дәруменін көп тұтыну ассоциациясы бәріне 1500 мг/тәулік тағайындауға негіз емес. ACR 2020 подаграда C дәруменін қоспауды шартты түрде ұсынады. Аскорбаттың BH4-ті қолдауы қызықты механизм, бірақ қоспалардың клиникалық асқынуларды азайтатынын дәлелдемейді.
Лозартанның URAT1-пен байланысты урикозуриялық әсері бар; фенофибрат және SGLT2 тежегіштері де уратты төмендетуі мүмкін. SGLT2 үшін глюкозурия мен бүйрек тасымалының өзгерісі қарастырылады; GLUT9b-де жай глюкоза–урат бәсекесі бүкіл механизмді түсіндірмейді (Hamada et al., 2008; Chino et al., 2014; Uetake et al., 2010). Бұл әсерлер негізгі көрсетілімдермен бірге бағаланады. Симптомсыз ураттан болжанған тамырлық қорғаныс үшін ғана осы дәрілерді не қоспа комбинациясын тағайындауға болмайды.
Өлшемдер және практикалық шектер
Уратты қайталап өлшеу, бүйрек қызметін, дәрілерді, алкогольді, тағамды, қысым мен подагра белгілерін бағалау жағдайды түсіндіреді. Ем клиникалық көрсетілімге сүйенеді, «төмен FEUA → C дәрумені; жоғары → XOR тежеу» сызбасына емес. ACR 2020 симптомсыз гиперурикемияда фармакологиялық ем бастамауды шартты түрде ұсынады.
Ураттың фракциялық экскрециясы зәрдегі U және плазмадағы P урат, креатинин концентрацияларын бір уақытта өлшеумен есептеледі:
Әр зат үшін зәр мен плазма бірліктері бірдей болуы тиіс. FEUA сүзілген ураттың зәрмен шыққан үлесін сипаттап, бүйрек қызметіне, дәріге және жағдайға тәуелді. Жоғары мән бауырдың артық өндіруін өздігінен дәлелдемейді; төмен мән нақты мутацияны анықтамайды.
| Көрсеткіш | Дұрыс түсіндіру |
|---|---|
| Сарысу ураты | Өндіру мен шығару теңгерімі; жасушалық урат не XOR белсенділігінің тікелей өлшемі емес |
| FEUA | Бүйректің уратпен жұмысы, барлық себепті дербес жіктеу емес |
| FMD | Әдіске тәуелді зерттеу көрсеткіші, урат уыттылығының арнайы тесті емес |
| Амбулаториялық қысым | Деңгей мен тәуліктік бейне; түнгі төмендеудің болмауы ураттық артериолосклерозды дәлелдемейді |
| UACR және eGFR | Бүйрек зақымы мен қызметі; расталған UACR ≥30 мг/г маңызды, бірақ себепті анықтамайды |
Фруктоза–пурин биохимиясы энергия тапшылығының урат түзілуімен байланысын түсіндіреді. Клиникалық қорытынды шектеулі: урат жүрек-қантамыр және бүйрек факторларымен бірге бағаланады; подаграсыз урат төмендету арқылы оқиғаларды болдырмау нақты популяция мен араласуға дәлел қажет етеді.
Жиі қойылатын сұрақтар
Жоғары урат гипертензияны міндетті түрде туғыза ма?
Жоқ. Тәжірибелік механизмдер мен таңдалған жасөспірімдердің шағын сынақтары бар, бірақ барлық ересекке әмбебап себептілік пен ем пайдасы анықталмаған.
Барлық жемісті алып тастау керек пе?
Бүтін жеміс үлкен әрі жылдам еркін фруктоза жүктемесінен өзгеше. Тағам түрі, қосылған қант және энергия теңгерімі маңызды.
Жоғары FEUA артық өндіруді дәлелдей ме?
Жоқ. Ол сүзуге қатысты бүйрек экскрециясын сипаттап, бүйрек қызметіне, дәрілерге және өлшем жағдайына тәуелді.
Кверцетин немесе шие дәріні алмастыра ма?
Шағын сынақтар мен бақылаулық байланыстар мұны дәлелдемейді. Зертханалық шаманы азайту подагра не тамырлық оқиғаның алдын алуды дәлелдемейді.
Дереккөздер
- Enroth C, Eger BT, Okamoto K, Nishino T, Pai EF. Crystal structures of bovine milk xanthine dehydrogenase and xanthine oxidase: structure-based mechanism of conversion. Proc Natl Acad Sci USA. 2000;97(20):10723-10728.
- Nishino T et al. Mammalian xanthine oxidoreductase—mechanism of transition from xanthine dehydrogenase to xanthine oxidase. FEBS J. 2008;275:3278–3289.
- Oda M, Satta Y, Takenaka O, Takahata N. Loss of urate oxidase activity in hominoids and its evolutionary implications. Mol Biol Evol. 2002;19(5):640-653.
- Kratzer JT et al. Evolutionary history and metabolic insights of ancient mammalian uricases. PNAS. 2014;111:3763–3768.
- Johnson RJ et al. Lessons from comparative physiology: could uric acid represent a physiologic alarm signal gone awry in western society? J Comp Physiol B. 2009;179:67–76.
- Johnson RJ, Perez-Pozo SE, Sautin YY, et al. Hypothesis: Could excessive fructose intake and uric acid cause type 2 diabetes? Endocr Rev. 2009;30(1):96-116.
- Ishimoto T, Lanaspa MA, Le MT, et al. Opposing effects of fructokinase C and A isoforms on fructose-induced metabolic syndrome in mice. Proc Natl Acad Sci USA. 2012;109(11):4320-4325.
- Lanaspa MA, Sanchez-Lozada LG, Choi YJ, et al. Uric acid induces hepatic steatosis by generating mitochondrial oxidative stress: potential role in fructose-dependent and -independent fatty liver. J Biol Chem. 2012;287(48):40732-40744.
- Nakagawa T, Hu H, Zharikov S, et al. A causal role for uric acid in fructose-induced metabolic syndrome. Am J Physiol Renal Physiol. 2006;290(3):F625-F631.
- Diggle CP et al. Ketohexokinase: expression and localization of the principal fructose-metabolizing enzyme. J Histochem Cytochem. 2009;57:763–774.
- Enomoto A, Kimura H, Chairoungdua A, et al. Molecular identification of a renal urate-anion exchanger that regulates blood urate levels. Nature. 2002;417(6887):447-452.
- Matsuo H, Chiba T, Nagamori S, et al. Mutations in glucose transporter 9, SLC2A9, cause renal hypouricemia. Am J Hum Genet. 2008;83(6):744-751.
- Woodward OM, Köttgen A, Coresh J, et al. Identification of a urate transporter, ABCG2, with a common functional mutation causing gout. Proc Natl Acad Sci USA. 2009;106(25):10338-10342.
- Vitart V, Rudan I, Hayward C, et al. SLC2A9 is a newly identified urate transporter influencing serum urate concentration, urate excretion and gout. Nat Genet. 2008;40(4):437-442.
- Martinon F, Pétrilli V, Mayor A, Tardivel A, Tschopp J. Gout-associated uric acid crystals activate the NALP3 inflammasome. Nature. 2006;440(7081):237-241.
- Khosla UM, Zharikov S, Finch JL, et al. Hyperuricemia induces endothelial dysfunction. Kidney Int. 2005;67(5):1739-1742.
- Rho YH, Zhu Y, Choi HK. The epidemiology of uric acid and fructose. Semin Nephrol. 2011;31:410–419.
- Gersch C, Palii SP, Kim KM, Angerhofer A, Johnson RJ, Henderson GN. Inactivation of nitric oxide by uric acid. Nucleosides Nucleotides Nucleic Acids. 2008;27(8):967-978.
- Sánchez-Lozada LG et al. Effects of febuxostat on metabolic and renal alterations in rats with fructose-induced metabolic syndrome. Am J Physiol Renal Physiol. 2008;294:F710–F718.
- Mazzali M, Hughes J, Kim YG, et al. Elevated uric acid increases blood pressure in the rat by a novel crystal-independent mechanism. Hypertension. 2001;38(5):1101-1106.
- Mazzali M, Kanellis J, Han L, et al. Hyperuricemia induces a primary renal arteriolopathy in rats by a blood pressure-independent mechanism. Am J Pathol. 2002;161(2):565-573.
- Feig DI, Soletsky B, Johnson RJ. Effect of allopurinol on blood pressure of adolescents with newly diagnosed essential hypertension: a randomized trial. JAMA. 2008;300(8):924-932.
- Soletsky B, Feig DI. Uric acid reduction rectifies prehypertension in obese adolescents: a randomized trial. Hypertension. 2012;60(5):1148-1156.
- White WB, Saag KG, Becker MA, et al. Cardiovascular safety of febuxostat and allopurinol in patients with gout. N Engl J Med. 2018;378(13):1200-1210.
- Mackenzie IS, Ford I, Nuki G, et al. Long-term cardiovascular safety of febuxostat compared with allopurinol in patients with gout (FAST): a multicentre, prospective, randomised, open-label, blinded-endpoint trial. Lancet. 2020;396(10264):1745-1757.
- Mackenzie IS et al. Allopurinol versus usual care in UK patients with ischaemic heart disease (ALL-HEART): a multicentre, prospective, randomised, open-label, blinded-endpoint trial. Lancet. 2022;400:1195–1205.
- Juraschek SP, Miller ER 3rd, Gelber AC. Effect of oral vitamin C supplementation on serum uric acid: a meta-analysis of randomized controlled trials. Arthritis Care Res (Hoboken). 2011;63(9):1295-1306.
- Choi HK, Gao X, Curhan G. Vitamin C intake and the risk of gout in men: a prospective study. Arch Intern Med. 2009;169(5):502-507.
- Zhang Y, Neogi T, Chen C, Chaisson C, Hunter DJ, Choi HK. Cherry consumption and decreased risk of recurrent gout attacks. Arthritis Rheum. 2012;64(12):4004-4011.
- Shi Y, Williamson G. Quercetin lowers plasma uric acid in pre-hyperuricaemic males: a randomised, double-blinded, placebo-controlled, cross-over trial. Br J Nutr. 2016;115(5):800-806.
- Hamada T et al. Uricosuric action of losartan via the inhibition of urate transporter 1 (URAT1) in hypertensive patients. Am J Hypertens. 2008;21:1157–1162.
- Chino Y, Samukawa Y, Sakai S, et al. SGLT2 inhibitor lowers serum uric acid through alteration of uric acid transport activity in renal tubule by increased glycosuria. Biopharm Drug Dispos. 2014;35(7):391-404.
- Uetake D et al. Effect of fenofibrate on uric acid metabolism and urate transporter 1. Intern Med. 2010;49:89–94.
- Martyn KD et al. Functional analysis of Nox4 reveals unique characteristics compared to other NADPH oxidases. Cell Signal. 2006;18:69–82.
- Jang C et al. The Small Intestine Converts Dietary Fructose into Glucose and Organic Acids. Cell Metabolism. 2018;27:351–361.e3.
- Badve SV et al. Effects of Allopurinol on the Progression of Chronic Kidney Disease. N Engl J Med. 2020;382:2504–2513.
- Doria A et al. Serum Urate Lowering with Allopurinol and Kidney Function in Type 1 Diabetes. N Engl J Med. 2020;382:2493–2503.
- FitzGerald JD et al. 2020 American College of Rheumatology Guideline for the Management of Gout. Arthritis Rheumatol. 2020;72:879–895.
- RCSB Protein Data Bank. 1FIQ: bovine milk xanthine oxidase.