
Дендриттік жасушалар мен TLR: тану қалай иммундық жауапқа айналады
Дендриттік жасушалар: TLR, MHC-I/MHC-II өңдеуі, айқас ұсыну, метаболизм және толеранттылық. ZOE-50, IMPACT және ACCESS теріс нәтижесі.
Дендриттік жасушалар: TLR, MHC-I/MHC-II өңдеуі, айқас ұсыну, метаболизм және толеранттылық. ZOE-50, IMPACT және ACCESS теріс нәтижесі.
Дендриттік жасуша өзара байланысты екі міндет атқарады: T-лимфоцитке ақуыздың бөлігін көрсетеді және сол ақуыздың қандай жағдайда кездескенін жеткізеді. Пептид–MHC кешені антигендік ерекшелікті анықтайды, ал костимуляция, цитокиндер мен тін ортасы белсенуге, жіктелуге немесе толеранттылыққа ықпал етеді. Toll-тәрізді рецепторлар, TLR, екінші міндетке қатысады. Олар T-жасушалық рецепторды алмастырмайды және дендриттік жасуша алатын сигналдардың жалғыз көзі емес.
Осы айырмашылық бір ақуыздың вакцинада қорғаныш жауап туғызып, тағам құрамында қабынусыз қабылдануын түсіндіреді. Емнің шектеулері де осымен байланысты: бір каскадты күшейту қорғанысқа кепілдік бермейді, зертханалық қабыну маркерінің төмендеуі клиникалық пайда дәлелі емес. Қалыпты қызмет үздіксіз барынша қозуды емес, жағдайға сай жауап пен қабынудың кейін басылуын қажет етеді.
Стейнман мен Кон 1973 жылы дендриттік жасушаларды сипаттағаннан кейін олар бастапқы T-жасушалық жауаптың маманданған бастаушылары ретінде танылды. Қазіргі жіктеу тек тармақталған пішінге немесе CD11c экспрессиясына емес, шығу тегіне, транскрипциялық бағдарламаға және қызметке сүйенеді. Бір маркер барлық дендриттік жасушаларды моноциттерден, макрофагтардан және басқа белсенді жасушалардан дәл ажырата алмайды.
FLT3 және оның FLT3L лиганды кәдімгі дендриттік жасушалардың дамуын қолдайды. Рецепторлық тирозинкиназа өсу сигналын ақуыз фосфорлануымен, тіршілік пен жіктелу бағдарламаларымен байланыстырады. Алайда «ортақ миелоидтық ізашар → ортақ DC ізашары → барлық жетілген DC» тізбегі пайдалы модель болғанымен, әр жасушаның әмбебап жолы емес. Клондық және біржасушалық зерттеулер әртүрлі ізашарлардың үлесін нақтылайды; pDC шығу тегін бір ғана қатаң иерархия толық түсіндірмейді.
cDC1 IRF8, BATF3 және ID2 бағдарламаларымен байланысты; адамда XCR1, CLEC9A және CD141 белгілерінің үйлесімі қолданылады. CLEC9A зақымданған жасуша материалын тануға, XCR1 жасушалық байланыс пен көшуге қатысады. cDC1 сыртқы антигенді MHC-I арқылы айқас ұсынуда және CD8+ жауабын бастауда әсіресе тиімді. Бұл ерекше мамандану, бірақ жалғыз мүмкіндік емес: өзге антиген ұсынушы жасушалар да белгілі жағдайда айқас ұсына алады.
Адам cDC2 жасушалары әдетте CD1c және моноциттік шығу тегін ажырататын қосымша белгілермен анықталады. IRF4 пен басқа реттегіштер даму мен қызметке қатысады, алайда популяция біртекті емес. Олар MHC-II ұсынуына және түрлі көмекші бағдарламалары бар CD4+ жауабына маңызды. cDC2 тек Th2 немесе Th17 деген сөз емес: жауапты тін, антиген, цитокиндер мен жасуша күйі бағыттайды.
pDC TCF4 бағдарламасымен, CD123 және CD303 экспрессиясымен, белгілі стимулдан кейін I типті интерферонды көп бөлу қабілетімен сипатталады. Эндосомалық TLR7, TLR9 және IRF7 сенсорлық қызметке ерекше маңызды. Олар антиген де ұсына алады, бірақ бұл қызмет пен интерферон көлемі контекске тәуелді. «Мың есе көп өндіреді» деген әмбебап тұжырым барлық популяция мен күйді сипаттамайды.
Моноциттік DC қабыну ортасында пайда болып, жасушалық терапия зерттеулерінде кең қолданылады. Оларды тіндегі cDC1 немесе cDC2-ге автоматты түрде теңестіруге болмайды. Беткі маркерлері ұқсас препараттардың шығу тегі, метаболизмі мен көшуі өзгеше болуы мүмкін; өсірілген моноциттік жасуша нәтижесі адамның бастапқы жасушаларында жеке тексеруді қажет етеді.
TLR — мембрананы бір рет кесіп өтетін, лиганды байланыстыратын аймағында лейцинге бай қайталамалары және цитоплазмалық TIR домені бар ақуыздар. Сәйкес лиганд кешен геометриясын өзгертіп, сигналдық домендерді жақындатады. TLR өзі протеинкиназа емес: сигнал мембрананың цитоплазмалық бетінде жиналған адаптерлер мен ферменттер арқылы беріледі.
Беткі TLR2 TLR1 не TLR6-мен кешен құрып, түрлі липопептидтерді таниды. TLR5 флагеллинді таниды. TLR4 MD-2-мен жұмыс істейді; LBP пен CD14 липополисахарид жеткізуге көмектеседі. Құрылымдық зерттеулер липидтік лигандтың MD-2 ішінде орналасуы белсенді кешенді қалай қалыптастыратынын көрсетеді. Бұл кез келген қабынулық зат TLR4-ке тікелей байланысады дегенді білдірмейді.
TLR3 қос тізбекті РНҚ-ны, TLR7 мен TLR8 РНҚ өңдеу өнімдерін, TLR9 белгілі ДНҚ мотивтерін таниды. UNC93B1 қатысатын эндосомалық тасымал, қышқыл орта және рецептордың протеолизі жауапты кеңістікте шектейді. Қалыпты орналасу мен тазарту бұзылғанда рецепторлар ағзаның өз нуклеин қышқылдарына да жауап бере алады. «Өзінікі» мен «бөтенді» ажырату бір химиялық белгіні қателіксіз оқумен шектелмейді.
TLR жиынтығы түрлер мен жасушалар арасында өзгеше. TLR7/9 адам pDC үшін, TLR8 бірнеше адам миелоидтық популяциясы үшін маңызды; тышқан нәтижесі адамға механикалық көшірілмейді. TLR10 үшін контекстік реттеу әсерлері сипатталғанымен, физиологиялық лигандтары мен әмбебап қызметі азырақ анықталған. Оны «жалғыз тежеуші TLR» деу осы белгісіздікті жасырады.
PAMP микробқа тән құрылымды, DAMP зақымның молекулалық сигналын білдіреді. HMGB1 әсері тотығу-тотықсыздану күйіне, серіктес ақуыздар мен рецепторларға тәуелді; барлық тотыққан түрлер тең емес. Ұсынылған эндогендік лигандтарда микробтық қоспа, бөліп алу әдісі мен эксперимент моделі ескерілуі керек. Hsp70, гиалуронан, қаныққан май қышқылдары мен холестерин кристалдарын бір рецептордың дәлелденген тікелей агонистері деп шартсыз атауға болмайды.
Кристалдық бөлшектер мен зат алмасу өзгерістері органелла зақымы және басқа сенсорлар арқылы қабыну туғыза алады. TLR сигналы жасушаны дайындауы мүмкін, бірақ дайындық пен зақымды тікелей тану — бөлек сатылар. Сондықтан қабынумен байланысты зат міндетті түрде TLR-ге тікелей байланысады деген қорытынды дұрыс емес.
Жақсы зерттелген TLR-дің көбі MyD88 қолданады; TLR3 маңызды ерекшелік, ал TLR4 екі адаптерлік жолды пайдаланады. TIRAP мембрана жанындағы TLR2 және TLR4 MyD88 сигналын ұйымдастырады. MyD88, IRAK4 және IRAK1/2 өлім домендері миддосоманы құрайды. MyD88–IRAK4–IRAK2 домендерінің кристаллографиялық моделінде 6:4:4 қатынасы сипатталған; бұл тірі жасушадағы әр кешеннің өзгермейтін өлшемі емес, нақты құрылымдық зерттеудің нәтижесі.
IRAK4 және туыстас киназалар фосфат тобын тасымалдау үшін ATP пен Mg²⁺ пайдаланады. TRAF6 убиквитинді конъюгациялау жүйесімен бірге сигналдық полиубиквитин тізбектеріне қатысады. K63 арқылы жалғанған тізбектер кешен құру платформалары; олардың мағынасы протеасомалық ыдырауға бағыттайтын K48 тізбектерінен бөлек. TAK1 және реттеуші TAB ақуыздары осы платформаны IKK және MAP-киназалармен байланыстырады.
IκB фосфорлануы убиквитинденуге және ыдырауға әкеліп, NF-κB ядроға өтеді. p38 және JNK сияқты MAP-киназалар AP-1 белсенуіне қатысады. Нәтиже транскрипциялық факторлардың бірлесуіне, хроматинге қолжетімділікке және кері байланысқа тәуелді. IL-12p70 p35 пен p40-тан, IL-23 p19 және сол p40-тан тұрады; p40 өлшеу тек IL-12 өндірілгенін дәлелдемейді.
TLR3 TRIF пайдаланады, эндосомалық TLR4 оны TRAM қатысуымен қосады. Бұл жол TBK1 және IKKε, IRF3 фосфорлануы және IFN-β индукциясымен байланысты. TRIF қабынулық тармақтарды да белсендіреді: «MyD88 тек қабыну, TRIF тек қорғаныш интерферон» бөлуі тым қарапайым. pDC ішінде TLR7/9 IRF7 мен интерферонды MyD88 арқылы күшті белсендіре алады.
Бөлінген I типті интерферон IFNAR-ге байланысып, JAK1/TYK2 арқылы STAT1, STAT2 және IRF9-ды, яғни ISGF3 кешенін белсендіреді. Бұл жасуша мен көршілеріндегі интерферонмен ынталанатын гендерді өзгертеді. Жауап инфекцияда пайдалы, бірақ ұзақ белсену аутоиммундық зақымға қатысуы мүмкін. Мағынаны цитокин атауы ғана емес, уақыт, орналасу мен ұзақтық анықтайды.
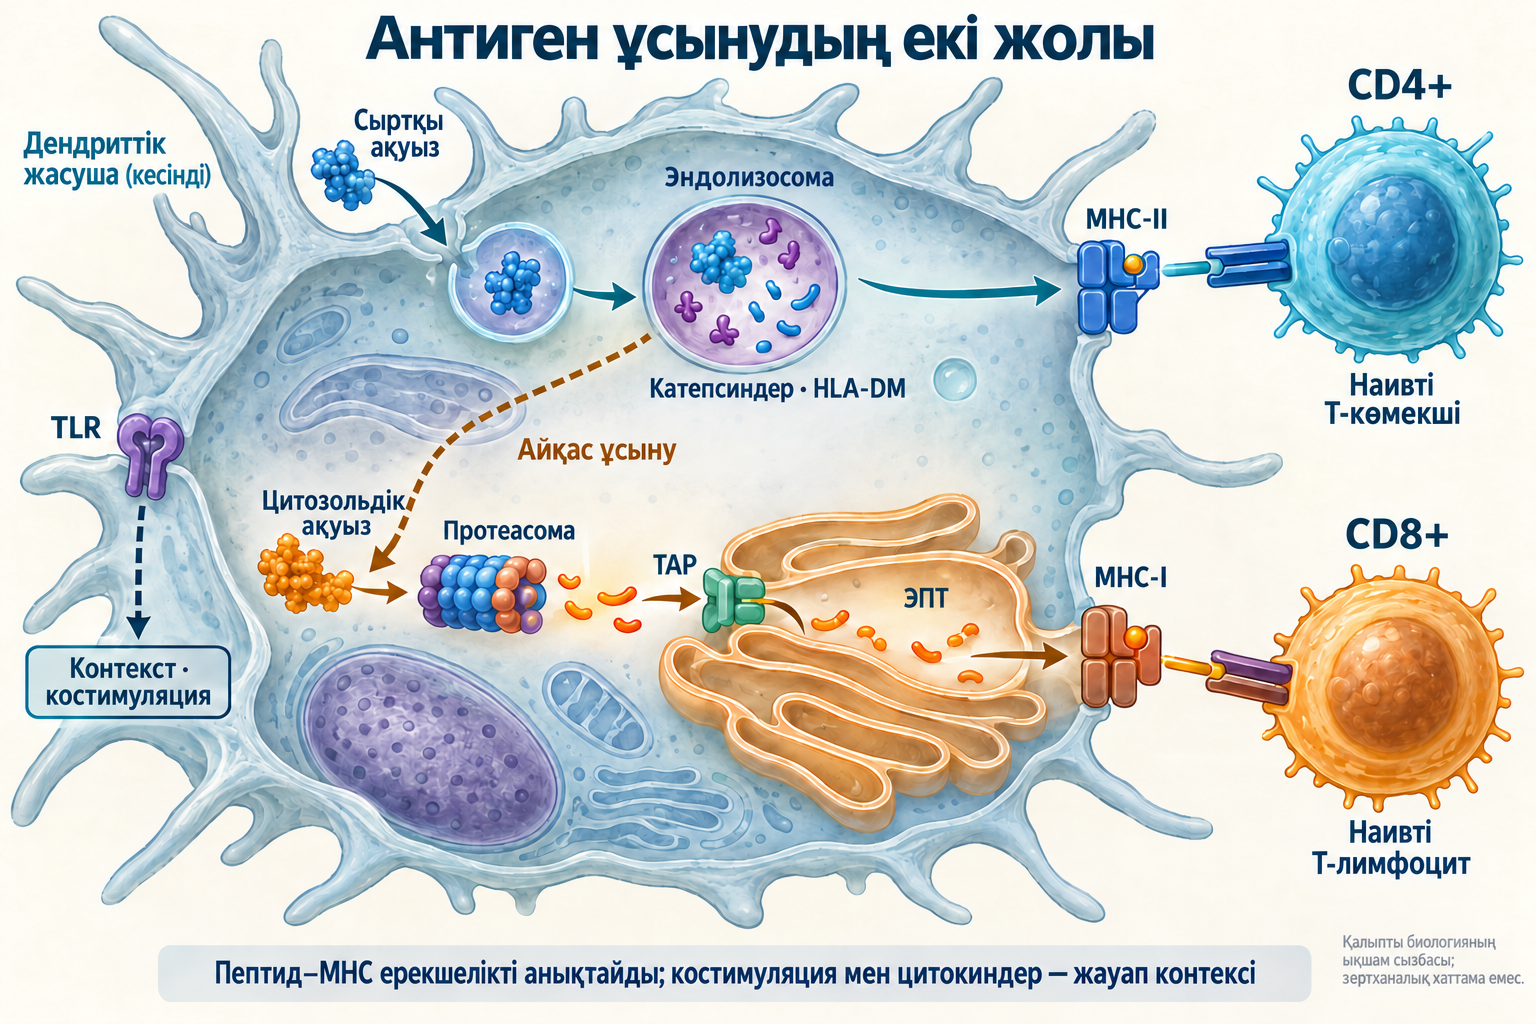
Сыртқы ақуыздар рецепторлық эндоцитоз, фагоцитоз немесе макропиноцитоз арқылы түседі. Эндосома жетілуінде V-ATPase ATP гидролизі есебінен протондарды ішкі қуысқа айдайды. Ерте эндосоманың шамамен pH 6–6,5 ортасынан кеш эндосома мен лизосоманың жиі 4,5–5,5 қышқыл ортасына өтеді. Мәндер жасуша мен сатыға тәуелді бағдар ғана, барлық антигендік компартменттің әмбебап параметрі емес.
S, L және B катепсиндері цистеиндік, D аспартилдік протеазалар; белсенді ферменттер жиынтығы жасушаға тәуелді. GILT дисульфид байланысын тотықсыздандырып, ақуыздың өңделуін жеңілдетеді. Протеолиз антигенді міндетті түрде толық жою емес, лайық эпитоп жасау үшін қажет. MHC-II ойығы екі жағынан ашық, жиі 13–25 аминқышқылды пептид ұстайды, бірақ ұзын тізбектер де мүмкін.
Эндоплазмалық торда MHC-II α және β тізбектері ойықты қорғайтын және кешенді эндосомаға бағыттайтын CD74 инварианттық тізбегімен жиналады. Протеолизден кейін CLIP қалады. HLA-DM MIIC компартментінде CLIP-ті антигендік пептидке алмастыруды және репертуарды өңдеуді катализдейді. Ол протеаза да, ATP-тәуелді сорғы да емес: MHC-II конформациясына әсер етеді. Жүктелген кешен CD4+ тануы үшін бетке тасымалданады.
Қалыпты MHC-I жолы жасуша ішінде синтезделген ақуыз пептидтерін көрсетеді. Протеасома β-суббірліктерінің каталитикалық N-ұштық треониндерін қолданады; ATP-тәуелді реттеуші бөлік кей субстратты тануға және жазуға қатысады. Интерферондар құрамға PSMB9/LMP2, PSMB10/MECL-1 және PSMB8/LMP7 енгізеді. Иммунопротеасома пептид жиынтығын өзгертеді, бірақ әр ақуызды бір бекітілген өлшеммен кесуге кепіл емес.
TAP1/TAP2 ATP пайдаланып, сәйкес пептидтерді цитозольден ЭПТ ішіне өткізеді. ERAP1 және ERAP2 — мырышқа тәуелді аминопептидазалар — N-ұштарды қысқартады; бұл эпитоп жасауға да, артық ыдыратып жоюға да әкелуі мүмкін. MHC-I ауыр тізбегі мен β₂-микроглобулин тапазин, калретикулин және ERp57 жүктеу кешенімен әрекеттеседі. ERp57 ақуыз жинағының тиол–дисульфидтік бақылауына қатысады.
MHC-I пептидтері жиі 8–10 аминқышқылдан тұрады, бірақ ұзындық пен якорь қалдықтары HLA аллеліне байланысты. Тұрақты пептид таңдалған соң кешен Гольджи арқылы бетке CD8+ тануы үшін өтеді. HLA полиморфизмі екі адамға бір ақуыздың әртүрлі пептидтерін көрсетуге мүмкіндік береді. Антигеннің химиялық бірдейлігі T-жауаптың бірдейлігіне кепіл емес.
Айқас ұсыну сыртқы антигенді MHC-I-ге жүктейді. Цитозольдік нұсқада ұсталған ақуыздың бір бөлігі цитозольге өтіп, протеасомада өңделеді және TAP-тәуелді сатыларды пайдаланады. Вакуольдік нұсқада өңдеу мен жүктеу эндосомада өтеді, протеасома не TAP қажет болмауы мүмкін. Дайын пептид–MHC кешендерін жасушалар арасында тасымалдау, cross-dressing, антигенді өздігінен өңдеуге тең емес бөлек құбылыс.
NOX2 NADPH көмегімен электронды оттекке беріп, реактивті оттек түрлерін жасайды. Кей DC моделінде бұл фагосома қышқылдануы мен протеолизді шектеп, антигенді сақтайды. Басқа зерттеулер pH-пен ғана түсіндірілмейтін протеаза әсерлерін тапқан. Сондықтан cDC1 фагосомасы міндетті түрде тұрақты pH 7,2–7,5 резервуары емес: тотығу, қышқылдану мен протеолиз уақытпен өзгереді.
Sec61 рөлі және ақуыздың эндосомадан цитозольге шығу механизмі талқылануда; бір арналық модель әмбебап дәлелденген жол емес. Айқас ұсыну мен айқас прайминг те бөлек: біріншісі кешен түзеді, екіншісі наивті CD8+ жасушасын өнімді белсендіреді. Тиісті контекстсіз ұсыну цитоуытты жауап орнына толеранттылыққа әкелуі мүмкін.
Жетілу костимуляторларды, цитокин бөлінуін, MHC тасымалын және көшуді өзгертеді. MHC-II мен CD86 айналымына қатысатын MARCH1 убиквитинлигазасының азаюы оларды бетте сақтайды. Бірақ кешен өмірі пептидке, жасушаға және жағдайға тәуелді; «әрқашан 100 сағаттан көп» тұжырымы тым кең. Жетілгеннен кейін антиген ұстау да толық тоқтауға міндетті емес.
CCR7 DC-ді CCL19 және CCL21 сигналдарымен лимфа тамырлары мен лимфа түйінінің T-аймақтарына бағыттайды. Цитоскелет пен жабысу тек культура бетіне емес, үшөлшемді тінге бейімделеді. Көшу айқын қабынусыз толеранттылықты қолдауы мүмкін. Сондықтан CCR7 немесе жетілу маркерінің өзі иммуногендік нәтижені анықтамайды.
Бірінші сигнал TCR-дің пептид–MHC тануы; CD4 не CD8 жанасуды ұйымдастырады. Екіншіге CD28–CD80/CD86 костимуляциясы, үшіншіге цитокин ортасы жатады. DC CD40 және белсенді көмекші CD40L CD8+ жауабын лицензиялауды күшейте алады. CTLA-4 пен PD-1 тежегіш байланыстары белсенуді шектейді; оларды бір әмбебап аффиндік қатынаспен сипаттау мүмкін емес.
LFA-1 және ICAM-1 жанасуды ұстайды, актин мен рецепторлық микрокластерлер қозғалып, сигналды өзгертеді. Орталық және шеткі SMAC сызбасы пайдалы, бірақ DC жанасуы жиі серпінді және мінсіз сақина құрмайды. Ірі фосфатазалардың жергілікті ығысуы мен Lck/ZAP-70 TCR сигналын қолдайды. Жіктелумен байланысы Th1, Th2, Th17 және Treg бағдарламалары материалында талданады.
Экспериментте ерте DC белсенуі гликолиз ағынын арттырады; TBK1/IKKε мен Akt рецепторды алмасумен және гексокиназа орнымен байланыстырады. Глюкоза + ATP → глюкоза-6-фосфат + ADP реакциясы Mg²⁺ қажет етеді. Пентозофосфаттық жол тотықсыздану мен липид синтезі үшін NADPH түзеді. Митохондриядан цитрат шығуы және ATP-цитратлиаза ЭПТ мен Гольджи мембраналарына цитозольдік ацетил-CoA береді.
Кеш гликолиз тәуелділігі және NO арқылы тыныстың тежелуі кей тышқан қабынулық DC моделінде көрсетілген. iNOS аргинин, оттек, NADPH және гем, тетрагидробиоптерин, FAD, FMN қажет етеді. NO митохондриялық ферменттерге, соның ішінде цитохром-c-оксидазаға әсер етеді. Бірақ адам DC мен бастапқы популяциялардың NOS2 жауабы әркелкі: барлық жасуша 12 сағатта тынысты толық өшірмейді. Метаболикалық белгілер иммуногенділікті жеке жіктемейді.
Толерогендік DC — міндетті түрде CD80/CD86 жоқ өзгермейтін линия емес, қызметтік күй. Өз немесе тағам антигенін сәйкес костимуляциясыз көрсету анергияға, реактивті клондарды жоюға не реттеуші бағдарламаларға ықпал етуі мүмкін. IL-10, TGF-β мен тежегіш байланыстар қатысады, бірақ барлық қабынуды басуға кепіл емес. Толеранттылық инфекция қорғанысын сақтайды, бүкіл иммунитетті өшіруге тең емес.
IDO1 — триптофан мен оттекті N-формилкинуренинге айналдыратын гемді диоксигеназа; кейін кинуренин түзіледі. Аминқышқыл қолжетімділігі мен AhR T-жасушаларға ықпал етеді. Бір триптофан деңгейі барлық лимфоциттің тоқтау шегі емес, әр кинуренин әсері тікелей әрі міндетті FOXP3 индукциясына тең емес. Нәтиже алмасу ортасы мен серіктес жасушаларға тәуелді.
Ішек антигендері M-жасушалар және басқа эпителий жолдары арқылы өтеді; дендриттік өсіндімен тікелей іріктеу аймақ пен модельге тәуелді. ALDH1A2 сияқты ретинальдегиддегидрогеназалар NAD⁺ көмегімен ретинальды ретиноид қышқылына тотықтырады. Ретиноидтар жергілікті сигналдармен ішекке бағытталуды және кей реттеуші жауапты қолдайды. Бұл адамда A не D дәруменінің үлкен дозасы қауіпсіз толерогендік DC жасайды деген дәлел емес.
TLR лектин рецепторлары және жасушаішілік сенсорлармен әрекеттеседі. Dectin-1 және өзге CLR Syk пен CARD9 кешендері арқылы сигнал береді. NLRP3 үшін қабыну компоненттері экспрессиясын қамтитын дайындық және каспаза-1 белсенетін кейінгі жиналу ажыратылады. Сатылар жасушаға тәуелді; IL-18 әрқашан IL-1β секілді транскрипциялық индукцияны қажет етпейді.
Кері байланысқа A20/TNFAIP3, IRAK3 және DUSP фосфатазалары кіреді. Убиквитинді өңдеу, киназаны шектеу және хроматин өзгерістері ұзақ жауапты азайтады. Жас ұлғайғанда жасуша саны, тін сигналы мен резерв өзгереді, бірақ барлық DC бірдей қартаяды деген дәлел жоқ. Қан ішек, тері немесе ісік жасушаларының дәл көшірмесі емес.
Қос соқыр плацебо-бақыланатын ZOE-50 кемінде 50 жастағы ересектерде белдемелі герпеске қарсы рекомбинантты вакцинаны бағалады. Талдауға 15 411 адам кірді; бұлшықетке екі доза екі ай аралығымен берілді. Құрамында 50 мкг E гликопротеині және липосомалық MPL мен QS-21 бар AS01B болды. Негізгі мақсат расталған герпесті болдырмау; орташа бақылау 3,2 жыл.
Ауру вакцина тобында 6, плацебода 210 адамда болды: тиімділік 97,2%, 95% СА 93,7–99,0. Айқын жергілікті не жүйелік реакциялар вакцинадан кейін жиірек болды. Бұл толық вакцинаның сол популяциядағы пайдасы, жеке MPL немесе таңдаулы cDC1 қайта белсенуінің дәлелі емес. Тірі вакцинамен тікелей салыстыру жүргізілмеді. Үлкен жастағы топтар мен ұзақ қорғаныс бір санды көшіруді емес, жеке зерттеуді қажет етеді.
IMPACT — симптомсыз не аз симптомды метастаздық кастрацияға төзімді простата обыры бар 512 ер адамдағы III фазалық қос соқыр рандомизацияланған сынақ. Сипулейцел-T мен бақылау 2:1 қатынасымен 341 және 171 адамға берілді. Үш аутологиялық жасушалық инфузия көктамырға екі апта аралығымен енгізілді; негізгі нәтиже жалпы өмір сүру болды. Препаратта антиген ұсынушы және басқа жасушалар бар, ол тазартылған біртекті cDC1 емес; дозасы бір ақуыз массасымен сипатталмайды.
Бақылау медианасы 34,1 ай болғанда өмір сүру медианасы 25,8 және 21,7 ай болды. Өлім қаупінің қатынасы 0,78, 95% СА 0,61–0,98, p=0,03. Объективті үдеуге дейінгі уақыт маңызды жақсармады; инфузиялық қалтырау мен қызба байқалды. Бір препараттың пайдасы кез келген ісікте кез келген DC вакцинасының тиімділігін дәлелдемейді; арнайы T-жасушалардың көбеюі өмірдің ұзаруына тең емес.
Қос соқыр рандомизацияланған ACCESS-те ауыр сепсисі бар 1961 пациент эриторан не плацебо алды: 1304 және 657. MD-2–TLR4 антагонисі көктамырға алты күн, жалпы 105 мг берілді; алғашқы орган дисфункциясынан кейін 12 сағат ішінде басталды. Негізгі нәтиже 28-күнгі барлық себепті өлім болды. Екі топта да сепсис емі жалғасты.
Өлім 28,1% және 26,9% болды, маңызды пайда анықталмады. Молекулалық негізі бар тежеу осы популяцияда өлімді дәлелді азайтпады. Инфекция әркелкілігі, уақыт және қабынудың иммундық дисфункциямен қатар жүруі қарапайым сигнал сызбасын клиникаға көшіруді шектейді. Теріс нәтижені «цитокин каскадын дәл басу» уәдесімен жасыруға болмайды.
Жекеленген не толерогендік препараттардың ерте зерттеулері көтерімділікті, көшуді және арнайы жауапты бағалауы мүмкін. Тиісті бақылаусыз шағын топ өмір сүрудің ұзаруын немесе әмбебап аутоиммундық ремиссияны дәлелдемейді. Антиген, жасуша тегі, ісік пен қатар ем айырмашылықтары бәрін бір тиімді классқа біріктіруге жол бермейді. Ерте зерттеулерде иммуногенділікті дәлелденген клиникалық тиімділіктен ажырату керек.
D дәрумені, омега-3, сульфорафан мен лактоферрин үшін қабынулық және жасушалық көрсеткіштердің эксперименттік өзгерістері сипатталған. Олар түрге, концентрацияға, қолжетімділікке және модельге тәуелді. Культурадағы кальцитриол кәдімгі холекальциферол қоспасына, түтіктегі компонент байланысуы сепсис еміне тең емес. Ұсыныс адамдағы нәтижелер мен зиян бағасын қажет етеді; TLR модуляциясының өзі қоспа қабылдаудың дәлелденген көрсетілімі емес.
Жасуша саны, фенотип, сигнал белсенділігі, антиген ұсыну және клиникалық нәтиже ажыратылуы керек. CD80, интерферон деңгейі немесе T-клонның өсуі сұрақтардың тек бөлігін ашады. Тін, HLA, сынама уақыты мен әдіс нәтижені өзгертеді; барлық DC дұрыс белсенділігін өлшейтін әмбебап қан талдауы жоқ.
Дендриттік жасуша молекулалық тану, ақуызды ферментпен өңдеу, пептид тасымалы, метаболизм және жанасуды біріктіреді. Қорғаныс олар үйлесімді жұмыс істеп, шектеу механизмдері сақталғанда пайда болады. Сенімді механизм түсіндірмесі компартменттерді, себептік байланыс пен белгісіздікті көрсетеді; ем уәдесі қосымша бақыланатын клиникалық нәтиже талап етеді.
Ерекшелікті TCR-дің пептид–MHC тануы анықтайды; TLR контексті жеткізеді.
Жоқ. Бұл cDC1 мамандануы, бірақ өзге жасушалар да белгілі жағдайда орындайды.
Жоқ. Адамдағы клиникалық нәтиже және зиян бағасы қажет.